
Scientific Book

Les clous de girofle

Les clous de girofle sont une épice riche en composés bioactifs, dont l'eugénol, étudié pour ses propriétés antioxydantes et anti-inflammatoires. Les recherches expérimentales explorent les effets potentiels de ces molécules sur le stress oxydatif, la régulation des médiateurs inflammatoires et les processus de survie cellulaire. Dans le livre « La scelta di Vivere in Salute o in Malattia », le Dr A. Colonnese et R. Panzironi approfondissent le potentiel biologique des clous de girofle, tout en tenant compte des limites des preuves cliniques disponibles.

Citer cet article
Colonnese, A. & Panzironi, R. (2026). Les clous de girofle. Le choix de vivre en santé ou en maladie. https://lifesciencehub.info/fr/la-scelta-di-vivere-in-salute-o-in-malattia/les-clous-de-girofle
Le choix de vivre en santé ou en maladie · ISBN 979-12-82692-04-5

DOI lsh.fr.libro.32

  • Publication 05/11/2026
  • Mise à jour 05/11/2026
  • CLOUS DE
  • EUGÉNOL
  • NF-ΚB
  • INSULINORÉSISTANCE
  • PI3K/AKT/MTOR
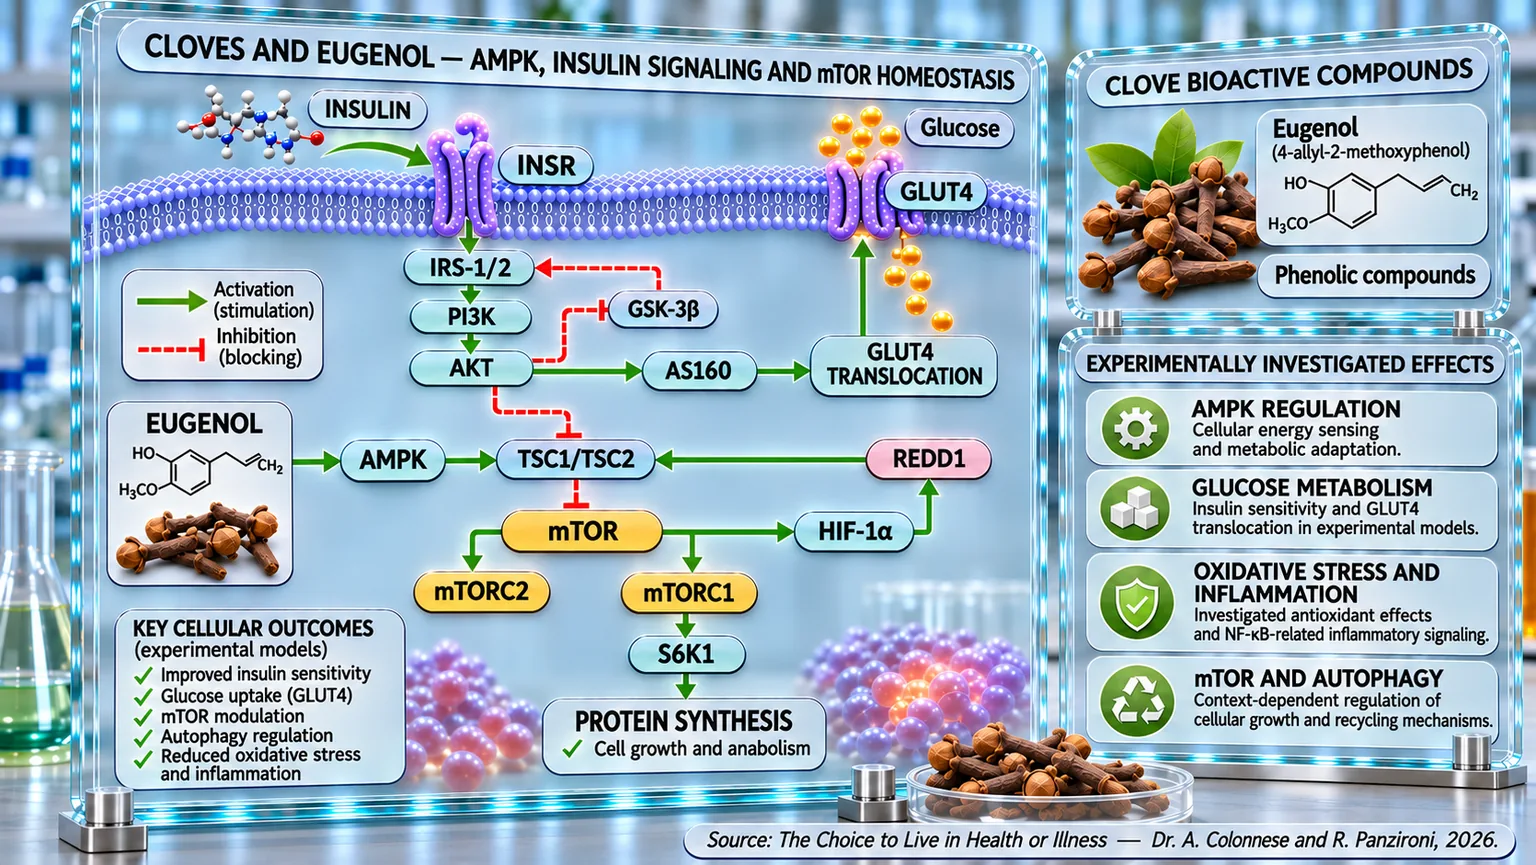
Panneaux scientifiques avec structure chimique de l'eugénol, clous de girofle, membrane cellulaire et flèches vertes ou rouges entre les voies métaboliques.
Infographie des clous de girofle et de l'eugénol : elle relie l'activation de l'AMPK et la signalisation insulinique IRS-1/2–PI3K–AKT à la translocation de GLUT4, tandis que TSC1/TSC2 module mTORC1/2, HIF-1α et la synthèse protéique ; elle résume également les effets expérimentaux sur le métabolisme du glucose, l'autophagie, le stress oxydatif et l'inflammation liée à NF-κB.

ABSTRACT

Les clous de girofle contiennent de l'eugénol, un composé bioactif étudié pour ses propriétés antioxydantes, anti-inflammatoires, antimicrobiennes et analgésiques. Dans le livre « La scelta di Vivere in Salute o in Malattia », le Dr A. Colonnese et R. Panzironi approfondissent les relations entre cette épice, la régulation glycémique et la protection cellulaire. Les observations expérimentales indiquent que l'eugénol peut atténuer l'activité de NF-κB, la production de cytokines inflammatoires et les dommages oxydatifs, suggérant des implications possibles pour le métabolisme et la réponse immunitaire.

Dans les modèles animaux, l'eugénol peut favoriser l'activation de l'AMPK et la translocation de GLUT4 dans le muscle, soutenant ainsi la captation du glucose. La régulation de l'équilibre AMPK/mTOR intervient également dans l'autophagie, processus d'élimination et de recyclage des composants cellulaires endommagés. Dans les modèles tumoraux, l'eugénol et les extraits de clous de girofle atténuent les signaux de la voie PI3K/AKT/mTOR, ce qui est associé à une prolifération moindre et à une augmentation de l'apoptose et de l'autophagie. La direction de la modulation énergétique varie toutefois selon le tissu et les conditions expérimentales.

Les preuves cliniques restent préliminaires : une étude pilote a relevé une réduction de la glycémie postprandiale, surtout en présence de valeurs initiales élevées ; une autre étude, menée avec un extrait polyphénolique, a rapporté des améliorations de l'HOMA-IR, de la glycémie et des défenses antioxydantes. Des recherches précliniques décrivent des effets sur le tissu adipeux, le microbiote et la barrière intestinale, ainsi que sur la stéatose hépatique, l'ischémie cérébrale et la toxicité reproductive. D'autres modèles explorent l'activité contre Candida, la protection cutanée et l'hyperplasie bénigne de la prostate. Les effets antitumoraux observés ne démontrent pas d'efficacité thérapeutique chez l'homme.

Dans l'ensemble, les clous de girofle offrent un modèle d'interaction entre l'inflammation, la sensibilité à l'insuline et l'homéostasie énergétique. Les premières observations cliniques nécessitent d'être confirmées par des études plus larges et contrôlées, tandis que les résultats moléculaires ne peuvent être transférés directement à la pratique thérapeutique. La consommation alimentaire de cette épice peut s'inscrire dans une alimentation équilibrée, sans pour autant remplacer des interventions cliniques établies ni lui attribuer des propriétés thérapeutiques non encore démontrées chez l'être humain.

Les clous de girofle et leurs propriétés intrinsèques

Les clous de girofle accompagnent l’histoire de l’humanité depuis des siècles, non seulement comme épice aromatique, mais comme un véritable remède naturel, capable de traverser les cultures, les continents et les systèmes médicaux traditionnels. Il s’agit des boutons floraux séchés du Syzygium aromaticum, un arbre à feuilles persistantes originaire des îles Moluques, dans l’archipel indonésien, connues à juste titre comme les anciennes « îles aux épices ». Dans ces territoires tropicaux, caractérisés par un climat chaud et humide et des sols riches, la plante développe une concentration particulièrement élevée de composés aromatiques et bioactifs, faisant des clous de girofle l’une des épices les plus puissantes sur le plan biologique.

Au fil des siècles, la culture du giroflier s’est diffusée le long des routes commerciales vers l’Afrique de l’Est et l’océan Indien, trouvant des conditions idéales dans des régions comme Zanzibar, Madagascar et les Comores, qui représentent encore aujourd’hui, avec l’Indonésie, les principaux pôles de production mondiaux. La qualité du produit final dépend de manière critique du moment de la récolte, lorsque le bouton est encore fermé et riche en huiles essentielles, et des méthodes de séchage, qui doivent préserver l’intégrité des molécules volatiles sans les dégrader. En ce sens, parler de clous de girofle « biologiques » ne signifie pas seulement faire référence à l’absence de pesticides, mais à une filière respectueuse des rythmes naturels de la plante et des processus post-récolte, des éléments déterminants pour le profil phytochimique final.

Ce qui rend les clous de girofle si particuliers est leur extraordinaire densité biologique : contrairement à beaucoup d’autres épices, une seule molécule domine leur profil chimique et fonctionnel, l’eugénol, responsable de l’arôme intense, chaud et piquant, mais aussi de la plupart des propriétés pharmacologiques attribuées à cette épice. C’est précisément l’importante concentration en eugénol qui explique pourquoi les clous de girofle ont été traditionnellement utilisés comme antiseptiques, analgésiques, digestifs et conservateurs naturels, bien avant que la chimie moderne ne commence à en étudier les mécanismes d’action.

Cette combinaison d’origine géographique, de mode de culture et de richesse phytochimique fait des clous de girofle non pas une simple épice aromatique, mais un véritable concentré végétal d’activité biologique, capable d’interagir avec des processus fondamentaux tels que l’inflammation, le stress oxydatif, le métabolisme cellulaire et les défenses antimicrobiennes. C’est sur cette base qu’il devient possible de comprendre leur rôle dans les pathologies chroniques modernes et la raison pour laquelle l’eugénol est aujourd’hui au centre d’un intérêt scientifique croissant.

Les clous de girofle (Syzygium aromaticum) doivent une grande partie de leurs propriétés biologiques à cette molécule dominante : l’eugénol, un composé phénolique qui peut constituer jusqu’à 80-90 % de l’huile essentielle extraite des boutons floraux séchés. D’un point de vue chimique, l’eugénol est caractérisé par une structure qui lui confère une réactivité biologique marquée et la capacité d’interagir avec les membranes cellulaires, les enzymes et les voies de signalisation intracellulaires. Ce n’est pas un hasard si cette molécule fait l’objet d’un intérêt scientifique croissant pour son large spectre d’activités pharmacologiques, allant de l’action antioxydante et anti-inflammatoire jusqu’aux effets antitumoraux, antimicrobiens, analgésiques et métaboliques (Noman et al., 2025) [1] ; (Nisar et al., 2021) [2].

L’un des aspects les plus pertinents de l’eugénol est son action redox-dépendante, qui lui permet de se comporter comme un antioxydant ou, dans des conditions et concentrations spécifiques, comme un pro-oxydant sélectif. À faibles ou modérées doses, l’eugénol neutralise les espèces réactives de l’oxygène et de l’azote, réduisant la peroxydation lipidique et protégeant les membranes, les mitochondries et l’ADN du dommage oxydatif. Cet effet s’accompagne d’une augmentation des défenses antioxydantes endogènes, créant un environnement cellulaire plus stable et moins inflammatoire. En termes simples, l’eugénol agit comme une sorte d’« amortisseur biologique », atténuant les chocs oxydatifs qui accompagnent de nombreuses pathologies chroniques.

Cette réduction du stress oxydatif s’accompagne d’une action anti-inflammatoire marquée, médiée par l’inhibition de voies clés comme le facteur de transcription NF-κB et par la réduction de l’expression de cytokines pro-inflammatoires telles que TNF-α, IL-1β et IL-6. L’eugénol est en outre capable de moduler des enzymes comme COX et LOX (enzymes clés dans la cascade de l’acide arachidonique, fondamentales pour la douleur et l’inflammation), réduisant la synthèse de prostaglandines et de leucotriènes, avec un effet qui explique à la fois ses propriétés anti-inflammatoires et celles analgésiques traditionnellement exploitées en milieu odontologique et phytothérapeutique (Nisar et al., 2021) [2]. Ce profil est particulièrement intéressant car l’inflammation chronique de bas grade représente le terrain commun de bon nombre des pathologies traitées dans ce livre.

Lorsque l’on observe le comportement de l’eugénol dans des contextes pathologiques plus complexes, comme les maladies tumorales, une caractéristique distinctive émerge : la capacité de cibler simultanément plusieurs mécanismes cellulaires fondamentaux. De nombreuses preuves expérimentales montrent que l’eugénol inhibe la prolifération cellulaire, induit un arrêt du cycle cellulaire et active l’apoptose (Zari et al., 2021) [3] ; (Noman et al., 2025) [1]. Parallèlement, l’eugénol interfère avec des voies de signalisation centrales pour la croissance et la survie cellulaire, dont la voie de l’insuline PI3K/AKT/mTOR, contribuant à réduire la capacité des cellules tumorales à s’adapter aux conditions de stress métabolique et inflammatoire (Zari et al., 2021) [3].

Un exemple particulièrement clair de cette action multifactorielle provient des études sur le carcinome hépatocellulaire, où l’eugénol a montré, dans des modèles in vivo et in vitro, la capacité de réduire les marqueurs tumoraux, inflammatoires et oxydatifs, d’améliorer l’architecture hépatique et de moduler de manière favorable l’expression génique liée à la prolifération, à l’apoptose et aux défenses antioxydantes (Zaky et al., 2025) [4]. Dans ce contexte, l’eugénol n’agit pas comme un simple « interrupteur », mais comme un régulateur qui rétablit l’équilibre dans un système profondément altéré, éteignant les signaux de croissance incontrôlée et réactivant ceux de contrôle et de mort programmée.

Outre l’activité antitumorale, l’eugénol présente une robuste action antimicrobienne, qui s’étend aux bactéries, aux champignons et aux parasites. Son activité antifongique contre les espèces du genre Candida est particulièrement intéressante. Des études in vitro ont démontré que l’eugénol et le méthyleugénol (un composé aromatique naturel présent dans certaines plantes et épices) sont efficaces contre des isolats cliniques et présentent un effet synergique marqué, sans phénomènes d’antagonisme (Ahmad et al., 2010) [5]. Cela signifie que l’eugénol est capable de renforcer l’efficacité d’un médicament conventionnel, probablement en interférant avec la perméabilité membranaire, les pompes d’efflux et la biosynthèse de l’ergostérol (une substance naturelle présente dans les membranes cellulaires des champignons, fondamentale pour leur structure). C’est comme si l’eugénol « ouvrait une brèche » dans les défenses du micro-organisme, le rendant à nouveau sensible au traitement.

Dans leur ensemble, ces preuves montrent comment les clous de girofle, par le biais de l’eugénol, représentent une épice aux propriétés biologiques profondes et systémiques. Leur action ne se limite pas à une seule cible, mais implique le stress oxydatif, l’inflammation, le métabolisme cellulaire, la prolifération et la réponse antimicrobienne. Intégrés dans un mode de vie orienté vers la réduction de l’inflammation chronique et de l’hyperactivation métabolique, les clous de girofle n’agissent pas comme un remède isolé, mais comme des modulateurs du terrain biologique, capables de soutenir les processus de rééquilibrage que l’organisme peine à maintenir dans le contexte moderne.

Les clous de girofle et la supplémentation chez l'homme

Lorsque l'on passe des propriétés moléculaires des clous de girofle à leur application en tant qu'intervention nutritionnelle, il apparaît clairement que l'eugénol et ses dérivés n'agissent pas de manière isolée sur un seul paramètre, mais exercent une action systémique impliquant le métabolisme glucidique, le tissu adipeux, le microbiote intestinal, l'inflammation et les processus de régénération cellulaire. Cela rend les clous de girofle particulièrement intéressants dans le contexte des pathologies métaboliques et inflammatoires chroniques, où plusieurs systèmes sont simultanément compromis.

L'un des premiers domaines explorés est celui du contrôle glycémique et de la régulation hormonale dans le diabète de type 2. Dans un modèle animal de diabète induit par une alimentation riche en graisses, l'intégration alimentaire de clous de girofle a entraîné une réduction significative de la glycémie, accompagnée d'une diminution des taux de leptine sérique, une hormone souvent élevée dans les contextes d'obésité et d'insulinorésistance (Abdulrazak et al., 2018) [6]. Cette donnée est particulièrement pertinente car elle suggère que l'action hypoglycémiante des clous de girofle ne dépend pas exclusivement d'une augmentation de la sécrétion insulinique, mais d'une modulation de la sensibilité à l'insuline et du signal adipocytaire. En d'autres termes, le clou de girofle semble réduire le « bruit métabolique » qui contraint l'organisme à maintenir des niveaux élevés d'insuline et de leptine pour obtenir le même effet biologique.

Cette observation trouve une première confirmation chez l'homme grâce à une étude pilote menée sur des volontaires sains et des sujets présentant une glycémie basale légèrement élevée. La prise quotidienne d'un extrait polyphénolique hydrosoluble de clous de girofle a entraîné une réduction significative de la glycémie postprandiale dès 12 jours, avec un effet plus marqué et progressif chez les sujets ayant des valeurs basales comprises entre 101 et 125 mg/dL (Mohan et al., 2019) [7]. La donnée la plus intéressante est que la glycémie préprandiale ne diminue de manière significative que chez les sujets métaboliquement plus fragiles, ce qui suggère un effet normalisateur plutôt qu'hypoglycémiant indiscriminé. D'un point de vue physiologique, ce comportement est cohérent avec l'idée d'une épice qui aide l'organisme à mieux gérer la charge glycémique lorsque le système est sous stress, sans le forcer lorsqu'il est déjà en équilibre.

Les études in vitro associées à ces travaux aident à comprendre les mécanismes à la base de ces effets. L'extrait de clous de girofle augmente l'absorption du glucose dans les myocytes, réduit la production hépatique de glucose et inhibe les enzymes digestives, ralentissant ainsi l'absorption des glucides au niveau intestinal (Mohan et al., 2019) [7]. C'est comme si l'action des clous de girofle se répartissait tout au long du parcours du glucose, de l'intestin aux tissus périphériques, évitant les pics soudains et favorisant une gestion plus graduelle et efficace.

Parallèlement au métabolisme glucidique, un rôle de plus en plus central émerge pour l'axe intestin-microbiote-tissu adipeux. Dans des modèles murins nourris avec un régime riche en graisses, l'eugénol a démontré qu'il réduisait significativement l'augmentation du poids corporel, le volume du tissu adipeux viscéral et la taille des adipocytes, tout en améliorant la glycémie à jeun. Ces changements phénotypiques sont accompagnés d'une profonde modulation du microbiote intestinal, avec une augmentation des genres associés à un profil métabolique favorable et une réduction de ceux liés à l'inflammation et à l'obésité. En parallèle, l'analyse transcriptomique du tissu adipeux montre une reprogrammation des voies impliquées dans le métabolisme lipidique, la thermogenèse et la sensibilité à l'insuline (Li et al., 2022) [8]. Cela suggère que l'eugénol n'agit pas seulement « de l'extérieur », mais dialogue directement avec le métabolisme du tissu adipeux, contribuant à le rendre moins inflammé et plus métaboliquement flexible.

Un niveau de complexité supplémentaire émerge lorsque l'eugénol est associé à d'autres composés bioactifs. Un complément combiné à base de spermidine (une substance naturelle présente dans les cellules et dans divers aliments) et d'eugénol a démontré qu'il protégeait les cellules intestinales humaines d'un état inflammatoire induit, en réduisant la production d'espèces réactives de l'oxygène, en atténuant l'expression de médiateurs inflammatoires et, surtout, en stimulant le flux autophagique (Truzzi et al., 2023) [9]. L'autophagie, processus fondamental de recyclage et de maintenance cellulaire, est souvent compromise dans les maladies chroniques et auto-immunes. Le fait que l'eugénol contribue à réactiver une autophagie fonctionnelle, tout en améliorant l'intégrité de la barrière intestinale, renforce l'idée d'une action profonde sur le « terrain biologique » qui précède et accompagne la maladie.

Enfin, l'intégration de dérivés de l'eugénol montre des effets pertinents même dans des contextes apparemment distants comme le photovieillissement cutané, mais qui partagent les mêmes bases physiopathologiques de stress oxydatif et d'inflammation chronique. Dans les modèles murins exposés aux rayons UVB, la supplémentation alimentaire en isoeugénol réduit la formation de rides, préserve le collagène dermique, limite l'épaississement épidermique et atténue la sécheresse cutanée. De manière particulièrement intéressante, ces effets s'associent à une normalisation de la dysbiose intestinale induite par l'exposition chronique aux rayons UV, suggérant l'existence d'un axe intestin–peau modulable par l'alimentation et les composés phytochimiques (Geng et al., 2024) [10]. Une fois de plus, il apparaît que l'action des clous de girofle ne se limite pas à un seul organe, mais se manifeste comme une régulation systémique de l'inflammation et de la réponse au stress.

Dans l'ensemble, ces études montrent que l'intégration de clous de girofle et de leurs principaux composants ne produit pas d'effets ponctuels et isolés, mais contribue à réduire la variabilité métabolique, à améliorer la gestion du glucose, à moduler le microbiote et à réactiver les processus cellulaires de protection et de réparation. Intégrés dans un mode de vie axé sur la stabilité glycémique et la réduction de l'hyperinsulinémie, les clous de girofle ne se présentent donc pas comme un remède symptomatique, mais comme un modulateur du contexte biologique dans lequel les pathologies chroniques prennent forme et se maintiennent dans le temps.

Les clous de girofle et leurs utilisations pour les pathologies traitées

Lorsque l’on observe l’action des clous de girofle dans différentes pathologies chroniques, un tableau étonnamment cohérent émerge : l’eugénol, leur principal composant bioactif, agit sur des nœuds physiopathologiques communs à de nombreuses maladies modernes, en particulier l’altération du métabolisme glucidique, le dysfonctionnement de l’axe intestin-foie-cerveau, l’inflammation chronique de bas grade et l’hyperactivation de voies pro-survie comme PI3K/AKT/mTOR.

Dans le contexte du diabète sucré, l’eugénol a démontré un effet anti-hyperglycémiant marqué dans des modèles expérimentaux établis. Chez des rats atteints de diabète induit par la streptozotocine, l’administration d’eugénol a réduit de manière significative la glycémie à jeun et l’hémoglobine glyquée, accompagnant ces effets d’une augmentation des niveaux d’insuline plasmatique et d’une normalisation des enzymes clés du métabolisme glucidique hépatique (Srinivasan et al., 2014) [11]. Cette donnée est particulièrement pertinente car elle suggère que l’eugénol n’agit pas simplement comme un hypoglycémiant direct, mais contribue à rétablir l’équilibre métabolique hépatique, réduisant ainsi le besoin d’une hyperproduction insulinique compensatoire.

La même logique de rééquilibrage émerge dans les pathologies hépatiques métaboliques. Dans la stéatose hépatique non alcoolique, l’eugénol a montré sa capacité à réduire l’accumulation lipidique dans le foie, à améliorer les profils sériques de triglycérides et de cholestérol, et à restaurer l’architecture hépatique dans des modèles animaux nourris avec un régime riche en graisses (Li et al., 2022) [12]. Ce qui rend cette étude particulièrement innovante est l’identification d’un mécanisme neuroendocrinien intégré : l’eugénol active l’axe intestin-cerveau-foie, renforçant la barrière intestinale, stimulant le nerf vague et améliorant la communication entre l’intestin et le foie. C’est comme si l’eugénol aidait l’organisme à « réorganiser le trafic métabolique », en intervenant non seulement sur le foie en tant qu’organe cible, mais sur l’ensemble du système de régulation.

Un rôle central de l’eugénol émerge également dans la relation entre l’intestin, le microbiote et les infections opportunistes. Dans un modèle murin d’infection intestinale à Candida albicans, l’huile essentielle de clou de girofle a montré une puissante activité antifongique et anti-biofilm, réduisant la charge fongique et améliorant l’intégrité de la muqueuse intestinale (Gao et al., 2025) [13]. Parallèlement, le traitement a entraîné une réduction significative des cytokines inflammatoires intestinales, telles que IL-6, IL-8 et IL-17A, ainsi qu’un rétablissement de la diversité du microbiote, avec une augmentation de genres bénéfiques comme Lactobacillus et Bifidobacterium. Cette donnée est cruciale car elle montre que l’eugénol ne se limite pas à cibler le pathogène, mais contribue à reconstruire l’écosystème intestinal, réduisant cet environnement inflammatoire qui favorise les infections persistantes.

La capacité de l’eugénol à moduler l’inflammation et la prolifération cellulaire devient particulièrement évidente également dans l’hyperplasie bénigne de la prostate (HBP), une pathologie fortement associée à l’inflammation chronique, au stress oxydatif et à l’activation de voies pro-croissance. Dans des modèles expérimentaux d’HBP induite par la testostérone, l’eugénol a réduit l’indice prostatique, atténué l’hyperplasie épithéliale et inhibé l’activation de la voie PI3K/AKT/mTOR, tout en réduisant les niveaux de cytokines inflammatoires et de marqueurs oxydatifs (Abdali et al., 2025) [14]. Le lien avec l’acide urique, identifié comme médiateur de l’inflammation prostatique, est particulièrement intéressant : l’eugénol, surtout en combinaison avec un uricosurique (substance qui favorise l’élimination de l’acide urique par les reins et les urines), a montré un effet synergique dans la réduction des signaux pro-survie et de prolifération, suggérant un rôle potentiel également dans les conditions cliniques humaines caractérisées par une hyperuricémie et une inflammation chronique.

Enfin, le potentiel de l’eugénol dans le contexte oncologique a été analysé de manière systématique dans une revue large et rigoureuse qui a rassemblé les preuves précliniques sur de nombreux types de tumeurs (Begum et al., 2022) [15]. L’eugénol s’est révélé capable d’induire l’apoptose, l’arrêt du cycle cellulaire, l’inhibition de l’angiogenèse et la réduction des métastases dans des modèles de carcinome mammaire, gastrique, hépatique, pulmonaire, prostatique et cutané. Ces effets sont médiés par la modulation coordonnée de la voie PI3K/AKT/mTOR, dessinant un profil d’action qui cible sélectivement les cellules pathologiques sans montrer de toxicité significative sur les tissus sains. Il est important de souligner que l’eugénol a également montré des synergies positives avec des médicaments chimiothérapeutiques conventionnels, suggérant un rôle possible en tant que traitement adjuvant, plutôt que comme alternative isolée.

Dans leur ensemble, ces preuves montrent que les clous de girofle, par le biais de l’eugénol, n’agissent pas sur des pathologies isolées de manière fragmentaire, mais interviennent sur des mécanismes biologiques communs : hyperglycémie, dysfonctionnement insulinique, inflammation chronique, altération du microbiote et hyperactivation de mTOR. Intégrés dans un mode de vie orienté vers la stabilité métabolique et la réduction de l’hyperinsulinémie, ils ne représentent pas un remède symptomatique, mais un modulateur du terrain physiopathologique sur lequel les maladies chroniques se développent et se maintiennent dans le temps.

Les clous de girofle et l'amélioration de l'insulinorésistance

L'un des aspects les plus intéressants des clous de girofle concerne leur capacité à intervenir directement sur les mécanismes biologiques à l'origine de l'insulinorésistance, une condition centrale dans le développement du diabète sucré de type 2, du syndrome métabolique et de la stéatose hépatique non alcoolique. En présence d'insulinorésistance, en effet, les tissus périphériques deviennent progressivement moins sensibles au signal insulinique, contraignant le pancréas à produire des quantités toujours plus importantes d'insuline pour maintenir la glycémie stable. Cet état d'hyperinsulinémie chronique alimente l'inflammation systémique, le dysfonctionnement mitochondrial, l'accumulation lipidique et l'activation continue de la voie PI3K/AKT/mTOR.

Dans ce contexte, l'eugénol et les polyphénols des clous de girofle semblent agir comme des modulateurs métaboliques multifactoriels, capables d'améliorer simultanément l'homéostasie glucidique, le stress oxydatif et la fonction énergétique cellulaire. L'une des preuves les plus solides provient d'une méta-analyse comprenant 16 études précliniques sur des modèles animaux de diabète, dans laquelle le traitement à l'eugénol a entraîné une réduction significative de la glycémie, une amélioration du profil lipidique et une atténuation marquée du stress oxydatif. Les auteurs soulignent également que l'eugénol augmente l'absorption cellulaire du glucose par la modulation de la voie PI3K, suggérant une implication directe des principales voies de la sensibilité à l'insuline (Carvalho et al., 2021) [16].

D'un point de vue physiopathologique, cette donnée est particulièrement importante car le stress oxydatif représente l'un des principaux facteurs alimentant la résistance à l'insuline. La production excessive d'espèces réactives de l'oxygène altère en effet la signalisation insulinique, endommage les mitochondries et favorise un état inflammatoire chronique de bas grade. En réduisant les dommages oxydatifs et en améliorant les défenses antioxydantes endogènes, l'eugénol semble contribuer à « désamorcer » l'un des mécanismes les plus profonds du dysfonctionnement métabolique (Carvalho et al., 2021) [16].

Cette relation entre homéostasie redox (l'équilibre dynamique entre les molécules oxydantes, comme les radicaux libres, et les molécules antioxydantes) et sensibilité à l'insuline apparaît avec encore plus de clarté dans les études cliniques menées sur les polyphénols des clous de girofle. Dans une étude randomisée, contrôlée et en double aveugle menée sur des sujets atteints de syndrome métabolique, la supplémentation avec Clovinol®, un extrait polyphénolique dérivé du giroflier, a entraîné une réduction de l'indice HOMA-IR supérieure à 50 %, accompagnée d'améliorations significatives de la glycémie à jeun, de la glycémie postprandiale et de l'HbA1c (Thomas et al., 2022) [17]. Parallèlement, des augmentations marquées des niveaux intracellulaires de glutathion (un puissant antioxydant produit naturellement par les cellules) et de l'activité du facteur Nrf2, l'un des principaux régulateurs de la réponse antioxydante cellulaire, ont été observées.

Ce passage est extrêmement pertinent car il relie directement l'amélioration de la sensibilité à l'insuline au rééquilibrage de l'état oxydatif intracellulaire. En d'autres termes, les polyphénols des clous de girofle ne semblent pas agir simplement en « abaissant le sucre », mais en améliorant l'environnement métabolique dans lequel le signal insulinique doit fonctionner. C'est comme si la cellule, en réduisant sa charge oxydative et inflammatoire, parvenait progressivement à reconnaître à nouveau correctement le message de l'insuline.

L'étude a également montré une réduction significative de l'IL-1β et du TNF-α, deux cytokines étroitement impliquées dans la genèse de l'insulinorésistance. Cette donnée revêt une importance particulière car l'inflammation chronique de bas grade représente l'un des principaux liens entre l'obésité viscérale, l'hyperinsulinémie et l'altération progressive du métabolisme glucidique.

Le muscle squelettique, principal siège de la captation périphérique du glucose, semble également bénéficier profondément de l'action de l'eugénol. Dans un modèle murin de diabète sucré de type 2 induit par un régime riche en graisses et par la streptozotocine, l'eugénol a amélioré de manière significative la sensibilité à l'insuline, augmenté l'absorption musculaire de glucose et réduit la glycémie. Au niveau moléculaire, le composé a augmenté la translocation de GLUT4 et la phosphorylation de l'AMPK dans le muscle squelettique par l'activation de l'axe impliquant l'AMPK (Jiang et al., 2022) [18].

Ce mécanisme est particulièrement intéressant car il agit indépendamment de la voie insulinique classique médiée par AKT. En conditions d'insulinorésistance avancée, en effet, la signalisation insulinique est compromise ; l'activation de l'AMPK permet en revanche d'augmenter la captation de glucose même lorsque le signal insulinique est altéré. D'un point de vue biologique, c'est comme si l'eugénol ouvrait une « voie alternative » pour permettre au glucose d'entrer dans la cellule sans surcharger davantage le système insulinique.

Parallèlement, l'eugénol a réduit l'expression de certains marqueurs d'atrophie musculaire et atténué la phosphorylation de NF-κB, suggérant une amélioration globale de l'inflammation systémique et du métabolisme énergétique musculaire. Cet aspect est particulièrement important car le muscle squelettique représente l'un des principaux organes cibles de l'insulinorésistance et de la perte de flexibilité métabolique (Jiang et al., 2022) [18].

Des résultats analogues émergent également dans les études focalisées directement sur la voie AMPK-GLUT4. Chez des rats diabétiques traités à l'eugénol, une réduction significative de la glycémie, une amélioration des niveaux sériques d'insuline et une diminution marquée de l'indice HOMA-IR ont été observées. Conjointement, l'eugénol a augmenté la translocation du GLUT4 dans le muscle squelettique par l'activation de l'AMPK, améliorant l'absorption périphérique du glucose.

Les auteurs soulignent en outre que l'eugénol réduit significativement les marqueurs de stress oxydatif et les principales cytokines pro-inflammatoires, y compris l'IL-6. Cette donnée confirme une fois de plus que l'effet sur l'insulinorésistance ne dépend pas d'une cible moléculaire unique, mais d'une régulation intégrée du métabolisme énergétique, de l'inflammation et de l'homéostasie redox (Al-Trad et al., 2019) [19].

Dans l'ensemble, les preuves disponibles montrent que les clous de girofle n'agissent pas simplement comme une épice aromatique ou un antioxydant générique, mais comme de véritables modulateurs de la physiologie métabolique. Grâce à l'eugénol et aux polyphénols bioactifs, cette épice semble améliorer la sensibilité à l'insuline, augmenter l'utilisation périphérique du glucose, réduire l'inflammation et le stress oxydatif, et rétablir un équilibre énergétique plus efficace.

En ce sens, la relation entre les clous de girofle et l'insulinorésistance représente l'un des exemples les plus intéressants de la manière dont un composé naturel peut dialoguer avec les principaux nœuds de la physiopathologie métabolique moderne, contribuant à contrer les effets de l'hyperinsulinémie chronique et de l'activation continue de la voie insulinique.

Les clous de girofle et leur relation avec mTOR

Pour comprendre pleinement le rôle des clous de girofle dans les pathologies chroniques modernes, il est indispensable de s'attarder sur leur relation avec la voie PI3K–AKT–mTOR, l'un des principaux systèmes de régulation de la croissance, de la survie cellulaire et du métabolisme énergétique. mTOR peut être considéré comme le « capteur central de l'abondance » : lorsque les nutriments, l'insuline et les signaux de croissance sont élevés, cette voie reste constamment active, poussant les cellules vers la prolifération, l'accumulation et la réduction des processus de recyclage. Dans des conditions pathologiques, cette activation chronique devient un facteur de risque transversal, impliqué dans le développement du diabète, des tumeurs, de l'inflammation chronique et de la dégénérescence tissulaire.

Dans ce contexte, l'eugénol, principal composant bioactif des clous de girofle, se distingue par sa capacité à moduler mTOR de manière dépendante du contexte, en réduisant son hyperactivation pathologique sans bloquer complètement sa fonction physiologique. Des études menées sur des cellules de carcinome du côlon humain ont démontré qu'une fraction active extraite des clous de girofle inhibe de manière dose-dépendante la phosphorylation de PI3K, AKT et mTOR, entraînant un arrêt de la prolifération cellulaire et l'induction de l'apoptose (Zhao et al., 2021) [20]. L'effet s'est révélé réversible en présence d'IGF-1 (facteur de croissance analogue à l'insuline), confirmant que l'action de la fraction active s'exerce directement le long de l'axe insuline–PI3K–AKT–mTOR, le même axe qui est chroniquement stimulé dans les états d'hyperinsulinémie.

Cette modulation de mTOR ne conduit pas exclusivement à l'apoptose, mais implique également l'autophagie, un processus de maintenance cellulaire fortement inhibé lorsque mTOR est hyperactif. Dans une étude de 2018, menée également sur des cellules de carcinome du côlon, la fraction active du clou de girofle a induit simultanément l'apoptose et l'autophagie par la suppression de la voie PI3K/AKT/mTOR (Liu et al., 2018) [21]. L'inhibition pharmacologique de l'autophagie a encore augmenté la mort cellulaire apoptotique, suggérant que l'autophagie représente initialement une tentative d'adaptation de la cellule au stress induit par le traitement. Cette donnée est extrêmement pertinente car elle montre que l'eugénol ne « tue pas sans discernement », mais contraint la cellule pathologique à révéler sa fragilité métabolique, surtout lorsqu'elle dépend de mTOR pour sa survie.

L'interférence de l'eugénol avec mTOR apparaît également dans d'autres contextes oncologiques. Dans les cellules de carcinome pulmonaire humain, l'eugénol a montré un effet suppressif sur la prolifération, la migration et l'invasion cellulaire, associé à une réduction significative de la phosphorylation d'AKT et à l'inhibition d'enzymes cruciales pour la progression métastatique (Li et Yang, 2018) [22]. Bien que mTOR ne soit pas toujours mesuré directement dans cette étude, la réduction d'AKT phosphorylé indique une suppression fonctionnelle de l'ensemble de l'axe PI3K/AKT/mTOR, confirmant la cohérence du mécanisme d'action.

Un aspect particulièrement intéressant est que la modulation de mTOR par les clous de girofle ne se limite pas au domaine oncologique. Dans un modèle de toxicité testiculaire induite par l'acrylamide, l'eugénol a montré un effet nettement protecteur, améliorant la qualité spermatique, le profil hormonal et l'intégrité tissulaire (Saleh et al., 2024) [23]. Dans ce cas, l'eugénol n'a pas simplement inhibé mTOR, mais a rétabli un équilibre dynamique entre AKT et mTOR, favorisant une autophagie fonctionnelle et réduisant l'apoptose excessive. Cela démontre un point clé : mTOR n'est pas un « ennemi » à éteindre, mais un régulateur à ramener à l'équilibre, et l'eugénol semble capable d'adapter son action au contexte physiopathologique.

La capacité des clous de girofle à cibler l'axe mTOR émerge également à travers des approches biotechnologiques innovantes. La synthèse verte de nanoparticules d'argent (une méthode qui utilise des substances naturelles, comme des extraits végétaux, pour produire de minuscules particules) utilisant des extraits de Syzygium aromaticum a produit des systèmes nanostructurés capables d'induire une apoptose sélective dans des cellules leucémiques, avec une réduction marquée de l'activité d'AKT et de mTOR (Guo et al., 2025) [24]. Là encore, la voie de l'insuline se confirme comme la cible centrale par laquelle les composés du clou de girofle exercent leur action biologique, indépendamment de la forme d'administration.

Dans leur ensemble, ces études dessinent un tableau cohérent : les clous de girofle, par l'intermédiaire de l'eugénol et des fractions bioactives dérivées, agissent comme des modulateurs métaboliques de mTOR, capables de réduire l'hyperactivation pathologique de la voie, de réactiver l'autophagie, de limiter la prolifération cellulaire incontrôlée et d'améliorer la résilience tissulaire. Ce comportement est particulièrement pertinent dans le contexte moderne, caractérisé par une hyperinsulinémie chronique, une surcharge nutritionnelle et une inflammation persistante, conditions qui maintiennent mTOR constamment activé.

En ce sens, les clous de girofle ne peuvent être interprétés comme un simple agent antitumoral ou antioxydant, mais comme une épice métaboliquement intelligente, capable de dialoguer avec l'un des nœuds les plus centraux de la physiopathologie humaine. Intégré dans un mode de vie orienté vers la réduction de la variabilité glycémique et de l'hyperinsulinémie, son effet sur mTOR contribue à faire passer l'organisme d'un mode de croissance forcée et dysfonctionnelle vers un mode d'équilibre, d'adaptation et de maintenance cellulaire.

Les clous de girofle, l'AMPK et le rééquilibrage énergétique de mTOR

Si le rapport entre l'eugénol et mTOR présente déjà en soi une importance biologique considérable, le tableau devient encore plus intéressant lorsque l'on observe le rôle de l'AMPK, le principal capteur énergétique cellulaire. Comme nous l'avons déjà évoqué dans les chapitres précédents, l'AMPK et mTOR représentent deux programmes métaboliques opposés et complémentaires : lorsque les nutriments, le glucose et l'insuline sont abondants, mTOR favorise la croissance, la synthèse protéique et le stockage énergétique ; en revanche, lorsque la cellule perçoit un stress métabolique ou une carence énergétique, l'AMPK ralentit les processus anaboliques, favorise l'autophagie et oriente le métabolisme vers l'économie d'énergie et la survie cellulaire. Dans cet équilibre dynamique, l'eugénol semble se comporter comme un modulateur capable de rétablir le dialogue correct entre ces deux systèmes.

L'un des exemples les plus clairs émerge des études sur les lésions d'ischémie-reperfusion cérébrale. Dans des modèles expérimentaux d'accident vasculaire cérébral (AVC) ischémique, l'eugénol a démontré sa capacité à réduire significativement le volume de l'infarctus cérébral, à améliorer la fonction neurologique et à atténuer l'apoptose neuronale par l'activation de la voie AMPK/mTOR (Sun et al., 2020) [25]. L'aspect le plus intéressant est que l'eugénol ne se limite pas à bloquer mTOR, mais induit une autophagie fonctionnelle et contrôlée, augmentant les principaux biomarqueurs moléculaires utilisés pour évaluer et mesurer l'autophagie. D'un point de vue physiologique, cela signifie que les cellules neuronales parviennent à éliminer les composants endommagés et à améliorer leur capacité d'adaptation au stress ischémique.

L'étude a également montré que la rapamycine, puissant inhibiteur de mTOR et activateur de l'autophagie, renforce davantage les effets neuroprotecteurs de l'eugénol, tandis que l'inhibition pharmacologique de l'AMPK annule une grande partie des bénéfices observés (Sun et al., 2020) [25]. Cette donnée confirme que l'AMPK représente le véritable « interrupteur métabolique » par lequel l'eugénol coordonne la réponse cellulaire. C'est comme si l'eugénol aidait la cellule à sortir temporairement du mode de croissance forcée imposé par mTOR, lui permettant d'entrer dans un mode de maintenance et de survie énergétique.

Cette régulation apparaît particulièrement pertinente également dans les conditions de dommage métabolique chronique. Une revue actualisée sur les propriétés de l'eugénol dans les lésions d'ischémie-reperfusion souligne en effet que l'un des principaux mécanismes cytoprotecteurs implique précisément la modulation de l'axe AMPK–mTOR (Randhawa et al., 2026) [26]. L'activation de l'AMPK réduit la consommation énergétique cellulaire, limite le stress oxydatif et favorise l'autophagie protectrice, tandis que la simultanée inhibition de l'hyperactivation de mTOR permet à la cellule de mieux s'adapter aux conditions de stress. Ce concept est particulièrement important dans le contexte moderne, caractérisé par une abondance énergétique continue et une hyperstimulation anabolique chronique.

Les auteurs soulignent également que l'eugénol module l'axe AMPK et la voie PI3K/AKT, deux systèmes étroitement liés à la survie cellulaire, à la fonction mitochondriale et à la régulation de l'apoptose (Randhawa et al., 2026) [26]. D'un point de vue biologique, cela suggère que l'eugénol n'agit pas comme un simple « inhibiteur » de voies isolées, mais comme un régulateur intégré de la réponse énergétique cellulaire, intervenant simultanément sur l'inflammation, l'autophagie, le métabolisme et la protection mitochondriale.

Cette capacité à rééquilibrer l'AMPK et mTOR émerge avec une extrême clarté également dans le métabolisme hépatique. Dans des modèles expérimentaux de stéatose hépatique induite par un régime riche en graisses, l'eugénol a réduit significativement l'accumulation lipidique intracellulaire, les triglycérides hépatiques et la progression fibrotique par l'activation de l'AMPK et la suppression concomitante de mTOR. Parallèlement, une réduction de l'expression de SREBP1 (facteur de transcription primaire qui régule le métabolisme des lipides) et des enzymes lipogéniques associées à la synthèse des acides gras a été observée (Jo et al., 2014) [27].

Ce passage est extrêmement pertinent car il relie directement le rapport entre l'AMPK et mTOR à l'un des principaux problèmes métaboliques de l'hyperinsulinémie chronique : la stéatose hépatique. En effet, lorsque mTOR reste constamment actif, le foie est poussé vers une lipogenèse (processus métabolique par lequel l'organisme produit des graisses, principalement à partir de nutriments en excès) continue, une accumulation de triglycérides et une perte progressive de la flexibilité métabolique. L'activation de l'AMPK par l'eugénol représente au contraire un signal métabolique opposé : elle augmente l'oxydation lipidique, réduit la synthèse de graisses et ramène le métabolisme hépatique vers un mode énergétiquement plus efficace.

Un aspect particulièrement intéressant apparu dans l'étude est que les effets de l'eugénol sont abolis en présence d'inhibiteurs spécifiques de l'AMPK ou de mTOR, confirmant l'implication directe de ces voies. En d'autres termes, l'amélioration de la stéatose ne découle pas d'un effet antioxydant générique, mais d'une véritable reprogrammation métabolique médiée par l'axe AMPK–mTOR (Jo et al., 2014) [27].

Dans le tissu testiculaire également, l'eugénol démontre une extraordinaire capacité adaptative. Dans des modèles de toxicité reproductive induite par l'acrylamide (un contaminant chimique qui se forme naturellement dans les aliments amylacés lors de la cuisson à haute température), l'eugénol a amélioré la qualité spermatique, la stéroïdogenèse et l'intégrité de la barrière hémato-testiculaire en modulant la voie AMPK/PI3K/AKT/mTOR. L'intoxication par l'acrylamide entraînait en effet un grave dysfonctionnement énergétique cellulaire, avec une déplétion d'ATP (la principale molécule énergétique de notre corps) et une hyperactivation pathologique de l'AMPK. L'eugénol a rétabli l'équilibre énergétique intracellulaire, normalisant le métabolisme et réduisant à la fois l'autophagie aberrante et l'apoptose excessive (Saleh et al., 2024) [23].

Cette donnée est très importante car elle montre comment l'action de l'eugénol est profondément dépendante du contexte. Dans certaines conditions pathologiques, comme la stéatose ou les lésions ischémiques, l'activation de l'AMPK et la réduction de mTOR sont protectrices ; dans d'autres conditions caractérisées par un effondrement énergétique extrême, l'eugénol contribue au contraire à rétablir un équilibre physiologique entre l'AMPK, AKT et mTOR, évitant à la fois une suppression anabolique excessive et une mort cellulaire incontrôlée.

Dans l'ensemble, les preuves disponibles font du clou de girofle l'une des épices les plus intéressantes du point de vue de la régulation énergétique cellulaire. Grâce à l'eugénol, cette épice peut moduler le délicat équilibre entre l'AMPK et mTOR, favorisant l'autophagie, la protection mitochondriale, le contrôle de la lipogenèse, l'adaptation au stress et la résilience tissulaire.

Dans un contexte caractérisé par une hyperinsulinémie chronique, un excès calorique et une stimulation anabolique continue, le rapport entre l'eugénol, l'AMPK et mTOR prend donc une signification extrêmement cohérente avec ce qui a été discuté dans les chapitres précédents : sortir la cellule d'un mode de croissance continue et métaboliquement dysfonctionnel, en lui restituant la capacité de s'adapter, de se réparer et de gérer plus efficacement ses propres ressources énergétiques.

Conclusions

Les clous de girofle illustrent parfaitement comment une épice traditionnelle peut influencer de nombreux processus biologiques. Notre parcours a débuté par les propriétés de l'eugénol, principal composé bioactif de cette épice. Les recherches expérimentales décrivent ses activités antioxydantes, anti-inflammatoires, antimicrobiennes et analgésiques. En particulier, l'eugénol peut réduire l'activité de NF-κB, la production de cytokines inflammatoires et les dommages oxydatifs, contribuant ainsi à la protection des structures cellulaires. Certaines études mettent également en évidence des effets sur la prolifération tumorale et sur l'activité antifongique contre Candida.

De ces propriétés, nous sommes passés à l'intégration, afin de comprendre quels bénéfices ont été observés chez l'homme. Une étude pilote a rapporté une réduction de la glycémie après les repas, surtout chez les sujets présentant des valeurs initiales élevées. Les recherches expérimentales suggèrent en outre des effets favorables sur le métabolisme du tissu adipeux, sur le microbiote intestinal et sur l'intégrité de la barrière intestinale. D'autres études décrivent des bénéfices possibles sur l'autophagie et sur la protection cutanée.

En élargissant notre regard aux pathologies traitées, nous avons rencontré des applications impliquant différents organes. Dans le diabète expérimental, l'eugénol améliore certains paramètres glycémiques et métaboliques. Dans la stéatose hépatique, il réduit l'accumulation lipidique, notamment par le biais de la communication entre l'intestin, le cerveau et le foie. D'autres recherches décrivent des effets sur les infections intestinales à Candida et sur l'hyperplasie bénigne de la prostate. En oncologie, les modèles précliniques montrent une réduction de la prolifération cellulaire et l'activation de l'apoptose.

Le lien entre ces conditions mène à l'insulinorésistance. Lorsque les cellules répondent moins efficacement à l'insuline, le pancréas peut augmenter sa production pour maintenir la glycémie stable. Dans ce contexte, l'eugénol semble intervenir en réduisant l'inflammation et le stress oxydatif. Une étude clinique sur un extrait polyphénolique de clous de girofle a rapporté des améliorations de l'HOMA-IR, de la glycémie et des défenses antioxydantes. Dans les modèles animaux, l'eugénol favorise également l'activation de l'AMPK et la translocation de GLUT4, facilitant l'entrée du glucose dans le muscle.

Mais par quels mécanismes cellulaires ces effets se développent-ils ? La réponse implique la voie PI3K/AKT/mTOR, fondamentale dans la régulation de la croissance et de la survie cellulaire. Dans différents modèles tumoraux, les extraits de clous de girofle et l'eugénol atténuent certains signaux de cette voie, limitant la prolifération et favorisant l'apoptose et l'autophagie. Cette dernière permet aux cellules d'éliminer et de recycler les composants endommagés. Dans le tissu testiculaire, en revanche, la modulation de ces signaux peut contribuer à la protection cellulaire.

Ce passage introduit le rôle de l'AMPK, principal capteur énergétique cellulaire. Les études expérimentales montrent que l'eugénol peut réguler l'équilibre entre l'AMPK et mTOR, favorisant l'autophagie protectrice. Des bénéfices ont été observés dans des modèles d'ischémie cérébrale, de stéatose hépatique et de toxicité reproductive. L'effet dépend toutefois du contexte : dans certaines conditions, l'activation de l'AMPK est favorisée, tandis que dans d'autres, une activité énergétique plus équilibrée est rétablie.

Le message central du chapitre émerge ainsi : les clous de girofle contiennent des substances capables d'interagir avec les mécanismes qui relient l'inflammation, la sensibilité à l'insuline et le métabolisme énergétique. Les premières preuves cliniques sont prometteuses, mais de nombreux résultats restent expérimentaux. Leur consommation alimentaire peut s'inscrire dans un mode de vie équilibré, sans pour autant attribuer à l'épice des propriétés thérapeutiques non encore démontrées.

Références

[1] Eugenol: An Insight Into the Anticancer Perspective and Pharmacological Aspects

Noman et al., 2025

Food Sci Nutr. 2025 Aug 3;13(8):e70727.

[2] Pharmacological Properties and Health Benefits of Eugenol: A Comprehensive Review

Nisar et al., 2021

Oxid Med Cell Longev. 2021 Aug 3:2021:2497354.

[3] Anticancer Properties of Eugenol: A Review

Zari et al., 2021

Molecules. 2021 Dec 6;26(23):7407.

[4] Anticancer potential of eugenol in hepatocellular carcinoma through modulation of oxidative stress, inflammation, apoptosis, and proliferation mechanisms

Zaky et al., 2025

Discov Oncol. 2025 Jun 12;16(1):1080.

[5] In vitro synergy of eugenol and methyleugenol with fluconazole against clinical Candida isolates

Ahmad et al., 2010

J Med Microbiol. 2010 Oct;59(Pt 10):1178-1184.

[6] Effects of Clove and Fermented Ginger on Blood Glucose, Leptin, Insulin and Insulin Receptor Levels in High Fat DietInduced Type 2 Diabetic Rabbits

Abdulrazak et al., 2018

Niger J Physiol Sci. 2018 Jun 30;33(1):89-93. PMID: 30091738.

[7] Water-soluble polyphenol-rich clove extract lowers pre- and post-prandial blood glucose levels in healthy and prediabetic volunteers: an open label pilot study

Mohan et al., 2019

BMC Complement Altern Med. 2019 May 7;19(1):99.

[8] Eugenol, A Major Component of Clove Oil, Attenuates Adiposity, and Modulates Gut Microbiota in High-Fat Diet-Fed Mice

Li et al., 2022

Mol Nutr Food Res. 2022 Oct;66(20):e2200387.

[9] Spermidine-Eugenol Supplement Preserved Inflammation-Challenged Intestinal Cells by Stimulating Autophagy

Truzzi et al., 2023

Int J Mol Sci. 2023 Feb 18;24(4):4131.

[10] Dietary Isoeugenol Supplementation Attenuates Chronic UVB-Induced Skin Photoaging and Modulates Gut Microbiota in Mice

Geng et al., 2024

Nutrients. 2024 Feb 7;16(4):481.

[11] Ameliorating effect of eugenol on hyperglycemia by attenuating the key enzymes of glucose metabolism in streptozotocin-induced diabetic rats

Srinivasan et al., 2014

Mol Cell Biochem. 2014 Jan;385(1-2):159-68.

[12] Eugenol alleviated nonalcoholic fatty liver disease in rat via a gut-brain-liver axis involving glucagon-like Peptide-1

Li et al., 2022

Arch Biochem Biophys. 2022 Aug 15:725:109269.

[13] Impact of Clove Essential Oil on the Intestinal Flora in Mice Infected with Candida albicans

Gao et al., 2025

Molecules. 2025 May 29;30(11):2372.

[14] Probenecid and Eugenol Mitigate Testosterone Induced Benign Prostatic Hyperplasia by Targeting Uric Acid-Induced Inflammation and Pro-Survival Pathways

Abdali et al., 2025

Prostate. 2025 Nov;85(15):1412-1423.

[15] A comprehensive and systematic review on potential anticancer activities of eugenol: From pre-clinical evidence to molecular mechanisms of action

Begum et al., 2022

Phytomedicine. 2022 Dec:107:154456.

[16] Effect of Eugenol Treatment in Hyperglycemic Animal Models: A Systematic Review and Meta-Analysis

Carvalho et al., 2021

Pharmacological Research, 2021, 165:105315.

[17] Polyphenols of Clove Buds (Syzygium aromaticum L.) Contribute to Attenuate Metabolic Syndrome by Restoring Intracellular Redox Homeostasis and Glucose Metabolism: A Randomized Double-Blinded Controlled Study

Thomas et al., 2022

Journal of Functional Foods, 2022, 98:105273.

[18] Eugenol Improves Muscle Dysfunction in High-Fat Diet and Streptozotocin-Induced Type 2 Diabetic Mice by Alleviating Inflammation and Increasing Muscle Glucose Uptake

Jiang et al., 2022

Frontiers in Nutrition, 2022, 9:1039753.

[19] Eugenol ameliorates Insulin Resistance, Oxidative Stress and Inflammation in High Fat-Diet/Streptozotocin-Induced Diabetic Rat

Al-Trad et al., 2019

Life Sciences, 2019, 216:183-188.

[20] Inhibition effect of active fraction from clove on PI3K/Akt/mTOR signaling pathway to induce apoptosis of human colon cancer HCT116 cells

Zhao et al., 2021

Zhongguo Zhong Yao Za Zhi. 2021 Mar;46(5):1197-1204.

[21] Active fraction of clove induces apoptosis via PI3K/Akt/mTOR-mediated autophagy in human colorectal cancer HCT-116 cells

Liu et al., 2018

Int J Oncol. 2018 Sep;53(3):1363-1373.

[22] Tumor suppressive roles of eugenol in human lung cancer cells

Li e Yang, 2018

Thorac Cancer. 2018 Jan;9(1):25-29.

[23] Eugenol alleviates acrylamide-induced rat testicular toxicity by modulating AMPK/p-AKT/mTOR signaling pathway and blood–testis barrier remodeling

Saleh et al., 2024

Sci Rep. 2024 Jan 22;14(1):1910.

[24] Apoptotic efficacies of AgNPs formulated by Syzygium aromaticum leaf extract on 32D-FLT3-ITD human leukemia cell line with PI3K/AKT/mTOR signaling pathway

Guo et al., 2025

Open Life Sci. 2025 Sep 23;20(1):20251161.

[25] Eugenol Attenuates Cerebral Ischemia-Reperfusion Injury by Enhancing Autophagy via AMPK-mTOR-P70S6K Pathway

Sun et al., 2020

Frontiers in Pharmacology, 2020, 11:84.

[26] Eugenol: A Promising Therapeutic Terpenoid Against Ischemia-Reperfusion Injury

Randhawa et al., 2026

EXCLI Journal, 2026, 25:222-237.

[27] Eugenol Ameliorates Hepatic Steatosis and Fibrosis by Down-Regulating of SREBP1 Gene Expression via AMPK-mTOR-p70S6K Signaling Pathway

Jo et al., 2014

Biological and Pharmaceutical Bulletin, 2014, 37(8):1341-1351.