Il libro Tutti i capitoli

La scelta di Vivere in Salute o in Malattia

Dalla variabilità glicemica all'insulino-resistenza: il circolo vizioso delle malattie moderne degenerative. Il libro di Roberto Panzironi e del dott. Armando Colonnese, capitolo per capitolo: qui le conclusioni di ogni capitolo e, in fondo, la bibliografia di ciascuno.

Cita questo articolo
Colonnese, A. & Panzironi, R. (2026). La scelta di Vivere in Salute o in Malattia. La scelta di Vivere in Salute o in Malattia. https://lifesciencehub.info/it/la-scelta-di-vivere-in-salute-o-in-malattia
La scelta di Vivere in Salute o in Malattia · Libro

ISBN 979-12-82692-02-1

  • Pubblicazione 03/11/2026
  • Aggiornamento 03/11/2026
  • Revisione 03/11/2026
  • Storia articolo
Storia dell'articolo
Date
  • Pubblicazione 03/11/2026
  • Aggiornamento 03/11/2026
  • Revisione 03/11/2026
Revisioni
  1. v1.0 — 03/11/2026 Pubblicazione iniziale dell'articolo.

LIFE Science Hub mantiene traccia di tutte le versioni pubblicate dell'articolo per garantire trasparenza editoriale. Le revisioni future verranno aggiunte qui.

Life Pathway: schema dei recettori di membrana e delle vie IRS, PI3K, AKT, AMPK, TSC1/TSC2, mTOR, REDD1 e HIF-1α che collegano alimentazione, stress, nutrienti e metabolismo cellulare
«Life Pathway»: lo schema che tiene insieme i segnali cellulari descritti nel libro. Clicca per ingrandire.

Alimentazione e cambiamenti delle nostre abitudini

Il primo capitolo ci ha invitati a osservare l’alimentazione come una parte della nostra storia biologica e quotidiana. Mangiare è un gesto abituale, spesso compiuto senza interrogarsi su ciò che accade dopo. Eppure la scelta degli alimenti, la loro lavorazione e il modo in cui vengono combinati contribuiscono a determinare le risposte dell’organismo. Da questa constatazione è nata la domanda che ha guidato il libro: quanto delle condizioni metaboliche che incontriamo oggi si intreccia con abitudini ripetute nel tempo?

Il riferimento alla tradizione alimentare mediterranea ci ha riportati alla qualità del pasto e alla sua composizione complessiva. Il suo valore, nella prospettiva sviluppata, risiede nell’attenzione agli alimenti e alla varietà delle fonti nutrizionali. Per recuperare questo significato occorre guardare oltre il nome attribuito a una dieta e considerare ciò che viene effettivamente consumato, nelle quantità e nelle combinazioni che caratterizzano la vita reale.

Abbiamo così iniziato a spostare l’attenzione dalle sole calorie alla risposta metabolica. Due pasti possono fornire energia e produrre effetti differenti sulla velocità di assorbimento dei nutrienti, sulla glicemia e sulla secrezione insulinica. Questa differenza non esaurisce il valore nutrizionale degli alimenti, ma aiuta a comprendere perché il rapporto con il cibo meriti una valutazione più ampia del semplice conteggio energetico.

Il primo risultato di questa riflessione è una maggiore attenzione alla continuità delle abitudini. La salute metabolica si costruisce attraverso comportamenti che si ripetono, all’interno di condizioni personali e ambientali che possono renderli più facili o più difficili. Per questo una scelta alimentare utile deve poter entrare nella quotidianità, mantenendo adeguatezza nutrizionale e sostenibilità. La conoscenza serve a rendere tali scelte comprensibili, evitando che dipendano soltanto da divieti o da entusiasmo momentaneo.

Con questa prospettiva, il nostro percorso ha trovato il proprio punto di partenza concreto. Il cibo introduce sostanze che l’organismo deve riconoscere, distribuire e utilizzare; la risposta a questo ingresso racconta qualcosa della sua capacità di adattamento. Seguire il destino del glucosio ci ha permesso di entrare in tale processo e di comprendere perché un valore misurato nel sangue sia soltanto una parte della storia.

Glicemia e insulina nella risposta al pasto

Dal cibo siamo passati alla risposta che il pasto produce nell’organismo. Il glucosio assorbito raggiunge il sangue, mentre il pancreas e i tessuti coordinano il suo utilizzo. La glicemia descrive un risultato di questo lavoro: per interpretarla occorre considerare i processi che l’hanno determinata. Quantità dei carboidrati, struttura degli alimenti, fibre, lavorazione e composizione del pasto contribuiscono insieme alla velocità con cui il glucosio diventa disponibile.

In questo quadro abbiamo incontrato indice e carico glicemico. Il primo aiuta a confrontare la risposta a differenti fonti di carboidrati; il secondo introduce anche la quantità consumata. Sono strumenti di lettura, da inserire nel contesto del pasto e delle caratteristiche individuali. Proteine, grassi e fibre modificano infatti digestione, assorbimento e risposta ormonale, rendendo insufficiente la valutazione di un alimento attraverso un unico numero.

Anche l’insulina richiede la stessa attenzione. La sua secrezione risponde al glucosio, ma integra ulteriori segnali, tra cui aminoacidi e ormoni intestinali. Il Food Insulin Index ci ha aiutati a riconoscere che una risposta insulinica non coincide automaticamente con quella glicemica. Inoltre, prima di raggiungere pienamente la circolazione periferica, l’insulina attraversa il fegato, che ne rimuove una parte. La concentrazione misurata dipende quindi sia dalla produzione pancreatica sia dalla clearance, cioè dalla rimozione dell’ormone.

Questa distinzione ha ampliato anche il significato degli esami. La glicemia a digiuno fotografa una condizione basale; l’emoglobina glicata restituisce un’informazione sull’esposizione media al glucosio; il test da carico osserva la risposta a uno stimolo definito. Nel capitolo, l’attenzione alla glicemia a un’ora ci ha mostrato come alcuni segnali di difficoltà possano emergere prima delle alterazioni più evidenti. Nessuno di questi dati, considerato isolatamente, racconta però l’intero funzionamento metabolico.

La conclusione è un invito a leggere il metabolismo nel tempo. Una glicemia apparentemente conservata può essere sostenuta da un impegno crescente dei sistemi regolatori. Comprendere questa possibilità permette di valorizzare la prevenzione e la valutazione complessiva della persona. Il passo successivo è stato dunque osservare che cosa accade quando le oscillazioni aumentano e la collaborazione tra pancreas, fegato e tessuti comincia a perdere efficienza.

Variabilità glicemica e alterazioni che precedono il diabete

Seguire il glucosio nel tempo ci ha fatto riconoscere una dimensione che la singola misurazione lascia nascosta: la variabilità glicemica. Il glucosio oscilla fisiologicamente, ma l’ampiezza e la frequenza delle escursioni possono cambiare lungo il percorso verso il prediabete e il diabete. Il monitoraggio continuo e i suoi indicatori hanno reso osservabili questi andamenti, mostrando come una media simile possa accompagnarsi a profili quotidiani differenti.

Le ricerche esaminate collegano una maggiore instabilità glicemica a stress ossidativo, infiammazione e alterazioni vascolari. I modelli sperimentali mostrano inoltre come l’esposizione intermittente a concentrazioni elevate di glucosio possa danneggiare le cellule β pancreatiche. Queste osservazioni ci hanno aiutati a comprendere un possibile circuito: la difficoltà nel regolare il glucosio può aumentare il carico sulle cellule che partecipano proprio alla sua regolazione.

La funzione pancreatica va quindi interpretata in rapporto alle necessità dei tessuti. Una quantità elevata di insulina non garantisce una risposta adeguata, se la sensibilità all’ormone è ridotta. Per la stessa ragione, la concentrazione circolante non descrive da sola quanto il pancreas stia producendo. Il fegato, attraverso la clearance insulinica, modifica l’esposizione dell’organismo all’ormone; una sua riduzione può contribuire all’iperinsulinemia anche senza un aumento equivalente della secrezione.

È qui che abbiamo approfondito uno dei temi centrali dell’opera: il rapporto bidirezionale tra iperinsulinemia e insulino-resistenza. La resistenza può indurre una risposta compensatoria del pancreas; in alcuni contesti, un’esposizione insulinica elevata e persistente può a sua volta contribuire alla desensibilizzazione dei tessuti. Secrezione, rimozione e risposta cellulare si influenzano reciprocamente, con un peso che cambia tra persone e fasi della disfunzione metabolica.

Questa lettura rende più comprensibile la gradualità del deterioramento. La comparsa dell’iperglicemia manifesta può essere preceduta da anni di adattamenti, durante i quali il sistema mantiene alcuni risultati al prezzo di un crescente squilibrio. L’interesse per tali passaggi riguarda la possibilità di riconoscere precocemente una traiettoria sfavorevole, attraverso una valutazione appropriata. Per capire come un segnale possa progressivamente perdere efficacia, siamo allora entrati nella cellula, seguendo le proteine che traducono il messaggio dell’insulina in azione.

Il segnale insulinico e la capacità della cellula di adattarsi

Entrare nel pathway dell’insulina ha significato osservare ciò che accade dopo il legame dell’ormone al suo recettore. IRS-1 e IRS-2 partecipano alla trasmissione del messaggio, PI3K ne sostiene la propagazione e AKT contribuisce a trasformarlo in risposte metaboliche e di sopravvivenza. La disponibilità di nutrienti diventa così un’informazione capace di orientare l’utilizzo del glucosio, la sintesi e la conservazione delle risorse.

Il percorso raggiunge quindi il sistema TSC1/TSC2 e mTOR, uno dei principali punti di integrazione tra energia, nutrienti e segnali di crescita. Abbiamo distinto mTORC1 e mTORC2, complessi con funzioni differenti e interconnesse. Il primo partecipa al controllo della sintesi e dell’autofagia; il secondo contribuisce, tra le altre funzioni, alla regolazione di AKT. Questa distinzione è necessaria per capire perché modificare mTOR possa avere conseguenze diverse secondo il contesto.

Quando mTORC1 è persistentemente stimolato, il circuito che coinvolge S6K1 può attenuare il segnale a monte, interferendo con IRS. Un sistema di controllo fisiologico può così partecipare alla riduzione della risposta insulinica. D’altra parte, anche compromettere funzioni necessarie di mTOR può alterare il metabolismo. Il messaggio emerso è quindi la necessità di preservare una regolazione appropriata: crescita, riparazione e ricambio richiedono tempi e condizioni differenti.

In questa rete abbiamo incontrato HIF-1α e REDD1. Il primo collega i segnali metabolici all’adattamento cellulare, soprattutto in relazione all’ossigenazione; il secondo partecipa alla risposta allo stress e può contenere mTORC1 attraverso il sistema TSC. Questi regolatori mostrano come la cellula integri informazioni che arrivano da più direzioni. Il cibo è una di esse, insieme allo stato energetico e alle condizioni del tessuto.

Il valore di questa tappa non consiste nel memorizzare tutte le sigle. Consiste nel riconoscere che la risposta insulinica dipende da una comunicazione distribuita e regolata, la cui efficacia può cambiare nel tempo. L’insulina mantiene un ruolo indispensabile; comprenderne gli eccessi e le alterazioni significa proteggere la qualità del suo segnale. Da qui siamo passati a una conseguenza più ampia: gli stessi circuiti che orientano il metabolismo possono dialogare con quelli che sostengono l’infiammazione.

Il dialogo tra metabolismo e infiammazione

Il collegamento con l’infiammazione ci ha portati oltre la distribuzione dell’energia. Abbiamo osservato come una stimolazione metabolica persistente possa influenzare la disponibilità di sostanze utilizzate per produrre mediatori infiammatori. In questa prospettiva, l’iperinsulinemia rappresenta uno dei possibili elementi di un ambiente biologico alterato, capace di intrecciarsi con i processi attraverso cui le cellule comunicano un danno o uno stato di attivazione.

Il percorso descritto parte dal metabolismo dei lipidi. Attraverso SREBP-1c e gli enzimi desaturasi, il segnale insulinico può contribuire a modificare la produzione di acido arachidonico. Questo acido grasso appartiene alla normale fisiologia delle membrane e costituisce il precursore di diversi mediatori. La sua presenza diventa rilevante per la cascata infiammatoria quando altri segnali ne consentono la liberazione e l’utilizzo.

Abbiamo seguito questo secondo passaggio attraverso MAPK/ERK, calcio intracellulare e cPLA2α, l’enzima che può rendere disponibile l’acido arachidonico dai fosfolipidi di membrana. Successivamente, COX-2 partecipa alla produzione di prostaglandina E2. Nei contesti descritti, il segnale della prostaglandina, mediato dal recettore EP4, può comunicare con EGFR e tornare a coinvolgere PI3K, AKT e mTOR. Il metabolismo lipidico e la segnalazione della crescita possono dunque inserirsi in circuiti di reciproca influenza.

Questa sequenza ci ha permesso di attribuire un significato concreto all’espressione infiammazione metabolica. Una modifica nell’utilizzo dei nutrienti può contribuire a cambiare i messaggi ricevuti dalle cellule vicine, con effetti sull’ambiente del tessuto. La ricostruzione di un meccanismo mostra una possibilità biologica; la sua rilevanza effettiva dipende dall’intensità dello stimolo, dalla durata e dalle altre condizioni presenti nell’organismo.

L’attenzione si è quindi spostata dai mediatori alle cellule che li producono e li interpretano. Il macrofago può richiamare altre difese, rilasciare citochine e influenzare la riparazione. Un fenomeno intracellulare assume così una dimensione collettiva, coinvolgendo tessuti e organi. Per comprendere come una risposta venga avviata, amplificata e infine contenuta, è diventato necessario conoscere il sistema immunitario e i meccanismi energetici che sostengono le sue diverse funzioni.

Le difese immunitarie e il loro equilibrio metabolico

Con il sistema immunitario abbiamo incontrato una rete capace di riconoscere minacce, organizzare risposte e limitare i danni ai tessuti. L’immunità innata offre una prima capacità di intervento, mentre quella adattativa sviluppa risposte più specifiche attraverso i linfociti T e B. La collaborazione tra questi sistemi richiede comunicazione, energia e controllo: attivarsi è necessario, ma lo è anche interrompere una risposta quando ha esaurito la propria funzione.

Le cellule immunitarie adattano il metabolismo al compito da svolgere. I programmi infiammatori spesso si accompagnano a un maggiore ricorso alla glicolisi, mentre alcune funzioni regolatorie e riparative dipendono maggiormente dal metabolismo ossidativo. Le descrizioni dei macrofagi come M1 e M2 ci hanno aiutati a orientare questa distinzione, pur rappresentando semplificazioni di comportamenti cellulari più variabili. Da questo rapporto tra funzione ed energia nasce l’immunometabolismo.

mTOR e AMPK partecipano al coordinamento di tali programmi. mTORC1 sostiene processi necessari all’attivazione e alla crescita delle cellule effettrici; AMPK contribuisce all’adattamento energetico e può limitare attività anaboliche dispendiose. HIF-1α collega parte di questa segnalazione alla glicolisi e alla differenziazione immunitaria. Le stesse proteine già incontrate nel metabolismo acquistano così un significato ulteriore: contribuiscono a orientare il modo in cui le difese utilizzano le proprie risorse.

Il rapporto tra cellule Th17 e Treg ha reso particolarmente evidente questa connessione. Le prime partecipano a risposte infiammatorie; le seconde aiutano a mantenere la tolleranza verso l’organismo. FOXP3 è essenziale per l’identità e la funzione regolatoria delle Treg. Le ricerche su rapamicina, glucocorticoidi e vitamina D hanno mostrato che intervenire su segnali metabolici può modificare questi equilibri, con effetti dipendenti dalle cellule e dalle condizioni studiate.

Abbiamo quindi compreso che una difesa efficace richiede proporzione, durata e capacità di regolazione. Potenziare indiscriminatamente l’immunità non descrive un obiettivo biologico sufficiente; occorre preservare la risposta appropriata al contesto. Questa consapevolezza ci ha preparati a leggere le malattie autoimmuni, nelle quali la tolleranza può deteriorarsi e l’attivazione immunitaria contribuire al danno. La prima tappa di questo passaggio ci ha portati alle articolazioni, dove l’artrite reumatoide rende tangibile il dialogo tra infiammazione e metabolismo.

Artrite reumatoide e metabolismo della risposta articolare

Nell’artrite reumatoide il percorso molecolare ha incontrato una malattia che può incidere profondamente sul movimento, sul dolore e sulla vita quotidiana. L’infiammazione articolare coinvolge cellule immunitarie e tessuti sinoviali, all’interno di un processo autoimmune complesso. Osservarla attraverso l’immunometabolismo ci ha permesso di ampliare la comprensione di ciò che sostiene la risposta infiammatoria, mantenendo al centro la persona e le conseguenze concrete della malattia.

Il primo elemento emerso riguarda l’equilibrio tra le popolazioni linfocitarie. Le Th17 e i loro mediatori possono contribuire all’infiammazione, mentre le Treg partecipano al suo contenimento. Anche le relazioni tra Tfh, Tfr e linfociti B aiutano a comprendere la produzione di autoanticorpi. Quando questi sistemi non si coordinano adeguatamente, la risposta può mantenersi nel tempo e coinvolgere progressivamente l’ambiente articolare.

Le ricerche considerate hanno inoltre documentato alterazioni della sensibilità insulinica, presenti in alcuni pazienti già nelle fasi precoci e non spiegabili soltanto dai trattamenti con glucocorticoidi. Questo dato suggerisce un’interazione continua tra attività infiammatoria e metabolismo.

mTOR rappresenta uno dei punti in cui questi aspetti possono convergere. La sua attività partecipa ai programmi delle cellule effettrici, alla proliferazione sinoviale e all’angiogenesi. Attraverso HIF-1α e la glicolisi, i segnali di crescita possono sostenere le esigenze energetiche delle cellule coinvolte. Gli studi sugli inibitori di mTOR mostrano l’interesse di questa connessione come bersaglio di ricerca. Anche la vitamina D è stata esaminata per il suo rapporto con tolleranza immunitaria e attività della malattia.

La lezione che conserviamo riguarda l’ampiezza dello sguardo. Il controllo della malattia richiede cure specifiche, mentre la salute metabolica costituisce una dimensione rilevante della presa in carico complessiva. Conoscere queste relazioni aiuta a comprendere perché organi e sistemi apparentemente lontani possano influenzarsi. Dall’articolazione siamo quindi passati alla pelle: nella psoriasi, una manifestazione immediatamente visibile ci ha mostrato ancora una volta processi che si estendono oltre il tessuto in cui compaiono.

Psoriasi e segnali che attraversano la pelle

La psoriasi ci ha insegnato a guardare oltre la superficie. Le manifestazioni cutanee rendono visibile una condizione nella quale proliferazione dei cheratinociti, attività immunitaria e mediatori infiammatori si influenzano reciprocamente. La pelle diventa così il luogo in cui possiamo osservare gli effetti di una comunicazione biologica alterata, senza che le dimensioni di una lesione descrivano da sole la complessità della persona che la presenta.

L’attenzione alle cellule Th17, a IL-17 e agli altri mediatori ci ha riportati al rapporto tra risposta effettrice e controllo regolatorio. Le Treg possono risultare meno efficaci o perdere stabilità nell’ambiente infiammatorio. Nel frattempo, i cheratinociti partecipano attivamente al processo, modificando crescita e comunicazione con le difese. La persistenza dell’infiammazione dipende quindi da più protagonisti, che contribuiscono a mantenere il microambiente cutaneo alterato.

A questa dimensione si affianca quella metabolica. Negli studi esaminati, iperinsulinemia e ridotta sensibilità insulinica sono state osservate anche in persone senza diabete manifesto e, in alcuni casi, senza obesità. Il dato invita a considerare condizioni che possono restare poco evidenti guardando soltanto la glicemia o il peso. Le associazioni cardiovascolari e metaboliche rafforzano l’importanza di una valutazione complessiva, oltre al trattamento delle manifestazioni cutanee.

Nel tessuto psoriasico abbiamo ritrovato PI3K/AKT/mTOR e HIF-1α. Questi segnali possono sostenere il metabolismo glicolitico necessario alla proliferazione epidermica e all’attività di alcune cellule immunitarie. Le ricerche sulla loro modulazione mostrano come il controllo della crescita e quello dell’infiammazione possano condividere bersagli. La vitamina D aggiunge un altro collegamento, attraverso la regolazione della differenziazione cutanea e dell’immunità.

Questa tappa ci ha avvicinati a una consapevolezza concreta: prendersi cura della salute significa considerare anche ciò che non è immediatamente visibile. La malattia non definisce la persona e non autorizza giudizi sulle sue abitudini. Offre invece un motivo per integrare le conoscenze e individuare bisogni diversi. Lo stesso sguardo diventa ancora più necessario quando l’autoimmunità può interessare organi differenti, come abbiamo incontrato nel lupus eritematoso sistemico.

Lupus e complessità della tolleranza immunitaria

Nel lupus eritematoso sistemico abbiamo incontrato una perdita della tolleranza capace di coinvolgere organi differenti e di manifestarsi con quadri clinici molto variabili. Questa diversità ci ha ricordato quanto sia importante conservare una visione d’insieme. Gli autoanticorpi e l’attivazione dei linfociti B rappresentano una parte del processo, inserita in una rete di relazioni tra difese, tessuti e segnali metabolici.

Gli equilibri tra Tfh e Tfr, così come quelli tra Th17 e Treg, hanno mostrato l’importanza dei sistemi che coordinano e contengono la risposta. Quando prevalgono alcuni programmi effettori e la regolazione diventa insufficiente, può aumentare la capacità di mantenere l’infiammazione. Il metabolismo accompagna questi cambiamenti: glicolisi, utilizzo della glutammina e attività mitocondriale contribuiscono a fornire le risorse necessarie alle diverse popolazioni cellulari.

Le alterazioni insuliniche descritte negli studi hanno ampliato ulteriormente il quadro. Una ridotta sensibilità all’insulina può essere presente anche con glicemia normale e in fasi clinicamente poco attive. La sua osservazione in popolazioni differenti suggerisce che l’interazione metabolica meriti attenzione, senza ricondurla automaticamente a un unico farmaco o a una sola caratteristica della malattia. Anche qui, la direzione dei rapporti richiede una lettura prudente e contestuale.

mTOR e HIF-1α ci hanno offerto un collegamento tra questi livelli. La loro attività può sostenere programmi glicolitici e risposte effettrici, mentre alterazioni dell’autofagia e dei mitocondri contribuiscono al quadro cellulare. Gli studi sul sirolimus hanno mostrato come alcune di queste connessioni possano diventare oggetto di ricerca terapeutica. La vitamina D è stata considerata per la relazione con lo stato immunitario e con l’equilibrio tra popolazioni regolatorie ed effettrici.

Il valore di questa tappa consiste nell’averci avvicinati a una malattia complessa conservando la distinzione tra meccanismi condivisi e caratteristiche individuali. Una rete comune aiuta a formulare domande e a interpretare osservazioni; la scelta delle cure richiede prove e valutazioni specifiche. Con questa attenzione siamo passati a un altro ambiente nel quale la tolleranza è indispensabile ogni giorno: l’intestino, che deve conciliare contatto con il mondo esterno, assorbimento dei nutrienti e protezione dell’organismo.

Intestino e mantenimento della barriera immunitaria

Nelle malattie infiammatorie croniche intestinali il rapporto tra difesa e tolleranza assume un significato immediato. La mucosa intestinale partecipa all’assorbimento e, nello stesso tempo, costituisce un’interfaccia con l’ambiente esterno. Malattia di Crohn e colite ulcerosa presentano differenze importanti, ma condividono una risposta infiammatoria persistente o ricorrente che può incidere profondamente sulla qualità della vita e sullo stato nutrizionale.

Il percorso ha evidenziato il ruolo delle popolazioni Th17 e Treg, insieme a quello dei macrofagi e delle cellule epiteliali. Il problema riguarda la capacità di mantenere una risposta proporzionata, proteggendo il tessuto mentre si affrontano gli stimoli. L’attività immunitaria richiede energia, e i programmi metabolici contribuiscono a orientarla. Per questo la barriera e le difese non possono essere comprese separandole dalle condizioni energetiche delle cellule.

Le associazioni tra indicatori metabolici, come l’indice TyG, e rischio di malattia hanno aperto un’ulteriore prospettiva. Questi dati suggeriscono possibili collegamenti tra disfunzione metabolica e infiammazione intestinale, aiutandoci a riconoscere che la salute intestinale si inserisce nel quadro dell’intero organismo, con influenze che possono procedere in entrambe le direzioni.

Abbiamo ritrovato mTOR e HIF-1α nei programmi che sostengono glicolisi e attività infiammatoria. Nei modelli esaminati, la modulazione di queste vie può modificare popolazioni immunitarie, autofagia e integrità della barriera. Gli studi con inibitori di mTOR e composti naturali hanno fornito indicazioni di ricerca, mentre le osservazioni sulla vitamina D hanno richiamato l’attenzione sullo stato nutrizionale e sulla regolazione immunitaria. La funzione di ogni segnale resta legata al tipo di cellula e al contesto.

Da questa tappa emerge il valore di una cura che consideri infiammazione, nutrizione e condizioni generali insieme. La comprensione biologica rende più chiaro perché un problema intestinale possa avere conseguenze che oltrepassano l’apparato digerente. Lo stesso dialogo tra immunità e metabolismo si ritrova in tessuti con esigenze molto differenti. Nel capitolo successivo lo abbiamo seguito fino al sistema nervoso, dove la sclerosi multipla pone in primo piano la protezione e la riparazione della mielina.

Sclerosi multipla e protezione del sistema nervoso

Con la sclerosi multipla l’attenzione si è spostata verso un tessuto nel quale la comunicazione richiede un’organizzazione particolarmente delicata. Il coinvolgimento autoimmune della mielina si accompagna a processi infiammatori che possono alterare la funzione neurologica. Comprenderne la componente metabolica ci ha consentito di affiancare alla descrizione del danno una domanda ulteriore: quali risorse e quali segnali sostengono le cellule che lo favoriscono e quelle che tentano di ripararlo?

Le ricerche sulle Treg hanno evidenziato il ruolo della tolleranza, mentre Th1, Th17 e relazioni tra linfociti T e B hanno mostrato differenti contributi alla risposta autoimmune. Anche la microglia, parte delle difese del sistema nervoso, partecipa alla costruzione dell’ambiente infiammatorio. Il metabolismo delle singole popolazioni diventa così rilevante per comprendere come esse si attivino e come mantengano la propria funzione nel tessuto.

Negli studi esaminati, alterazioni della sensibilità insulinica e risposte insuliniche aumentate sono state osservate anche nelle fasi iniziali della malattia. Il collegamento con marcatori infiammatori e disabilità suggerisce un intreccio che merita attenzione. La presenza di questi rapporti amplia la valutazione della persona, senza consentire di ricondurre la sclerosi multipla a una sola alterazione metabolica o di dedurne automaticamente un intervento risolutivo.

La distinzione più importante emersa riguarda mTOR. In alcuni compartimenti immunitari la sua attività può sostenere programmi patogeni; negli oligodendrociti contribuisce invece a funzioni necessarie alla mielinizzazione. HIF-1α e glicolisi completano il collegamento con le risposte effettrici. Gli esperimenti di modulazione della via devono quindi essere interpretati tenendo presenti cellule, tempi e obiettivi diversi. Anche la vitamina D entra in questa rete, con associazioni e risultati che vanno letti secondo il livello delle evidenze.

Questa tappa rende particolarmente chiaro un principio dell’intero libro: una stessa proteina può partecipare sia alla disfunzione sia al recupero, secondo il contesto in cui opera. La salute richiede coordinamento tra difesa e riparazione. Dopo aver osservato questa esigenza nel sistema nervoso, abbiamo seguito il rapporto tra autoimmunità e metabolismo in una ghiandola che contribuisce a regolare l’attività dell’organismo: la tiroide, protagonista della successiva riflessione sulla malattia di Hashimoto.

Hashimoto e intreccio tra immunità e funzione tiroidea

La tiroidite di Hashimoto ci ha permesso di osservare l’incontro tra sistema immunitario e regolazione endocrina. La perdita della tolleranza verso componenti della tiroide può accompagnarsi a un danno progressivo della ghiandola, con conseguenze che dipendono dalla funzione residua e dal decorso individuale. Seguire questo processo ci ha aiutati a comprendere perché la valutazione di una malattia autoimmune endocrina debba considerare più livelli contemporaneamente.

Abbiamo ritrovato lo squilibrio tra Th17 e Treg e il ruolo delle popolazioni regolatorie nel contenimento della risposta. All’interno del tessuto, stress ossidativo, autofagia e segnali di crescita possono influenzare la capacità delle cellule di mantenersi funzionali. L’autoimmunità coinvolge quindi un dialogo tra le difese e le condizioni delle cellule bersaglio, che partecipano a loro volta all’ambiente nel quale la risposta si sviluppa.

Le osservazioni sull’insulino-resistenza hanno aggiunto una dimensione metabolica. Negli studi considerati, la ridotta sensibilità insulinica è stata documentata anche in persone con funzione tiroidea conservata. Questa associazione suggerisce che autoimmunità e metabolismo possano interagire oltre gli effetti delle variazioni ormonali. Il peso dei diversi fattori resta individuale e richiede una lettura complessiva, nella quale trovano spazio adiposità viscerale e altre condizioni concomitanti.

A livello molecolare, PI3K/AKT/mTOR e HIF-1α collegano crescita, autofagia e programmi energetici delle cellule immunitarie. I risultati sperimentali con rapamicina e altri composti mostrano come la modulazione di questi segnali possa ridurre alcuni aspetti del danno nei modelli studiati. La vitamina D è stata analizzata per gli effetti su autoanticorpi e regolazione immunitaria. Tali osservazioni arricchiscono la comprensione biologica, mantenendo distinti i risultati preclinici dalle terapie consolidate.

Il messaggio che resta riguarda la possibilità di riconoscere bisogni complementari: preservare la funzione endocrina, seguire il processo autoimmune e considerare lo stato metabolico e nutrizionale. La conoscenza dei collegamenti aiuta a evitare una lettura frammentata degli esami e dei sintomi. Da questa ghiandola siamo passati al pancreas, dove la perdita della tolleranza colpisce proprio le cellule produttrici dell’ormone che ci ha accompagnati fin dall’inizio: l’insulina, indispensabile per comprendere il diabete di tipo 1.

Diabete di tipo 1 e perdita delle cellule pancreatiche

Nel diabete di tipo 1 il legame tra immunità e metabolismo diventa particolarmente evidente. La risposta autoimmune danneggia le cellule β pancreatiche, riducendo progressivamente la capacità di produrre insulina. L’ormone che abbiamo seguito come segnale metabolico assume qui il significato concreto di una funzione che deve essere sostituita quando viene meno. Questa caratteristica distingue la malattia e rende essenziale conservarne la specificità lungo tutta la riflessione.

Il percorso ha mostrato che la tolleranza dipende dalla funzione delle Treg, oltre che dal loro numero. Una regolazione insufficiente può lasciare spazio alle popolazioni autoreattive, comprese quelle che partecipano alla risposta contro le cellule pancreatiche. Le ricerche sull’espansione o sul trasferimento delle Treg hanno illustrato l’interesse verso strategie capaci di recuperare un controllo più selettivo della risposta immunitaria.

Anche la sensibilità insulinica può modificare il quadro. In alcuni soggetti a rischio e nelle persone con malattia conclamata è stata osservata una ridotta efficacia dell’insulina disponibile. Questo elemento può aumentare la complessità metabolica senza sostituire il ruolo centrale della perdita autoimmune delle cellule β. La disponibilità dell’ormone e la risposta dei tessuti sono dimensioni differenti, che possono influenzarsi nel determinare il controllo glicemico.

mTOR, HIF-1α e glicolisi partecipano ai programmi energetici delle cellule effettrici, mentre AMPK e autofagia sono stati esaminati anche in relazione alla resilienza delle cellule pancreatiche. Gli studi sulla rapamicina hanno evidenziato opportunità e limiti di una modulazione che deve rispettare funzioni diverse. La vitamina D è stata considerata per i possibili rapporti con tolleranza e metabolismo, senza che tali risultati modifichino la necessità della terapia insulinica quando indicata.

La lezione di questo capitolo è dunque duplice: riconoscere i meccanismi condivisi e proteggere le differenze cliniche. La cura metabolica accompagna una malattia la cui origine autoimmune può essere attribuita anche ad una scelta alimentare. Comprendere questo passaggio consente di affrontare con maggiore precisione quello successivo. Nel diabete di tipo 2, infatti, la perdita della funzione pancreatica si inserisce in una storia diversa, nella quale sensibilità dei tessuti, secrezione e clearance dell’insulina assumono rapporti caratteristici.

Diabete di tipo 2 e progressivo deterioramento metabolico

Il diabete di tipo 2 ci ha riportati ai segnali precoci incontrati all’inizio dell’opera, mostrando come possano inserirsi in un processo lungo e articolato. L’aumento della glicemia rappresenta un elemento centrale della diagnosi, ma la malattia coinvolge l’interazione tra pancreas, fegato, muscolo e tessuto adiposo. Nel tempo può accompagnarsi a complicanze che interessano numerosi organi, rendendo evidente la dimensione sistemica dello squilibrio metabolico.

Le escursioni postprandiali e la variabilità glicemica possono aumentare prima dell’iperglicemia più stabile. La composizione dei pasti influenza queste risposte e offre uno dei punti sui quali intervenire. Gli studi sulle strategie alimentari a ridotto contenuto di carboidrati hanno mostrato possibili benefici sul controllo glicemico, da interpretare insieme alla qualità degli alimenti, all’aderenza e alle esigenze individuali. Il valore di una strategia si misura anche nella possibilità di mantenerla adeguatamente nel tempo.

Il deterioramento delle cellule β comprende alterazioni della risposta insulinica precoce e della capacità di compensare le richieste dell’organismo. Parallelamente, una riduzione della clearance può aumentare l’esposizione all’insulina. Iperinsulinemia e insulino-resistenza possono così contribuire a circuiti di reciproco rafforzamento. Esiste quindi una relazione dinamica tra produzione, rimozione ed efficacia dell’ormone.

All’interno della cellula, il feedback di mTORC1 e S6K1 su IRS aiuta a comprendere uno dei meccanismi che possono ridurre la qualità del segnale. AMPK richiama invece la capacità di adattarsi alla richiesta energetica e di sostenere l’utilizzo delle risorse. Quando lo squilibrio persiste, stress ossidativo, glucotossicità, lipotossicità e difficoltà mitocondriali possono convergere sul pancreas, riducendone la capacità funzionale.

Il significato preventivo di questa ricostruzione è riconoscere che il decorso metabolico si sviluppa nel tempo e può essere affrontato attraverso interventi nutrizionali appropriati nelle diverse fasi. Una diagnosi richiede cure; i segnali che la precedono meritano attenzione e valutazione. Questa visione ci ha poi condotti oltre il metabolismo periferico, verso un organo che dipende continuamente dalla disponibilità di energia: il cervello. Nell’Alzheimer abbiamo osservato come segnalazione insulinica, utilizzo del glucosio e manutenzione cellulare possano intrecciarsi con il deterioramento neurologico.

Alzheimer e fragilità del metabolismo cerebrale

Nel capitolo dedicato all’Alzheimer abbiamo ampliato la prospettiva sulla neurodegenerazione, affiancando all’accumulo di beta-amiloide e tau il problema dell’equilibrio energetico del cervello. I neuroni devono mantenere comunicazione, integrità e ricambio delle proprie componenti. Quando queste funzioni perdono coordinamento, le alterazioni possono influenzarsi reciprocamente, contribuendo alla progressiva vulnerabilità delle reti che sostengono memoria e capacità cognitive.

La ridotta risposta cerebrale all’insulina è stata esaminata come parte di questo quadro e può essere osservata anche in assenza di diabete. I modelli descritti collegano il segnale insulinico alla gestione della beta-amiloide, alla processazione delle proteine e all’autofagia. L’enzima IDE, coinvolto nella degradazione sia dell’insulina sia della beta-amiloide, introduce un ulteriore possibile punto di interazione, la cui rilevanza dipende dal contesto biologico.

mTOR partecipa a funzioni necessarie alla plasticità sinaptica e alla memoria. Una sua regolazione alterata può però accompagnarsi a una minore capacità di ricambio e all’accumulo di componenti dannose. Anche il feedback su IRS e la regolazione di AKT e GSK3β aiutano a ricostruire possibili collegamenti con le modificazioni della tau. La comprensione di questi meccanismi richiede di preservare il ruolo fisiologico delle stesse proteine coinvolte nella disfunzione.

Abbiamo inoltre seguito il glutammato, la cui comunicazione deve essere controllata per evitare un’eccitazione eccessiva. Le alterazioni del rilascio e della rimozione possono aggravare lo stress neuronale. Nel frattempo, difficoltà mitocondriali e modificazioni dei trasportatori GLUT1 e GLUT3 possono ridurre la disponibilità effettiva di energia. HIF-1α entra in questa rete come regolatore di risposte metaboliche, mostrando ancora una volta effetti legati al tessuto e alle condizioni considerate.

Il capitolo ci ha quindi consegnato una lettura nella quale proteine, segnali e metabolismo partecipano allo stesso problema biologico. Le associazioni metaboliche non equivalgono a una spiegazione unica dell’Alzheimer, ma contribuiscono a comprenderne la complessità. Da un tessuto che fatica a mantenere le proprie funzioni siamo passati a cellule capaci di riorganizzare le risorse per sostenere una crescita patologica. È questo cambiamento di prospettiva che ci ha introdotti al metabolismo dei tumori.

Tumori e organizzazione del microambiente metabolico

Nei tumori abbiamo osservato come una cellula possa modificare l’utilizzo delle risorse e la comunicazione con l’ambiente circostante. Le alterazioni genetiche conservano un ruolo essenziale, mentre metabolismo, segnali di crescita e interazioni con altre cellule contribuiscono alla complessità del processo. La prospettiva dell’opera ci ha portati a seguire questi collegamenti, distinguendo ciò che sostiene una possibilità biologica da ciò che dimostra un beneficio terapeutico.

L’insulina trasmette anche segnali di crescita e sopravvivenza. Le associazioni epidemiologiche tra iperinsulinemia, insulino-resistenza e alcune condizioni oncologiche hanno introdotto una domanda sul contesto metabolico in cui le neoplasie si sviluppano. Attraverso PI3K, AKT e mTOR, tali segnali possono interagire con programmi di sintesi e proliferazione. Il loro significato dipende però dalle caratteristiche del tumore e dalle alterazioni presenti nelle cellule.

La crescita richiede materiali oltre che energia. L’effetto Warburg descrive il ricorso accentuato alla glicolisi, anche quando l’ossigeno è disponibile, osservato in molte cellule neoplastiche. HIF-1α contribuisce all’adattamento alle condizioni di ossigenazione e alla regolazione di trasportatori ed enzimi. Il glucosio entra così in programmi metabolici che possono sostenere la costruzione di nuove componenti cellulari e la produzione di lattato.

Proprio il lattato ha ampliato la nostra comprensione. Attraverso MCT1 e MCT4 può essere scambiato tra cellule, diventando una risorsa in alcuni compartimenti del tumore. La sua attività di segnale e i processi di lattilazione collegano metabolismo e regolazione cellulare. I fibroblasti associati al tumore partecipano a questi scambi: nell’effetto Warburg inverso, alcune cellule dello stroma forniscono metaboliti utilizzabili dalle cellule neoplastiche. Il tessuto tumorale appare così come un ambiente cooperativo ed eterogeneo.

Questa organizzazione interagisce con i sistemi che controllano il danno e la proliferazione. p53 contribuisce alla sorveglianza cellulare; il rapporto tra AKT, MDM2 e p53 mostra come segnali di sopravvivenza possano interferire con tale protezione. AMPK e TSC1/TSC2 aggiungono connessioni con il controllo di mTOR. Lo sviluppo del tumore dipende quindi anche dalla capacità delle cellule alterate di superare i limiti normalmente imposti alla crescita.

Il microambiente comprende inoltre le difese immunitarie. Ipossia, lattato e adenosina possono favorire condizioni che riducono l’efficacia della risposta antitumorale. CD39 e CD73 partecipano alla produzione di adenosina, mentre i suoi recettori ne trasmettono gli effetti. Macrofagi e Treg possono assumere funzioni che, in questo contesto, favoriscono la tolleranza verso il tumore. VEGF collega, infine, l’adattamento metabolico alla formazione di nuovi vasi.

Questa tappa ci ha aiutati a comprendere come uno stesso meccanismo possa avere effetti diversi a seconda del contesto: frenare la risposta immunitaria può proteggere dai danni dell’autoimmunità, ma può anche indebolire le difese contro un tumore. Studiare il metabolismo ci permette quindi di comprendere meglio questi equilibri e apre nuove prospettive di ricerca. Seguendo il filo che unisce metabolismo, lipidi e infiammazione, abbiamo poi spostato l’attenzione dai vasi sanguigni che alimentano il tumore alla parete delle arterie, per capire come questi fattori contribuiscano allo sviluppo dell’aterosclerosi.

Aterosclerosi e protezione della parete vascolare

Nell’aterosclerosi abbiamo incontrato un processo che può svilupparsi lentamente, prima che un evento cardiovascolare lo renda evidente. La parete arteriosa partecipa attivamente alla regolazione del flusso, alla comunicazione immunitaria e alla gestione dei lipidi. L’endotelio, il rivestimento interno dei vasi, costituisce un punto di osservazione privilegiato per capire come la qualità dei segnali metabolici possa influenzare la salute vascolare.

In condizioni fisiologiche, la via IRS/PI3K/AKT contribuisce ad attivare eNOS e alla produzione di ossido nitrico. Questa molecola favorisce la vasodilatazione e sostiene funzioni protettive dell’endotelio. Quando il segnale insulinico perde efficacia, tale contributo può ridursi. Il capitolo ci ha così ricordato che l’insulina conserva azioni importanti per la fisiologia dei vasi e che la sua concentrazione va interpretata insieme alla risposta dei tessuti.

La riduzione della protezione endoteliale si intreccia con infiammazione e adesione delle cellule immunitarie. Segnali come NF-κB e VCAM-1 partecipano al reclutamento dei leucociti, mentre le lipoproteine presenti nella parete possono subire modificazioni ossidative. Le LDL ossidate vengono riconosciute da recettori come CD36, che ne favoriscono l’ingresso nei macrofagi. L’accumulo di lipidi contribuisce alla formazione delle cellule schiumose, componenti caratteristiche delle lesioni aterosclerotiche.

CD36 ci ha mostrato come captazione e segnalazione possano procedere insieme. Nei macrofagi contribuisce a risposte infiammatorie e accumulo lipidico; sulle piastrine può partecipare all’aumento della reattività agli stimoli. PI3K/AKT/mTOR e autofagia aggiungono collegamenti con la capacità delle cellule di gestire i lipidi. Questi processi appartengono a una rete nella quale metabolismo insulinico, stress ossidativo e ambiente vascolare possono influenzarsi reciprocamente.

La ricostruzione ha reso più concreta l’idea di prevenzione nel tempo. La salute dei vasi dipende dall’insieme dei fattori di rischio e dalle cure appropriate, mentre la dimensione metabolica aiuta a comprendere alcune connessioni meno visibili. Dopo aver seguito tali relazioni nelle patologie, era necessario tornare alla vita quotidiana. L’alimentazione, introdotta all’inizio come punto di partenza, è riapparsa con un significato più ampio: una delle esposizioni ripetute attraverso cui possiamo contribuire a modificare il contesto biologico dell’organismo.

La qualità alimentare nella prevenzione quotidiana

Tornare all’alimentazione dopo aver attraversato le diverse patologie ci ha permesso di comprenderne meglio il ruolo come fattore di rischio. Ogni pasto determina risposte glicemiche e insuliniche che, ripetute nel tempo, possono contribuire a modificare l’equilibrio metabolico. L’attenzione si è concentrata soprattutto sulla quantità e sulla qualità dei carboidrati: alimenti rapidamente digeribili e porzioni con un elevato carico glicemico possono produrre aumenti più marcati del glucosio e una maggiore richiesta di insulina.

Le ricerche esaminate hanno associato un elevato indice glicemico, un alto carico glicemico e un maggiore potenziale insulinemico della dieta a un aumento del rischio di diabete di tipo 2 e, in diverse popolazioni, della mortalità generale, cardiovascolare e oncologica. Questi risultati suggeriscono che la qualità alimentare meriti attenzione anche oltre il controllo del peso. Nel prediabete, in particolare, un carico glicemico elevato è stato associato a una maggiore probabilità di progressione verso la malattia.

Il coinvolgimento cardiovascolare ci ha mostrato come le conseguenze possano estendersi ai vasi sanguigni. Escursioni glicemiche ripetute possono favorire stress ossidativo, infiammazione e disfunzione endoteliale, processi che contribuiscono alla vulnerabilità della parete arteriosa. Le associazioni con cardiopatia coronarica, aterosclerosi e ictus si inseriscono in questo quadro. Anche gli studi su demenza e Alzheimer hanno richiamato l’attenzione all’esposizione glicemica alimentare, senza dimostrare che essa determini direttamente la neurodegenerazione.

In ambito oncologico, l’iperinsulinemia e i segnali dell’asse PI3K/AKT/mTOR offrono possibili collegamenti tra alimentazione, crescita e sopravvivenza cellulare. Nell’autoimmunità, invece, le alterazioni della sensibilità insulinica suggeriscono un’interazione con l’infiammazione, ma non dimostrano che ridurre il carico glicemico prevenga queste malattie.

Gli studi di intervento hanno quindi indicato alcune possibilità concrete. Diete a minore indice e carico glicemico possono migliorare insulinemia, HOMA-IR e alcuni indicatori infiammatori; strategie low carb possono favorire il controllo glicemico e migliorare trigliceridi e steatosi epatica. Gli effetti dipendono però dalla qualità complessiva della dieta, dagli alimenti sostitutivi e dalla continuità dell’intervento.

Il messaggio conclusivo riguarda dunque la capacità di ridurre sollecitazioni metaboliche sfavorevoli attraverso porzioni appropriate, fonti alimentari di qualità e pasti adeguati alle esigenze individuali. Comprendere queste relazioni rende più consapevoli le scelte quotidiane. Il loro effetto si intreccia poi con l’utilizzo dei nutrienti: da qui il passaggio al movimento, che aumenta la richiesta energetica dei muscoli e contribuisce alla regolazione del glucosio.

Movimento e alternanza tra lavoro e recupero

Dopo aver osservato come l’alimentazione influenzi la disponibilità dei nutrienti, abbiamo approfondito quanto il movimento ne condizioni l’utilizzo. La sedentarietà prolungata riduce la richiesta energetica dei muscoli e può favorire alterazioni della sensibilità insulinica. Gli studi esaminati associano l’accumulo di ore trascorse seduti a un aumento della mortalità e del rischio cardiovascolare e metabolico, richiamando l’attenzione anche alla durata dei periodi consecutivi di immobilità.

Questo aspetto ci ha permesso di distinguere l’allenamento dal movimento distribuito nella giornata. Svolgere attività fisica è importante, ma trascorrere molte ore consecutive seduti può mantenere una componente di rischio anche nelle persone che si allenano. Interrompere l’immobilità e sostituirne una parte con attività leggere rappresenta quindi un’opportunità concreta. Le ricerche sui passi quotidiani mostrano benefici già nel passaggio dall’inattività a quantità relativamente modeste di movimento, particolarmente rilevanti per anziani e persone fragili.

Il collegamento con l’insulino-resistenza rende più chiaro il significato biologico di queste osservazioni. Anche brevi periodi di marcata riduzione dell’attività possono peggiorare la risposta dei tessuti all’insulina. Al contrario, esercizio aerobico, allenamento contro resistenza e programmi combinati possono migliorare la captazione del glucosio, la funzione mitocondriale e gli indicatori di sensibilità insulinica. Questi effetti possono comparire anche senza una significativa perdita di peso: il beneficio riguarda direttamente il funzionamento del muscolo.

Durante la contrazione aumenta il consumo di ATP, la principale risorsa energetica cellulare. AMPK contribuisce a riconoscere questa maggiore richiesta e favorisce i processi necessari a soddisfarla, sostenendo l’utilizzo degli acidi grassi e la captazione del glucosio attraverso GLUT4. Il movimento modifica così la capacità delle cellule di utilizzare i nutrienti disponibili.

Questa risposta si coordina con mTOR, coinvolto nella sintesi proteica, nella riparazione e nell’adattamento muscolare. Il rapporto tra le due vie varia secondo il tipo di esercizio, la sua intensità e la fase di recupero. Anche autofagia e ricambio dei mitocondri partecipano agli adattamenti, contribuendo al mantenimento dell’efficienza cellulare.

La conclusione è quindi concreta: ridurre il tempo sedentario, interrompere le lunghe permanenze seduti e praticare attività fisica adeguata alle proprie condizioni sono comportamenti complementari. La loro continuità sostiene la regolazione del glucosio e la funzionalità muscolare, offrendo benefici che vanno oltre il consumo calorico. Accanto a queste abitudini favorevoli, abbiamo poi esaminato un’esposizione capace di compromettere metabolismo e salute vascolare: il fumo, il cui impatto coinvolge anche i circuiti che rendono difficile interromperne il consumo.

Fumo e circuiti che mantengono la dipendenza

Dopo aver osservato come il movimento sostenga la salute metabolica, abbiamo esaminato un’esposizione capace di comprometterla: il fumo. I suoi effetti raggiungono polmoni, vasi sanguigni e tessuti, coinvolgendo anche i circuiti cerebrali della dipendenza. Le ricerche analizzate mostrano che anche poche sigarette quotidiane aumentano il rischio cardiovascolare e la mortalità. Ridurre il consumo, quindi, non elimina il rischio associato all’esposizione.

Il danno si sviluppa attraverso processi che possono rafforzarsi reciprocamente. Stress ossidativo e infiammazione compromettono la funzione dell’endotelio, mentre l’aumento della reattività piastrinica favorisce la formazione di trombi. Parallelamente, le sostanze cancerogene del tabacco possono danneggiare il DNA. Smettere modifica progressivamente questa traiettoria, offrendo benefici cardiovascolari, respiratori e oncologici anche dopo anni di consumo.

Il coinvolgimento metabolico ci ha riportati al segnale insulinico. Nei fumatori sono state documentate una minore sensibilità all’insulina e alterazioni associate alla quantità e alla durata dell’esposizione. La nicotina può contribuire a questi effetti anche indipendentemente dalla combustione. Nei modelli sperimentali, la modulazione di mTOR e le alterazioni di IRS-1 aiutano a spiegare come possa ridursi l’efficacia della risposta insulinica, aumentando la necessità di compensazione dell’organismo.

Gli stessi segnali assumono un ulteriore significato nei processi tumorali. Nicotina e NNK, una nitrosammina cancerogena del tabacco, possono coinvolgere i recettori nicotinici e attivare PI3K/AKT/mTOR. Nei modelli studiati, questa via sostiene proliferazione, angiogenesi e resistenza alla morte cellulare. L’NNK può inoltre provocare alterazioni del DNA: danno genetico e segnali di sopravvivenza possono così convergere, favorendo la persistenza delle cellule alterate.

Anche le sigarette elettroniche richiedono attenzione. L’assenza di combustione riduce l’esposizione ad alcuni tossici, ma non rende innocui gli aerosol, che possono contenere nicotina, aldeidi, particelle ultrafini e metalli. I diversi prodotti presentano profili differenti e l’uso combinato con sigarette tradizionali mantiene l’esposizione ai danni del fumo.

La difficoltà di interrompere il consumo trova infine una spiegazione nei circuiti della dipendenza. La nicotina aumenta il rilascio di dopamina nei sistemi della ricompensa; i processi di plasticità sinaptica, ai quali partecipa anche mTOR, contribuiscono a consolidare le associazioni tra sostanza, gratificazione e abitudini.

Comprendere questi meccanismi significa riconoscere sia il valore della cessazione sia la necessità di sostenere chi la affronta. La conoscenza dei rischi può motivare, mentre un percorso adeguato aiuta a mantenere il cambiamento. Da qui siamo passati al ruolo delle relazioni sociali, che possono offrire un sostegno concreto alla cura della salute e alla gestione delle difficoltà.

Relazioni sociali e risposte biologiche alla solitudine

Dopo aver esaminato il fumo e le difficoltà legate alla dipendenza, abbiamo approfondito un altro fattore che può influenzare la salute: la carenza di relazioni significative. Gli studi analizzati associano isolamento sociale e solitudine persistente a un aumento della mortalità e del rischio cardiovascolare. La qualità dei legami assume quindi un valore concreto, perché può condizionare sia i comportamenti quotidiani sia i sistemi biologici attraverso cui affrontiamo lo stress.

La prospettiva evolutiva ci ha aiutati a comprendere questa relazione. Cooperazione, condivisione delle risorse e apprendimento sociale hanno sostenuto la sopravvivenza umana. Anche oggi, poter contare sugli altri facilita la gestione delle difficoltà e la cura personale. Le osservazioni sull’isolamento durante infanzia e adolescenza suggeriscono inoltre che la vulnerabilità possa iniziare precocemente, associandosi a maggiore infiammazione e alterazioni cardiometaboliche negli anni successivi.

Una parte del rischio passa attraverso le abitudini. L’isolamento può accompagnarsi a un’alimentazione meno adeguata, carenze nutrizionali, maggiore consumo di tabacco, minore attività fisica e difficoltà nel seguire le terapie. Queste condizioni possono accumularsi e rafforzarsi reciprocamente. Il sostegno sociale, invece, può rendere più praticabili i cambiamenti e favorirne la continuità. Conta soprattutto la qualità delle relazioni: avere numerosi contatti non garantisce di sentirsi ascoltati, compresi o sostenuti.

Il collegamento si estende poi al metabolismo. Le ricerche esaminate associano solitudine e scarso supporto sociale a insulino-resistenza e alterazioni della regolazione glicemica. Una possibile spiegazione coinvolge l’asse ipotalamo-ipofisi-surrene: la solitudine persistente può accompagnarsi a modificazioni della risposta allo stress e dei ritmi del cortisolo, influenzando la disponibilità e l’utilizzo dell’energia.

A livello cellulare, infatti, i glucocorticoidi possono indurre REDD1, che attraverso TSC1/TSC2 contribuisce a contenere l’attività di mTORC1. Questa risposta limita temporaneamente processi dispendiosi, come la sintesi proteica, ma un’attivazione prolungata dei segnali dello stress può favorire catabolismo e disfunzione metabolica. Altre evidenze sperimentali mostrano che la compromissione di mTORC2 può interferire con AKT, AS160 e GLUT4, riducendo la captazione del glucosio; questi meccanismi aiutano a interpretare il legame tra stress e metabolismo.

La conclusione è che la salute richiede attenzione anche alle condizioni relazionali. Riconoscere la solitudine e favorire legami affidabili può sostenere la cura quotidiana e ridurre il peso delle difficoltà. Per comprendere meglio come queste esperienze raggiungano i tessuti, il percorso è quindi proseguito con lo stress e con i segnali ormonali che collegano l’esperienza personale alla regolazione metabolica.

Stress cronico e regolazione del metabolismo

Dopo aver approfondito il ruolo delle relazioni sociali, abbiamo seguito il principale collegamento tra esperienze quotidiane e regolazione metabolica: la risposta allo stress. Davanti a una minaccia, reale o percepita, l’organismo attiva sistemi che rendono disponibili le risorse necessarie per affrontarla. Il rischio emerge quando questa sollecitazione persiste e il recupero diventa insufficiente, favorendo alterazioni della regolazione ormonale e dell’utilizzo dell’energia.

Al centro di questa risposta troviamo l’asse ipotalamo-ipofisi-surrene e il cortisolo. Le ricerche esaminate descrivono modificazioni del suo ritmo giornaliero e della risposta al risveglio, insieme ad associazioni con ipertensione e alterazioni metaboliche. Lo stress cronico può quindi incidere sulla salute attraverso una disregolazione della risposta neuroendocrina, che non coincide necessariamente con un aumento costante del cortisolo in ogni persona.

Sul piano metabolico, il cortisolo aumenta la produzione epatica di glucosio e può ridurne l’utilizzo nei tessuti periferici. L’interferenza con IRS-1, PI3K/AKT e i meccanismi che mobilizzano GLUT4 può rendere meno efficace l’azione insulinica. Inizialmente il pancreas può compensare producendo più insulina e mantenendo una glicemia apparentemente normale. Questa compensazione aiuta a comprendere perché un’alterazione della sensibilità insulinica possa svilupparsi prima di un evidente aumento del glucosio, anche indipendentemente dall’obesità.

Il collegamento con la regolazione cellulare coinvolge anche REDD1, una proteina la cui espressione può essere indotta dai glucocorticoidi. Attraverso TSC1/TSC2, REDD1 contribuisce a ridurre l’attività di mTORC1 e la sintesi proteica. Una risposta temporanea può sostenere l’adattamento; se prolungata, può contribuire al catabolismo e alla perdita di massa muscolare. Le evidenze sulla compromissione di mTORC2 mostrano inoltre possibili conseguenze sull’attivazione di AKT, ma questo meccanismo va distinto dalla sola riduzione di mTORC1.

Il percorso raggiunge infine il sistema AKT–AS160–GLUT4. La fosforilazione di AS160 da parte di AKT favorisce il trasferimento delle vescicole contenenti GLUT4 alla membrana, aumentando l’ingresso del glucosio soprattutto nel muscolo e nel tessuto adiposo. Alterazioni della segnalazione o del traffico delle vescicole possono ostacolare questo processo e contribuire all’insulino-resistenza.

Abbiamo così compreso perché lo stress persistente rappresenti un fattore di rischio da considerare insieme ad alimentazione, movimento e altre condizioni personali. Riconoscere le fonti di sovraccarico e rendere possibile il recupero significa prestare attenzione anche alla salute metabolica. Per completare questa comprensione, siamo quindi risaliti all’origine della risposta: i circuiti cerebrali che trasformano la percezione di una minaccia nei segnali ormonali capaci di raggiungere l’intero organismo.

Dal segnale nervoso alla risposta ormonale

Dopo aver osservato gli effetti del cortisolo sul metabolismo, abbiamo risalito il percorso per comprendere come abbia origine la risposta allo stress. Prima che gli ormoni raggiungano i tessuti, il cervello deve riconoscere una minaccia, reale o percepita, e coordinare i segnali necessari ad affrontarla. Il rischio emerge quando questa attivazione si prolunga e i sistemi che dovrebbero contenerla non riescono a favorire un adeguato recupero.

Il glutammato, principale neurotrasmettitore eccitatorio, partecipa alla comunicazione tra i circuiti coinvolti. La sua attività si intreccia con mTOR, che contribuisce alla funzione e alla plasticità delle sinapsi. Gli astrociti mantengono l’equilibrio di questa comunicazione rimuovendo il glutammato dallo spazio extracellulare e partecipando al suo riciclo. Nei modelli sperimentali descritti, un’alterata regolazione di mTOR può compromettere queste funzioni, favorendo accumulo di glutammato, maggiore eccitabilità e segnali neuroinfiammatori.

Questo collegamento ci ha mostrato come le condizioni metaboliche delle cellule possano influenzare l’attività delle reti nervose. I segnali glutammatergici raggiungono anche i neuroni che producono orexina, situati nell’ipotalamo laterale. L’orexina sostiene la veglia e contribuisce ad attivare i sistemi dell’allerta, creando connessioni attraverso cui la risposta può essere mantenuta e amplificata.

Tra le strutture coinvolte troviamo il locus coeruleus, un nucleo cerebrale che produce noradrenalina. La convergenza di segnali orexinergici e glutammatergici ne favorisce l’attivazione, preparando l’organismo all’attenzione e all’azione. Questa risposta è funzionale quando accompagna una necessità temporanea; la sua persistenza può invece ostacolare il ritorno a condizioni compatibili con il riposo e il recupero.

Il passaggio alla risposta endocrina coinvolge il nucleo paraventricolare dell’ipotalamo. I segnali noradrenergici contribuiscono a regolare i neuroni che producono CRH, l’ormone che stimola l’adenoipofisi a rilasciare ACTH. Quest’ultimo raggiunge la corteccia surrenalica e induce la produzione di cortisolo. Attraverso questa rete, l’attivazione cerebrale assume una dimensione sistemica, modificando disponibilità energetica, funzione cardiovascolare e attività immunitaria.

Ritmi circadiani e feedback negativo aiutano normalmente a regolare la risposta. Quando lo stress persiste, possono alterarsi la ritmicità ormonale, la sensibilità ai glucocorticoidi e il controllo dell’infiammazione. I circuiti descritti costituiscono quindi collegamenti importanti tra percezione della minaccia e conseguenze biologiche, all’interno di una regolazione più ampia e complessa.

La conclusione riguarda la capacità di recuperare dopo l’attivazione: proteggere la salute significa anche riconoscere le condizioni che mantengono l’organismo in allerta. Il funzionamento di queste reti dipende inoltre dalle risorse disponibili alle cellule. Da qui il percorso ci ha riportati alla nutrizione, approfondendo il ruolo di vitamine e minerali nel sostenere l’equilibrio metabolico.

Micronutrienti e adeguatezza della nutrizione

Dopo aver approfondito la risposta allo stress, abbiamo esaminato un’altra condizione capace di compromettere l’equilibrio dell’organismo: la carenza di micronutrienti. Vitamine, minerali e oligoelementi sono necessari per produrre energia, sostenere le difese immunitarie, riparare il DNA e mantenere la protezione antiossidante. Una loro disponibilità insufficiente può quindi indebolire più funzioni contemporaneamente, anche quando l’alimentazione fornisce calorie sufficienti o eccessive.

È il significato della cosiddetta fame nascosta: mangiare abbastanza non garantisce di assumere tutto ciò di cui le cellule hanno bisogno. Sovrappeso e obesità possono convivere con carenze nutrizionali, rendendo insufficiente una valutazione basata soltanto sul peso. Le ricerche esaminate associano una migliore qualità micronutrizionale della dieta a una minore mortalità generale e, in diverse popolazioni, cardiovascolare e oncologica. Queste osservazioni richiamano l’importanza della composizione degli alimenti, oltre al loro contenuto energetico.

Il collegamento con l’insulino-resistenza rende più concreto questo rischio. Magnesio, zinco, calcio, potassio e vitamina D partecipano, con ruoli differenti, alla secrezione insulinica, alla produzione di ATP, alla funzione mitocondriale e alla trasmissione dei segnali che permettono di utilizzare il glucosio. Un’insufficiente disponibilità può interferire con questi processi e accompagnarsi a stress ossidativo e infiammazione. Nei profili caratterizzati da carenze multiple sono stati osservati valori più elevati di HOMA-IR e un peggiore controllo glicemico.

La relazione può però procedere in entrambe le direzioni. Le carenze riscontrate nelle persone con diabete di tipo 2, comprese quelle di vitamina D, magnesio e vitamina B12, non rappresentano necessariamente la causa iniziale della disfunzione metabolica, ma possono accompagnarla o favorirla. Comprendere questa dinamica aiuta a valutare i bisogni individuali senza attribuire ogni alterazione a un singolo nutriente.

La vulnerabilità può inoltre iniziare prima della nascita. L’ambiente nutrizionale materno contribuisce allo sviluppo pancreatico e alla regolazione metabolica della prole. Gli studi sperimentali mostrano che carenze durante gravidanza e allattamento possono modificare programmi energetici ed epigenetici, lasciando effetti che emergono successivamente. Questi risultati sottolineano il valore dell’adeguatezza nutrizionale nelle prime fasi della vita.

La prevenzione richiede quindi attenzione alla qualità e alla varietà dell’alimentazione, insieme al riconoscimento delle insufficienze reali. L’integrazione può essere utile quando corregge una carenza o risponde a fabbisogni specifici; nelle persone già adeguatamente nutrite, aumentare indiscriminatamente vitamine e minerali non garantisce ulteriori benefici. Da questa distinzione siamo partiti per approfondire i singoli nutrienti, iniziando dalla vitamina D e dal suo contributo alla regolazione immunitaria e metabolica.

Vitamina D e regolazione delle funzioni cellulari

Dopo aver riconosciuto le conseguenze delle carenze di micronutrienti, abbiamo approfondito la vitamina D, incontrando funzioni che si estendono oltre il mantenimento della salute ossea. Attraverso il recettore VDR, presente in numerosi tessuti, la sua forma attiva contribuisce a regolare programmi cellulari coinvolti nell’immunità, nel metabolismo e nella risposta allo stress. Questa distribuzione aiuta a comprendere perché il suo ruolo sia stato studiato in organi e condizioni differenti.

Sul piano immunitario, la vitamina D partecipa al coordinamento tra difesa e tolleranza. Può influenzare le cellule che presentano gli antigeni, contenere alcune risposte pro-infiammatorie e favorire l’attività delle cellule T regolatrici. Contribuisce inoltre al mantenimento delle barriere intestinali e respiratorie, che rappresentano un’interfaccia fondamentale tra organismo e ambiente. Queste funzioni offrono una base biologica per interpretare le associazioni tra carenza vitaminica, infiammazione e autoimmunità.

Il collegamento con il metabolismo riguarda soprattutto la funzione pancreatica e la risposta all’insulina. Le ricerche esaminate suggeriscono che la vitamina D possa intervenire sulle cellule β, sull’ambiente infiammatorio e sulla sensibilità dei tessuti periferici. Alcuni studi di integrazione hanno documentato miglioramenti dei parametri glicemici e insulinici, soprattutto in persone con livelli iniziali insufficienti. L’entità dei benefici rimane però variabile e dipende dalle caratteristiche dei partecipanti e dell’intervento.

Per comprendere questi effetti siamo entrati nei meccanismi intracellulari. Nei modelli sperimentali, l’attivazione del VDR può aumentare l’espressione di REDD1, che attraverso TSC1/TSC2 contribuisce a contenere mTORC1. Questa regolazione può limitare segnali proliferativi e favorire l’autofagia, il processo con cui le cellule degradano e riciclano parte dei propri componenti. Il significato dell’effetto dipende dal tessuto e dalle condizioni studiate.

Accanto a questa via abbiamo incontrato AMPK, coinvolto nell’adattamento energetico. Le ricerche sulla steatosi epatica, sull’intestino e sull’osteoartrite suggeriscono collegamenti con l’utilizzo del glucosio, l’ossidazione dei grassi e la gestione dello stress cellulare. Altri studi hanno esplorato possibili effetti nella nefropatia diabetica e nelle condizioni neurologiche, mentre molte applicazioni restano da confermare clinicamente.

Anche in oncologia è necessario distinguere i risultati: alcune metanalisi sull’integrazione hanno rilevato una riduzione della mortalità per tumore, senza dimostrare una diminuzione significativa dei nuovi casi. Le osservazioni molecolari e cliniche rispondono quindi a domande diverse.

Il valore della vitamina D emerge dalla sua partecipazione a funzioni essenziali e dalla possibilità di correggerne un’insufficienza quando presente. Sostenerne l’adeguatezza significa contribuire al normale funzionamento dell’organismo, all’interno di una cura complessiva della salute. Da questa regolazione dei programmi cellulari siamo passati alla vitamina C, approfondendone il contributo alla protezione ossidativa, all’integrità dei tessuti e al controllo delle risposte all’ossigenazione.

Vitamina C tra integrità dei tessuti e risposta cellulare

Dopo aver approfondito la vitamina D, abbiamo incontrato nella vitamina C un altro elemento essenziale per il mantenimento della salute. L’essere umano non può sintetizzarla e deve assumerla attraverso l’alimentazione. La sua disponibilità sostiene la protezione antiossidante, la formazione dei tessuti, l’assorbimento del ferro e diverse funzioni immunitarie. Contribuisce inoltre alla sintesi di molecole coinvolte nella comunicazione nervosa e all’attività di enzimi che partecipano alla regolazione dell’espressione genica.

Una delle sue funzioni fondamentali riguarda il collagene, proteina strutturale presente nella pelle, nei tendini, nei legamenti, nelle ossa e nelle pareti vascolari. La vitamina C agisce come cofattore degli enzimi necessari alla sua corretta formazione, favorendo modificazioni che ne stabilizzano la struttura. Questo contributo permette di comprendere il suo ruolo nell’integrità dei tessuti e nei processi riparativi, così come le conseguenze di una carenza prolungata.

La protezione strutturale si collega direttamente alle difese immunitarie. Pelle e mucose costituiscono le prime barriere contro gli agenti esterni, mentre la vitamina C sostiene anche l’attività delle cellule che intervengono quando queste barriere vengono superate. Favorisce la migrazione dei neutrofili e la fagocitosi, cioè la capacità di inglobare ed eliminare microrganismi, e partecipa ai processi che accompagnano la risoluzione dell’infiammazione. Le ricerche esaminate descrivono inoltre un coinvolgimento nelle funzioni delle cellule Natural Killer e nella maturazione dei linfociti T.

Durante le infezioni il consumo di vitamina C può aumentare, ma le sue funzioni fisiologiche vanno distinte dai risultati dell’integrazione. Gli studi sul raffreddore mostrano benefici circoscritti, soprattutto sulla durata dei sintomi in determinate condizioni, senza dimostrare una prevenzione generale dell’infezione.

Un ulteriore collegamento riguarda HIF-1α, una proteina che coordina parte della risposta cellulare alla scarsità di ossigeno. La vitamina C sostiene l’attività delle idrossilasi che, quando l’ossigeno e gli altri cofattori sono disponibili, contribuiscono a limitarne la stabilità e l’attività. Questa regolazione interessa programmi legati all’utilizzo del glucosio, alla produzione di lattato e alla formazione di nuovi vasi sanguigni.

Nei modelli oncologici, il rapporto con HIF-1α ha aperto prospettive di ricerca sul metabolismo e sul microambiente tumorale. Anche le alte concentrazioni ottenibili per via endovenosa sono state studiate per effetti sull’equilibrio ossidativo delle cellule neoplastiche. Questi risultati appartengono però a condizioni differenti dall’assunzione alimentare e non dimostrano un’efficacia antitumorale dell’integrazione ordinaria.

La vitamina C emerge quindi come un nutriente necessario a sostenere funzioni complementari: proteggere, costruire, riparare e regolare. Garantirne un apporto adeguato contribuisce al normale funzionamento dell’organismo. Dall’integrità dei tessuti siamo poi passati alla composizione delle membrane cellulari, approfondendo con gli Omega-3 il rapporto tra struttura, comunicazione e controllo dell’infiammazione.

Omega 3 e composizione delle membrane cellulari

Dopo aver approfondito il contributo della vitamina C all’integrità dei tessuti, abbiamo rivolto l’attenzione alle membrane cellulari. Qui EPA e DHA, due importanti acidi grassi Omega-3, partecipano alla struttura attraverso cui le cellule ricevono e trasmettono segnali. La loro incorporazione modifica la composizione lipidica delle membrane e può influenzare il funzionamento dei sistemi coinvolti nella comunicazione, nell’immunità e nel metabolismo.

Gli studi esaminati hanno documentato questo processo nel cuore, nei globuli rossi, nelle piastrine e nelle cellule immunitarie. L’incorporazione avviene progressivamente e, in diversi compartimenti, si accompagna a una riduzione della quota di acido arachidonico. Cambia così la disponibilità dei precursori utilizzati per produrre mediatori lipidici, contribuendo a modulare la risposta infiammatoria. Questo rapporto va interpretato considerando le funzioni fisiologiche di entrambe le famiglie di acidi grassi, senza attribuire agli Omega-6 un ruolo esclusivamente sfavorevole.

Da queste modificazioni derivano collegamenti con diversi ambiti della salute. Le ricerche hanno riportato effetti favorevoli su alcuni parametri cardiovascolari, infiammatori e metabolici, mentre gli studi sulle malattie autoimmuni hanno approfondito la regolazione delle risposte immunitarie. Nel sistema nervoso, l’interesse riguarda soprattutto la neuroinfiammazione e il mantenimento della funzione neuronale. Le applicazioni esplorate nell’Alzheimer, nel Parkinson e in oncologia presentano però livelli di evidenza differenti e non dimostrano un’efficacia terapeutica generalizzabile.

Un passaggio centrale riguarda la sensibilità insulinica. EPA e DHA possono contribuire a modulare l’infiammazione del tessuto adiposo, creando condizioni potenzialmente più favorevoli alla risposta all’insulina. Alcuni studi condotti nel diabete gestazionale, nella sindrome dell’ovaio policistico e nell’obesità pediatrica hanno osservato miglioramenti di indicatori metabolici. I risultati rimangono eterogenei e dipendono dalle caratteristiche delle persone e degli interventi.

Per comprendere questi effetti abbiamo seguito anche la segnalazione intracellulare. In specifici modelli sperimentali, l’acido arachidonico può coinvolgere PI3K/AKT/mTOR; modificarne la disponibilità nelle membrane potrebbe quindi influenzare parte di questi segnali. Altre ricerche mostrano che EPA e DHA possono contenere l’attività di mTOR e favorire, in determinate condizioni, l’autofagia, contribuendo al ricambio dei componenti cellulari.

AMPK completa questo collegamento con la regolazione energetica. La sua attivazione, osservata in diversi modelli, può partecipare agli effetti degli Omega-3 sul metabolismo, sull’infiammazione e sul controllo di mTOR. Questi meccanismi aiutano a interpretare le osservazioni, mantenendo distinta la plausibilità biologica dai benefici clinici dimostrati.

Il significato nutrizionale degli Omega-3 risiede dunque nel loro contributo alla struttura e alla regolazione cellulare. Un apporto adeguato trova spazio nella qualità complessiva dell’alimentazione, mentre l’integrazione richiede una valutazione delle necessità individuali. Dalla composizione delle membrane siamo poi passati al tempo delle risposte biologiche: con la melatonina abbiamo approfondito come ritmi quotidiani, riposo e manutenzione cellulare partecipino allo stesso equilibrio.

Melatonina e coordinamento dei ritmi biologici

Dopo aver approfondito il ruolo degli Omega-3 nelle membrane cellulari, abbiamo osservato come il funzionamento dell’organismo dipenda anche dalla regolarità dei suoi ritmi. La melatonina, prodotta dalla ghiandola pineale e anche in diversi tessuti periferici, partecipa alla segnalazione circadiana e al coordinamento tra attività e riposo. Le ricerche esaminate ne descrivono inoltre azioni antiossidanti, antinfiammatorie e immunomodulanti, con possibili effetti sulla funzionalità dei mitocondri.

Il collegamento più conosciuto riguarda il sonno. La melatonina contribuisce a sincronizzare i processi che accompagnano il passaggio dalla veglia al riposo. Gli studi clinici hanno documentato, in specifiche condizioni, una riduzione del tempo necessario per addormentarsi e miglioramenti di alcuni parametri del sonno. L’entità degli effetti varia però secondo il disturbo, le caratteristiche individuali e le modalità di somministrazione.

Per comprenderne l’azione abbiamo seguito il recettore MT1, attraverso cui vengono trasmessi alcuni segnali alle cellule nervose. Nei modelli sperimentali descritti, questo recettore partecipa alla regolazione dei circuiti che organizzano le fasi del sonno. Nel locus coeruleus, la riduzione dell’attività dei neuroni noradrenergici accompagna il passaggio a condizioni di minore vigilanza ed è particolarmente marcata durante il sonno REM.

Questi circuiti dialogano con i neuroni orexinergici dell’ipotalamo laterale, che sostengono la veglia e stimolano i sistemi dell’allerta. Le ricerche sperimentali suggeriscono che la melatonina possa modulare anche la loro attività attraverso MT1, contribuendo alla transizione verso il riposo. Abbiamo così ritrovato strutture già incontrate nello stress, comprendendo quanto attivazione e recupero dipendano da una regolazione coordinata.

La presenza di recettori nel pancreas, intestino, vasi e cellule immunitarie estende questa comunicazione oltre il cervello. La melatonina può influenzare la secrezione insulinica, il metabolismo glucidico, il tono vascolare e le risposte infiammatorie. Questi collegamenti mostrano come il segnale circadiano partecipi all’organizzazione delle funzioni dell’intero organismo.

Un ulteriore aspetto riguarda la manutenzione cellulare. Nei modelli studiati, la melatonina modula l’autofagia, attraverso cui vengono degradati e riciclati componenti cellulari, e la mitofagia, dedicata alla rimozione dei mitocondri compromessi. AMPK e mTORC1 partecipano a questa regolazione, collegando disponibilità energetica, sintesi e ricambio. Gli effetti dipendono dal tessuto e dalle condizioni: mantenere efficiente questi processi richiede una modulazione appropriata.

La melatonina ci ha quindi aiutati a comprendere il rapporto tra ritmi biologici, riposo ed equilibrio cellulare. Le sue funzioni fisiologiche offrono una prospettiva ampia, mentre le applicazioni terapeutiche richiedono evidenze specifiche. Da questa organizzazione temporale siamo passati al magnesio, necessario a numerose reazioni che sostengono la produzione di energia e la trasmissione dei segnali.

Magnesio e funzionamento delle reazioni metaboliche

Dopo aver approfondito il rapporto tra melatonina, riposo e manutenzione cellulare, abbiamo incontrato nel magnesio un elemento necessario al funzionamento di numerosi processi biologici. Questo minerale partecipa a centinaia di reazioni enzimatiche coinvolte nella produzione e nell’utilizzo dell’energia, nella trasmissione nervosa e nell’attività muscolare. Contribuisce inoltre al metabolismo della vitamina D, mostrando come l’efficacia dei nutrienti dipenda anche dalla disponibilità dei cofattori necessari al loro utilizzo.

Il suo ruolo si estende alla regolazione cardiovascolare. Gli studi clinici esaminati hanno documentato riduzioni moderate della pressione arteriosa con l’integrazione, soprattutto in persone ipertese o con una disponibilità insufficiente del minerale. Le ricerche epidemiologiche associano inoltre un maggiore apporto alimentare di magnesio a un rischio inferiore di ictus, diabete di tipo 2 e altri esiti cardiometabolici. Queste osservazioni vanno interpretate nel contesto dell’alimentazione complessiva, perché gli alimenti che forniscono magnesio apportano anche altre sostanze utili.

La partecipazione alla funzione nervosa e muscolare ha suggerito ulteriori ambiti di ricerca. Alcuni studi riportano benefici sul recupero dopo l’esercizio, su determinati parametri del sonno e sui sintomi ansiosi o depressivi. Un collegamento particolarmente importante riguarda la sensibilità insulinica. Il magnesio contribuisce alle reazioni che sostengono l’attività del recettore insulinico e la trasmissione dei segnali necessari all’utilizzo del glucosio. Una sua disponibilità insufficiente può interferire con questi processi e accompagnarsi a infiammazione e stress ossidativo. Alcune metanalisi e sperimentazioni cliniche hanno osservato miglioramenti dell’HOMA-IR e di parametri glicemici, soprattutto in persone con alterazioni metaboliche o carenza del minerale.

Il rapporto può diventare reciproco: la disfunzione metabolica può favorire la perdita di magnesio, mentre l’insufficienza può rendere meno efficiente la risposta insulinica. Correggere una carenza assume quindi un significato concreto nel sostegno delle normali funzioni cellulari.

Nei modelli sperimentali abbiamo seguito anche le connessioni con AMPK, mTOR e autofagia. In determinate condizioni, il magnesio può influenzare questi sistemi, contribuendo alla regolazione energetica e al riciclo dei componenti cellulari; gli effetti descritti nel tessuto osseo, nel fegato e in modelli tumorali dipendono dal contesto.

Il messaggio conclusivo riguarda dunque l’adeguatezza: garantire magnesio significa sostenere reazioni indispensabili alla salute, mentre l’integrazione deve rispondere a bisogni individuali. Da questa base nutrizionale siamo passati alle spezie, approfondendo come i loro composti bioattivi possano interagire con alcuni degli stessi segnali metabolici.

Le spezie e i loro collegamenti metabolici

Gli ultimi sei capitoli hanno riportato la nostra attenzione a ingredienti familiari, mostrando la complessità biologica che può nascondersi dietro un aroma. Cannella, curcuma, chiodi di garofano, origano, pepe nero e zenzero contengono composti capaci di interagire con segnali infiammatori e metabolici. Considerarli insieme permette di riconoscere il filo che li accomuna e, contemporaneamente, le differenze tra le prove disponibili per ciascuno.

La cannella ci ha introdotti alla cinnamaldeide, all’acido cinnamico e ai polifenoli. Gli studi clinici hanno riportato risultati su alcuni parametri glicemici e lipidici, con una variabilità legata anche alle formulazioni. Nei modelli sperimentali, il rapporto con GLUT4 e AMPK offre possibili spiegazioni degli effetti metabolici. Le osservazioni su PI3K/AKT/mTOR, HIF-1α e autofagia appartengono invece a contesti specifici, tra cui quelli tumorali, e richiedono una lettura distinta dall’uso della spezia nel pasto.

La curcuma ha ampliato questo tema attraverso la curcumina e gli altri curcuminoidi. La modulazione di NF-κB, stress ossidativo e citochine ha costituito un collegamento con l’infiammazione. I risultati clinici su dolore articolare e indicatori metabolici hanno mostrato interesse, ma anche differenze tra preparazioni. La biodisponibilità è diventata parte essenziale dell’interpretazione: la quantità assunta non coincide necessariamente con quella che raggiunge i tessuti o produce gli effetti osservati in laboratorio.

Nei modelli tumorali, la curcumina può influenzare proliferazione, apoptosi, autofagia e ferroptosi. In altri tessuti, AMPK e mTOR partecipano a risposte di protezione e adattamento. Questa diversità conferma che una molecola non possiede un unico effetto indipendente dal contesto. L’obiettivo della ricerca è capire dove, come e a quali condizioni una proprietà possa tradursi in un risultato utile.

Con i chiodi di garofano abbiamo incontrato soprattutto l’eugenolo. Le proprietà antiossidanti, antinfiammatorie e antimicrobiche descritte sperimentalmente hanno aperto prospettive su tessuti differenti. Le prime osservazioni cliniche su estratti e parametri glicemici rappresentano un livello di evidenza interessante ma ancora limitato rispetto all’ampiezza dei meccanismi esplorati. Il coinvolgimento di AMPK, GLUT4 e autofagia rende comprensibile l’interesse metabolico, senza consentire di attribuire all’uso culinario gli effetti di ogni preparazione studiata.

L’origano ha aggiunto carvacrolo e timolo a questa rete. Nei modelli esaminati, la modulazione dello stress ossidativo e dell’infiammazione si accompagna a effetti sulla segnalazione insulinica e sul metabolismo epatico. IRS, AKT, AS160 e GLUT4 ricompaiono nel percorso che facilita l’utilizzo del glucosio. In altri contesti, la riduzione di segnali proliferativi coinvolge PI3K/AKT/mTOR. La presenza di bersagli comuni aiuta a formulare ipotesi, ma non rende un composto equivalente a un farmaco che agisce su parte della stessa rete.

Il pepe nero ci ha condotti alla piperina e a un aspetto ulteriore: la capacità di modificare la biodisponibilità di altre sostanze. Le associazioni con la curcumina sono state studiate in diverse condizioni, rendendo necessario distinguere gli effetti della combinazione da quelli dei singoli componenti. Nei modelli preclinici, piperina, AMPK e GLUT4 si collegano alla captazione del glucosio, mentre autofagia e segnali di crescita compaiono negli studi neurologici e oncologici. La modifica dell’assorbimento e del metabolismo spiega anche la possibilità di interazioni con farmaci e integratori.

Infine, lo zenzero ha riunito molte di queste connessioni attraverso gingeroli e shogaoli. I risultati clinici su glicemia, emoglobina glicata e altri indicatori metabolici sono incoraggianti, pur con esiti non sempre uniformi. Nei modelli muscolari, il 6-gingerolo può coinvolgere AMPK, AS160 e GLUT4; il 6-shogaolo è stato studiato anche per la modulazione di segnali proliferativi e dell’autofagia. Le osservazioni sulla barriera intestinale hanno riportato il percorso alla comunicazione tra metabolismo, infiammazione e integrità dei tessuti.

Guardate insieme, le sei spezie mostrano un punto comune: l’alimentazione introduce sostanze che possono avere un’attività biologica oltre al loro contributo energetico. La forza delle conclusioni varia però secondo ciò che è stato studiato. Un esperimento cellulare, un estratto standardizzato e una quantità culinaria non rappresentano la stessa esposizione. Dosi, assorbimento e condizioni della persona determinano la distanza tra una proprietà molecolare e un possibile beneficio.

Il loro impiego alimentare può contribuire alla varietà e al piacere del pasto, mentre gli estratti richiedono una valutazione propria. Nessuna spezia riassume da sola il valore di un’alimentazione adeguata o sostituisce le cure. Il significato di questi capitoli è aver mostrato, attraverso esempi diversi, il ritorno degli stessi nodi biologici: insulina, AMPK, mTOR, infiammazione e ricambio cellulare. Da questa convergenza possiamo ora compiere l’ultimo passo e dare un nome alla prospettiva che ha collegato l’intera opera.

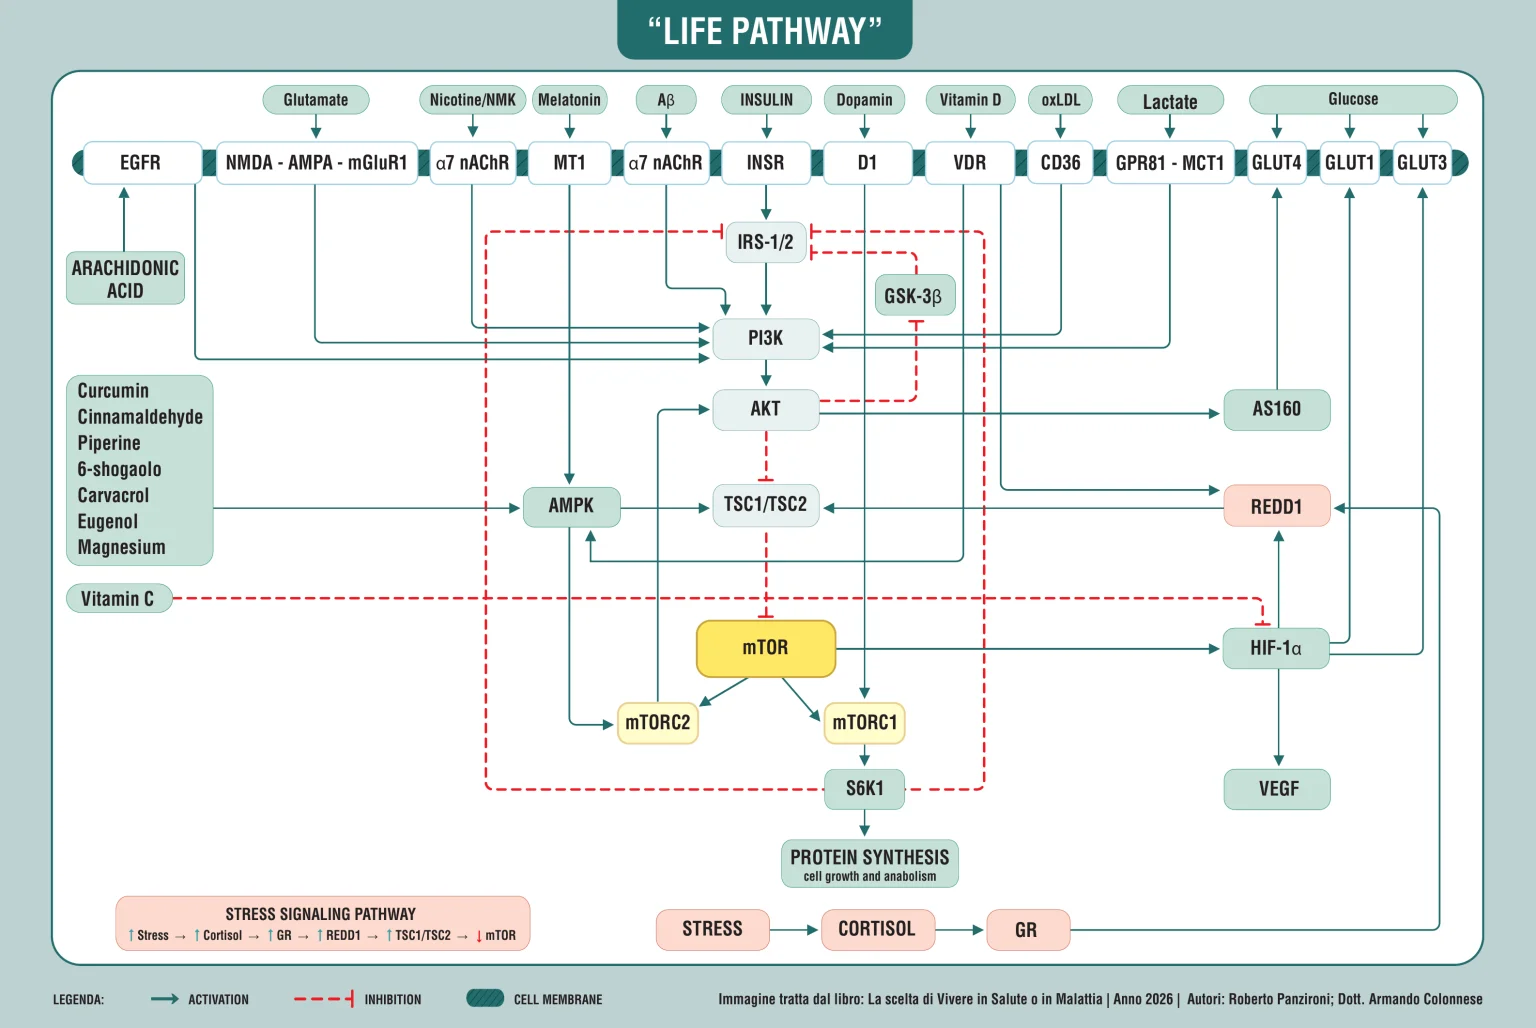
Life Pathway come proposta editoriale unitaria

Arrivati a questo punto, possiamo riconoscere con maggiore chiarezza il filo che unisce il libro. Abbiamo seguito il glucosio dal pasto ai tessuti, osservato l’insulina come messaggio e approfondito le proteine che lo traducono. Abbiamo poi incontrato quelle stesse reti nell’immunità, nelle patologie e nelle risposte ai comportamenti quotidiani. Il concetto del “Life Pathway” nasce dalla volontà di rendere leggibile questa continuità e costituisce la proposta editoriale con cui desideriamo concludere l’opera.

Con questo nome definiamo la rete funzionale integrata attraverso cui segnali metabolici, energetici e ambientali convergono nelle risposte cellulari. Al centro della nostra lettura troviamo il percorso che dal recettore insulinico attraversa IRS-1/2, PI3K e AKT, insieme ai regolatori e agli effettori che ne ampliano il significato. mTOR rappresenta uno dei principali nodi di questa integrazione; AMPK, HIF-1α, REDD1 e TSC1/TSC2 contribuiscono a collegare energia, ossigenazione, disponibilità di nutrienti e condizioni di stress.

La novità che proponiamo è editoriale e interpretativa: riunire queste connessioni in una prospettiva riconoscibile, capace di accompagnare il lettore attraverso temi spesso affrontati separatamente. Il “Life Pathway” non designa la scoperta di una nuova via molecolare distinta da quelle note. È il nome assegnato in quest’opera a una lettura integrata delle loro relazioni. Il suo valore si misura nella capacità di chiarire i collegamenti, preservando la complessità e i limiti delle conoscenze disponibili.

Questa precisazione consente di comprendere anche il ruolo dell’insulina. L’ormone segnala la disponibilità di risorse e contribuisce a utilizzarle, immagazzinarle e destinarle alla sintesi. La qualità della risposta dipende dalla secrezione, dalla clearance e dalla sensibilità dei tessuti. L’iperinsulinemia persistente può inserirsi in circuiti di disfunzione, ma la rete riceve molti altri segnali e non tutte le malattie discendono da un’unica alterazione insulinica. Il “Life Pathway” conserva questi rapporti senza appiattirli in una sequenza universale.

Il principio che emerge riguarda la capacità di modulazione. Una cellula deve poter crescere quando serve, utilizzare energia durante una richiesta, riparare strutture e riciclare componenti compromessi. mTOR e AMPK partecipano a questo coordinamento, con funzioni che cambiano secondo tessuto e momento. HIF-1α contribuisce all’adattamento metabolico; REDD1 e il sistema TSC introducono segnali di controllo. La salute dipende anche dalla possibilità di alternare programmi appropriati, mantenendo la risposta proporzionata alle condizioni.

È per questo che abbiamo incontrato effetti differenti della stessa via. Nel muscolo, i segnali di sintesi sostengono il recupero; in alcune cellule tumorali possono favorire una crescita patologica. Le Treg aiutano a contenere l’autoimmunità, ma nel microambiente tumorale possono ostacolare la risposta antitumorale. L’autofagia contribuisce al ricambio, mentre il suo ruolo varia secondo la condizione. La prospettiva unitaria acquista valore proprio quando ci aiuta a interpretare tali differenze, evitando etichette assolute per singole molecole.

Il “Life Pathway” collega questa complessità alla vita quotidiana. L’alimentazione modifica la disponibilità di nutrienti e le risposte ormonali; il movimento aumenta la richiesta energetica e sostiene adattamenti; stress, sonno e relazioni interagiscono con i sistemi neuroendocrini. Il fumo introduce esposizioni dannose e coinvolge i circuiti della dipendenza. Micronutrienti e lipidi partecipano al funzionamento e alla struttura delle cellule. Questi fattori si incontrano nell’organismo e contribuiscono, con pesi differenti, al contesto nel quale esso deve mantenersi efficiente.

La consapevolezza che desideriamo lasciare al lettore nasce da questa visione. Un’abitudine acquista significato quando comprendiamo quali funzioni può sostenere e perché la sua continuità conti. Cambiare può voler dire rendere più adeguata l’alimentazione, trovare occasioni di movimento, proteggere il riposo, affrontare il fumo con un sostegno appropriato. Ogni percorso deve considerare salute, possibilità e condizioni di vita della persona, così da trasformare la conoscenza in azioni realistiche.

La scelta richiamata dal titolo del libro trova qui il suo significato più responsabile. Possiamo partecipare alla cura della nostra salute, pur senza controllare ogni fattore che la determina. Ammalarsi non dimostra di aver scelto male, così come un comportamento favorevole non garantisce l’assenza di malattia. Conoscere i meccanismi permette però di riconoscere uno spazio di azione e di attribuire valore ai cambiamenti che possiamo sostenere, insieme alle cure e alle valutazioni necessarie.

Con il “Life Pathway” proponiamo dunque al lettore uno strumento per tenere insieme quanto ha appreso. Il percorso termina sul piano della narrazione, ma le domande che lo hanno guidato possono accompagnare le decisioni di ogni giorno: quali condizioni sto offrendo al mio organismo, quali bisogni sto trascurando, quale cambiamento posso rendere stabile? La finalità dell’opera è questa maggiore partecipazione consapevole. Comprendere ciò che accade dentro di noi può aiutarci a prendercene cura con più continuità, competenza e rispetto per la complessità biologica della vita.

Conclusioni

Siamo giunti al termine di questo libro. Prima di congedarci, desideriamo ripercorrere insieme il cammino che ci ha portati dalle abitudini alimentari ai segnali cellulari, dalle malattie croniche alle possibilità offerte dalla prevenzione. Queste conclusioni raccolgono il significato delle singole tappe e ne ricompongono i collegamenti, affinché quanto abbiamo incontrato possa diventare una conoscenza utilizzabile nella vita quotidiana.

La nostra intenzione, come autori, è stata accompagnare il lettore dentro i meccanismi biologici che contribuiscono alla salute. Conoscere il motivo per cui un comportamento conta può rendere più concreta la volontà di modificarlo. Un pasto, una camminata, il riposo e una relazione significativa acquistano un valore diverso quando comprendiamo che possono influenzare il modo in cui l’organismo utilizza l’energia, affronta lo stress e mantiene le proprie funzioni.

Il titolo La scelta di vivere in salute o in malattia esprime questa possibilità di partecipazione. La salute dipende anche da fattori genetici, ambientali e sociali che non scegliamo, e nessuno decide volontariamente di ammalarsi. Esistono però abitudini sulle quali possiamo intervenire, con possibilità diverse per ciascuno. La consapevolezza che desideriamo promuovere riguarda proprio questo spazio: riconoscere ciò che possiamo migliorare, senza trasformare la malattia in una colpa o la prevenzione in una promessa di invulnerabilità.

Seguendo le ricerche, abbiamo incontrato risultati clinici, associazioni epidemiologiche e meccanismi studiati in laboratorio. Ogni livello contribuisce alla comprensione, ma risponde a domande differenti. Conservare questa distinzione ci permette di riconoscere le opportunità senza attribuire alle ipotesi il valore di certezze. È anche il presupposto per affiancare uno stile di vita consapevole alle cure appropriate, rispettando la complessità della persona.

Riprenderemo dunque il percorso nell’ordine in cui si è sviluppato, lasciando emergere ciò che unisce argomenti apparentemente distanti. Al termine daremo un nome alla prospettiva che li attraversa: Life Pathway, la proposta editoriale con cui riuniamo la comunicazione tra metabolismo, ambiente e adattamento cellulare. Per comprenderne il significato, torniamo al punto da cui tutto è iniziato: il nostro rapporto con il cibo.

Riferimenti

Capitolo 1 · La storia dell'alimentazione (29)

[1] Stone agers in the fast lane: chronic degenerative diseases in evolutionary perspective

Eaton et al., 1988

Am J Med. 1988 Apr;84(4):739-49.

[2] Plant-animal subsistence ratios and macronutrient energy estimations in worldwide hunter-gatherer diets

Cordain et al., 2000

Am J Clin Nutr. 2000 Mar;71(3):682-92.

[3] Evolution of the human diet: linking our ancestral diet to modern functional foods as a means of chronic disease prevention

Jew et al., 2009

J Med Food. 2009 Oct;12(5):925-34.

[4] Paleolithic nutrition: twenty-five years later

Konner et al., 2010

Nutr Clin Pract. 2010 Dec;25(6):594-602.

[5] Por que comemos o que comemos?

Zucoloto, 2008

Editora Mauad. Rio de Janeiro. FS (2008)

[6] Australian aboriginal plant foods: a consideration of their nutritional composition and health implications

Brand-Miller et al., 1998

Nutr Res Rev. 1998 Jun;11(1):5-23.

[7] Origins and evolution of the Western diet: health implications for the 21st century

Cordain et al., 2005

Am J Clin Nutr. 2005 Feb;81(2):341-54.

[8] Evolution of the human feeding behavior

Zucoloto, 2011

Psychology & Neuroscience, 2011 4(1), 131–141.

[9] Starvation in humans: evolutionary background and contemporary implications

Prentice, 2005

Mech Ageing Dev. 2005 Sep;126(9):976-81.

[10] Animal source foods and human health during evolution

Larsen, 2003

J Nutr. 2003 Nov;133(11 Suppl 2):3893S-3897S.

[11] The paleo diet: lose weight and get healthy by eating the food you were designed to eat.

Cordain, 2002

New York: Wiley. 2002.

[12] Sedentary lifestyle a disease from xxi century

Rodulfo, 2019

Clin Investig Arterioscler. 2019 Sep-Oct;31(5):233-240.

[13] Amitriptyline at an Environmentally Relevant Concentration Alters the Profile of Metabolites Beyond Monoamines in Gilt-Head Bream

Ziarrusta et al., 2019

Environ Toxicol Chem. 2019 May;38(5):965-977. Epub 2019 Apr 2.

[14] Climate change and overfishing increase neurotoxicant in marine predators

Schartup et al., 2019

Nature. 2019 Aug;572(7771):648-650. Epub 2019 Aug 7.

[15] International table of glycemic index and glycemic load values: 2002

Foster-Powell et al., 2002

Am J Clin Nutr. 2002 Jul;76(1):5-56.

[16] Assessing the evolution of wheat grain traits during the last 166 years using archived samples

Ben Mariem et al., 2020

Sci Rep. 2020 Dec 11;10(1):21828.

[17] Domestication and the storage starch biosynthesis pathway: signatures of selection from a whole sorghum genome sequencing strategy

Campbell et al., 2016

Plant Biotechnol J. 2016 Dec;14(12):2240-2253.

[18] Kernel Carbohydrates Concentration in Sugary-1, Sugary Enhanced and Shrunken Sweet Corn Kernels

Szymanek et al., 2015

Agriculture and Agricultural Science Procedia Volume 7, 2015, Pages 260-264.

[19] Changes in USDA food composition data for 43 garden crops, 1950 to 1999

Davis et al., 2004

J Am Coll Nutr. 2004 Dec;23(6):669-82.

[20] Colorless tetrapyrrolic chlorophyll catabolites found in ripening fruit are effective antioxidants

Müller et al., 2007

Angew Chem Int Ed Engl. 2007;46(45):8699-702.

[21] Assessment of Morphological Traits and Fruit Metabolites in Eleven Fig Varieties (Ficus Carica L.)

Hssaini et al., 2020

International Journal of Fruit Science Volume 20, 2020 - Issue sup2.

[22] Gains and Losses of Agricultural Food Production: Implications for the Twenty-First Century

Komarnytsky et al., 2022

Annu Rev Food Sci Technol. 2022 Mar 25:13:239-261.

[23] Nitrates/Nitrites in Food-Risk for Nitrosative Stress and Benefits

Karwowska et al., 2020

Antioxidants (Basel). 2020 Mar 16;9(3):241.

[24] A Tonoplast Sugar Transporter Underlies a Sugar Accumulation QTL in Watermelon

Ren et al., 2018

Plant Physiol. 2018 Jan;176(1):836-850.

[25] Serge Renaud: from French paradox to Cretan miracle

Simini, 2000

Lancet. 2000 Jan 1;355(9197):48.

[26] Origin, components and mechanisms of action of the Mediterranean diet

Urquiaga et al., 2017

Rev Med Chil. 2017 Jan;145(1):85-95.

[27] Dietary carbohydrate restriction as the first approach in diabetes management: critical review and evidence base

Feinman et al., 2015

Nutrition. 2015 Jan;31(1):1-13.

[28] The loss of postprandial glycemic control precedes stepwise deterioration of fasting with worsening diabetes

Monnier et al., 2007

Diabetes Care. 2007 Feb;30(2):263-9.

[29] European guidelines on cardiovascular disease prevention in clinical practice: executive summary: Fourth Joint Task Force of the European Society of Cardiology and Other Societies on Cardiovascular Disease Prevention in Clinical Practice (Constituted by representatives of nine societies and by invited experts)

Graham et al., 2007

Eur Heart J. 2007 Oct;28(19):2375-414.