
Scientific Book

Oméga-3 et composition des membranes cellulaires

Les acides gras oméga-3, en particulier l'EPA et le DHA, jouent un rôle essentiel dans la structure des membranes cellulaires et dans la régulation des processus inflammatoires. La recherche étudie leurs effets sur le métabolisme lipidique, la santé cardiovasculaire, l'immunité et la fonction cérébrale, avec des bénéfices qui dépendent du contexte clinique. Dans le livre « La scelta di Vivere in Salute o in Malattia », le Dr A. Colonnese et R. Panzironi approfondissent les mécanismes biologiques des oméga-3 et les preuves relatives à leur supplémentation.

Citer cet article
Colonnese, A. & Panzironi, R. (2026). Oméga-3 et composition des membranes cellulaires. Le choix de vivre en santé ou en maladie. https://lifesciencehub.info/fr/la-scelta-di-vivere-in-salute-o-in-malattia/omega-3-et-composition-des-membranes-cellulaires
Le choix de vivre en santé ou en maladie · ISBN 979-12-82692-04-5

DOI lsh.fr.libro.27

  • Publication 05/11/2026
  • Mise à jour 05/11/2026
  • OMÉGA-3
  • EPA
  • DHA
  • ACIDE ARACHIDONIQUE
  • PI3K/AKT/MTOR
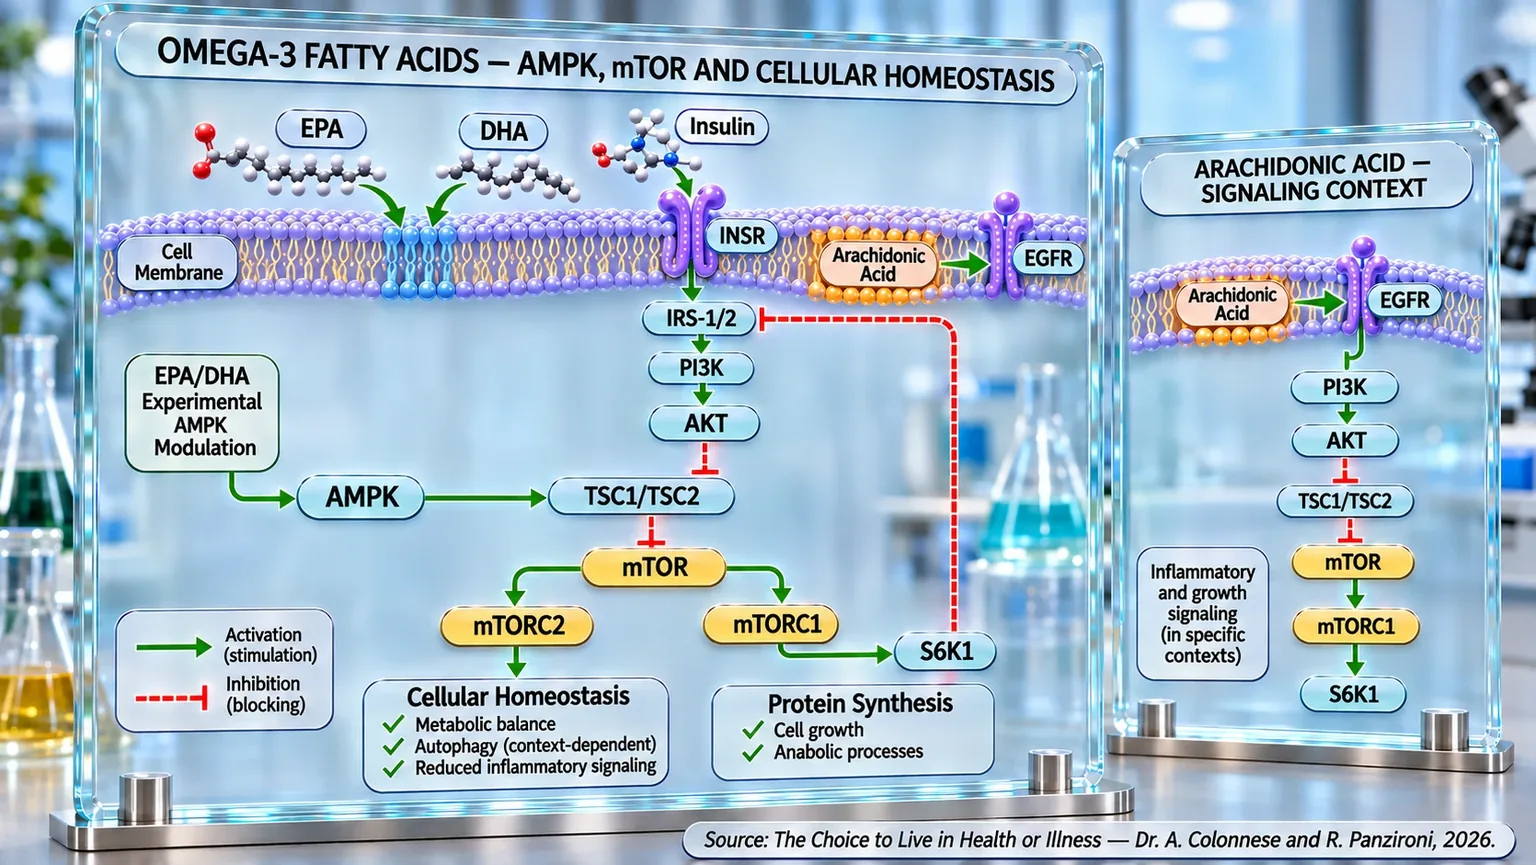
Infographie moléculaire avec double couche phospholipidique, récepteurs INSR et EGFR et flèches vertes ou rouges vers des complexes métaboliques intracellulaires.
Schéma des interactions entre la membrane cellulaire, l'EPA, le DHA, l'insuline et l'acide arachidonique : les voies INSR–IRS-1/2–PI3K–AKT et EGFR–PI3K–AKT convergent vers TSC1/TSC2–mTOR, mTORC1, mTORC2 et S6K1. La modulation expérimentale de l'AMPK par l'EPA/DHA est liée à l'homéostasie cellulaire, à la synthèse protéique et aux signaux inflammatoires.

ABSTRACT

Les acides gras oméga-3, principalement l'EPA et le DHA, contribuent à la structure des membranes cellulaires et à la régulation des réponses inflammatoires, immunitaires et métaboliques. Dans le livre « La scelta di Vivere in Salute o in Malattia », le Dr A. Colonnese et R. Panzironi examinent le rapport entre la disponibilité des oméga-3 et des oméga-6, la composition lipidique des tissus et les mécanismes de signalisation cellulaire, en distinguant les adaptations biologiques des bénéfices cliniques restant à confirmer.

L'apport en EPA et DHA favorise leur incorporation progressive dans les membranes des cardiomyocytes, des érythrocytes, des plaquettes et des cellules immunitaires, modifiant leur composition et réduisant, dans certains compartiments, la part d'acide arachidonique. Cette variation peut influencer la production de médiateurs inflammatoires. Dans des modèles expérimentaux spécifiques, l'acide arachidonique intervient dans l'activation de PI3K/AKT/mTOR, tandis que l'EPA et le DHA peuvent moduler cette signalisation, limiter l'activité de mTOR et favoriser l'autophagie. L'activation de l'AMPK constitue un lien supplémentaire possible avec le métabolisme énergétique et le contrôle de l'inflammation.

Les études font état d'améliorations de certains indicateurs cardiovasculaires, inflammatoires et métaboliques. Des résultats favorables concernant la sensibilité à l'insuline ont été observés dans le diabète gestationnel, le syndrome des ovaires polykystiques et l'obésité pédiatrique, bien que les preuves soient hétérogènes. L'intérêt pour la maladie d'Alzheimer et la maladie de Parkinson concerne surtout la neuro-inflammation et la protection neuronale ; dans les maladies auto-immunes et dermatologiques, d'autres implications sont explorées. En oncologie, les effets sur la prolifération découlent principalement d'observations expérimentales et ne démontrent pas d'efficacité thérapeutique chez l'homme.

Dans l'ensemble, les oméga-3 participent à des processus cellulaires interconnectés par le biais de modifications des membranes et de la régulation de voies métaboliques. Un apport alimentaire adéquat en EPA et DHA peut s'inscrire dans un mode de vie équilibré, tandis qu'une éventuelle supplémentation nécessite une évaluation individuelle. Il reste essentiel de distinguer les mécanismes observés dans les modèles expérimentaux des résultats cliniques, en évitant d'assimiler la modulation de l'AMPK et de mTOR à la prévention ou au traitement démontré des pathologies dans les différentes populations et conditions métaboliques étudiées jusqu'à présent.

Ses propriétés

Les acides gras oméga-3 appartiennent à la famille des acides gras polyinsaturés essentiels, des nutriments que l’organisme humain n’est pas capable de synthétiser par lui-même et qui doivent donc être apportés par l’alimentation. Parmi eux, l’acide eicosapentaénoïque (EPA) et l’acide docosahexaénoïque (DHA) représentent les formes biologiquement les plus actives et les plus étudiées. Bien que les oméga-3 aient été associés pendant de nombreuses années presque exclusivement à la santé cardiovasculaire, la recherche moderne a progressivement élargi cette vision, montrant comment ces lipides participent à la régulation de l’inflammation, de l’immunité, de la fonction neuronale, du métabolisme énergétique et même des processus impliqués dans le vieillissement et la progression de nombreuses pathologies chroniques. Aujourd’hui, les oméga-3 sont considérés comme de véritables régulateurs biologiques, capables d’influencer le comportement des cellules par des mécanismes qui vont bien au-delà du simple rôle structurel dans les membranes cellulaires.

Pour comprendre l’importance des oméga-3, il est utile d’imaginer la membrane cellulaire comme une ville entourée de remparts. Ces remparts ne représentent pas une barrière passive, mais un système dynamique qui régule continuellement l’entrée et la sortie de signaux, de nutriments et d’informations. L’EPA et le DHA sont incorporés dans les membranes cellulaires, modifiant leur fluidité, leur fonctionnalité et leur capacité à répondre aux stimuli environnementaux. Cette caractéristique permet aux oméga-3 d’influencer de nombreux processus biologiques, y compris la production de molécules impliquées dans la réponse inflammatoire (Lakshimi et Kavitha, 2023) [1].

L’un des aspects les plus pertinents apparus dans la littérature concerne le rapport entre les oméga-3 et les oméga-6. Les deux familles d’acides gras sont indispensables à la santé, mais elles doivent être présentes dans un équilibre approprié. Au cours de l’évolution humaine, le rapport entre les oméga-6 et les oméga-3 était probablement proche de 1:1. Avec l’avènement de l’alimentation moderne, caractérisée par une large utilisation d’huiles végétales raffinées et une réduction de la consommation de poisson, cet équilibre s’est progressivement altéré, atteignant dans de nombreuses populations occidentales des valeurs supérieures à 15:1, voire 20:1. Ce déséquilibre favorise la production de médiateurs lipidiques pro-inflammatoires et contribue au développement d’un état d’inflammation chronique de bas grade, une condition aujourd’hui considérée comme l’un des principaux facteurs à l’origine des maladies chroniques modernes (Poggioli et al., 2023) [2] ; (Lakshimi et Kavitha, 2023) [1].

D’un point de vue physiologique, l’EPA et le DHA agissent comme des antagonistes naturels de nombreux mécanismes inflammatoires. Lorsqu’une cellule est soumise à un stress ou à une lésion, des acides gras sont libérés des membranes, puis transformés en molécules signal. Si les oméga-6 prédominent, la réponse tend à être davantage inflammatoire ; si, au contraire, des quantités adéquates d’oméga-3 sont disponibles, des médiateurs spécialisés sont produits, favorisant la résolution de l’inflammation. Cela ne signifie pas supprimer le système immunitaire, mais le guider vers une conclusion ordonnée et efficace de la réponse inflammatoire (Poggioli et al., 2023) [2] ; (Lakshimi et Kavitha, 2023) [1].

L’action immunomodulatrice des oméga-3 représente l’un des domaines de recherche les plus prometteurs. L’EPA et le DHA sont capables de réduire l’activation des cellules immunitaires et de limiter la libération de cytokines pro-inflammatoires, des molécules qui, si elles sont produites en excès, peuvent contribuer aux lésions tissulaires. Cet effet a conduit de nombreux chercheurs à étudier leur rôle potentiel dans les maladies auto-immunes, des conditions dans lesquelles le système immunitaire perd la capacité de distinguer correctement ce qui appartient à l’organisme de ce qui lui est étranger. Plusieurs études ont observé une réduction de l’activité de la maladie dans des pathologies telles que la polyarthrite rhumatoïde, le lupus érythémateux disséminé, la sclérose en plaques et le diabète de type 1 chez les sujets consommant des quantités adéquates d’oméga-3 (Poggioli et al., 2023) [2].

Les effets des oméga-3 ne se limitent toutefois pas au système immunitaire périphérique. Une quantité particulièrement élevée de DHA est présente dans le cerveau, où il contribue à la structure des membranes neuronales et à la transmission des signaux nerveux. Ces dernières années, l’hypothèse selon laquelle de nombreuses maladies neurologiques et psychiatriques partagent un dénominateur commun, la neuro-inflammation chronique, a émergé avec une évidence croissante. Dans cette condition, les cellules normalement chargées de la protection du système nerveux, comme la microglie et les astrocytes, restent activées de manière persistante, produisant des substances inflammatoires qui compromettent la fonction neuronale. Dans le trouble dépressif majeur, par exemple, des augmentations de biomarqueurs associés aux lésions neuronales et à l’activation immunitaire cérébrale ont été observées. Les oméga-3 semblent contrer ces processus par la réduction de l’activation microgliale (la réponse des cellules de défense du cerveau, appelées microglie, aux infections, dommages ou autres menaces), la diminution de la production de cytokines inflammatoires et la modulation de biomarqueurs spécifiques des lésions neuronales (Malau et al., 2024) [3].

Ces observations aident à comprendre pourquoi de nombreuses études ont associé des niveaux adéquats d’oméga-3 à une meilleure santé mentale et cognitive. Le cerveau peut être comparé à un réseau électrique extrêmement complexe : pour que la communication entre les cellules nerveuses s’effectue correctement, les membranes neuronales doivent maintenir une structure flexible et fonctionnelle. L’EPA et le DHA contribuent à préserver cette caractéristique, favorisant la plasticité synaptique et la résilience neuronale face aux stimuli nocifs (Malau et al., 2024) [3].

L’importance des oméga-3 apparaît avec une évidence particulière au cours du vieillissement. Avec le passage des années, le risque de déclin cognitif, de réduction de la mobilité et de perte d’autonomie augmente. Dans une population de personnes âgées souffrant de troubles subjectifs de la mémoire, une consommation alimentaire plus élevée d’EPA et de DHA a été associée à de meilleures performances cognitives globales, une meilleure attention, une meilleure vitesse psychomotrice et de meilleurs paramètres de mobilité physique. En particulier, l’EPA a montré des associations favorables avec la vitesse de marche et d’autres mesures de la fonctionnalité motrice, suggérant que le maintien d’un apport adéquat en oméga-3 peut contribuer à préserver non seulement les capacités mentales, mais aussi physiques durant le vieillissement (Erhardt et al., 2021) [4].

Le métabolisme est également fortement influencé par la disponibilité des oméga-3. Les preuves scientifiques indiquent que ces acides gras peuvent améliorer la sensibilité à l’insuline, réduire l’inflammation systémique et préserver la fonction endothéliale. De plus, plusieurs études suggèrent un rôle potentiel dans le ralentissement de la progression des complications diabétiques telles que la rétinopathie, la néphropathie et la protéinurie, des conditions étroitement associées aux lésions vasculaires chroniques provoquées par l’hyperglycémie (Lakshimi et Kavitha, 2023) [1].

L’appareil cardiovasculaire représente probablement l’un des domaines les plus étudiés. Les oméga-3 contribuent à la réduction des triglycérides plasmatiques, améliorent la fonction endothéliale et modulent favorablement les processus inflammatoires impliqués dans l’athérosclérose. En d’autres termes, ils semblent agir à la fois sur la qualité du sang circulant dans les vaisseaux et sur la santé des parois vasculaires elles-mêmes. Ce double effet contribue à expliquer leur rôle consolidé dans la prévention cardiovasculaire (Lakshimi et Kavitha, 2023) [1] ; (Poggioli et al., 2023) [2].

L’intérêt pour les oméga-3 s’est également étendu au domaine oncologique. Une méta-analyse incluant vingt et une études de cohorte a observé qu’une consommation élevée de poisson et d’oméga-3 marins était associée à une meilleure survie chez les patients atteints de cancer. Les bénéfices se sont révélés particulièrement évidents dans certaines néoplasies, notamment le cancer de la prostate et le cancer de l’ovaire. Bien que les mécanismes ne soient pas encore totalement élucidés, les auteurs émettent l’hypothèse que la réduction de l’inflammation systémique, la modulation de la réponse immunitaire et l’inhibition des processus impliqués dans la croissance tumorale pourraient contribuer à ces effets (Wang et al., 2023) [5].

Les propriétés immunomodulatrices des oméga-3 ont également attiré l’attention dans le contexte des infections virales. Des études récentes suggèrent que l’EPA et le DHA peuvent contribuer à moduler la réponse inflammatoire systémique lors d’infections, réduisant le risque que la réponse immunitaire elle-même ne devienne excessivement agressive. Dans le cas du COVID-19, certains travaux ont rapporté des améliorations des paramètres respiratoires et des résultats cliniques chez les sujets consommant des oméga-3, bien que des études supplémentaires soient nécessaires pour confirmer définitivement ces résultats (Poggioli et al., 2023) [2] ; (Lakshimi et Kavitha, 2023) [1].

Dans leur ensemble, les preuves disponibles dessinent un tableau cohérent. Les oméga-3 ne sont pas simplement des nutriments énergétiques ou des composants structurels des membranes cellulaires, mais de véritables régulateurs de la communication biologique. Par la modulation de l’inflammation, de l’immunité, de la fonction neuronale et du métabolisme, l’EPA et le DHA participent à des processus fondamentaux pour le maintien de l’homéostasie. De plus, la prévalence croissante des maladies chroniques associées à l’inflammation rend particulièrement pertinent le rétablissement d’un équilibre adéquat entre oméga-6 et oméga-3, un objectif qui apparaît aujourd’hui non seulement nutritionnel, mais profondément physiologique. Les recherches les plus récentes suggèrent que le maintien de cet équilibre pourrait représenter l’un des outils les plus efficaces pour soutenir la santé tout au long de la vie, de la fonction cérébrale à la santé cardiovasculaire, de la régulation immunitaire jusqu’au vieillissement en bonne santé.

La supplémentation

Si la première étape pour comprendre les oméga-3 consiste à en connaître la physiologie, l'étape suivante est de comprendre ce qui se passe lorsque ces nutriments sont introduits en quantités supérieures à celles habituellement présentes dans l'alimentation. La supplémentation représente en effet un outil particulièrement intéressant car elle permet d'observer, dans des délais relativement courts, comment l'EPA et le DHA sont incorporés dans les tissus et comment cette incorporation peut se traduire par des modifications biologiques mesurables.

Pendant de nombreuses années, on a supposé que les effets des oméga-3 étaient le résultat de mécanismes indirects et lents. Cependant, les recherches les plus récentes ont démontré que l'EPA et le DHA peuvent être incorporés dans les tissus humains avec une rapidité surprenante. Une étude menée sur des patients ayant subi une chirurgie cardiaque a montré que la supplémentation en huile de poisson entraîne une accumulation progressive d'EPA et de DHA dans les phospholipides du tissu myocardique, avec des niveaux proches du maximum atteints après seulement trente jours de traitement environ (Metcalf et al., 2007) [6]. Cette donnée est particulièrement importante car elle démontre que le cœur n'est pas simplement exposé aux oméga-3 circulant dans le sang, mais qu'il les intègre directement dans sa propre structure cellulaire.

L'aspect peut-être le plus intéressant qui ressort de cette recherche concerne le phénomène de substitution lipidique. L'augmentation de l'EPA et du DHA dans les membranes cardiaques se fait en effet au détriment de l'acide arachidonique, l'un des acides gras oméga-6 les plus impliqués dans la synthèse de médiateurs pro-inflammatoires et pro-arythmiques. C'est comme si, au sein de la membrane cellulaire, de nouveaux protagonistes prenaient progressivement la place des précédents, modifiant le type de messages que la cellule sera capable de produire en réponse aux stimuli environnementaux (Metcalf et al., 2007) [6].

Cette dynamique ne concerne pas exclusivement le cœur. Des études de supplémentation à long terme ont démontré que l'EPA et le DHA sont incorporés progressivement dans les principaux compartiments lipidiques de l'organisme, notamment le plasma, les globules rouges, les plaquettes et les cellules immunitaires. Après douze mois de supplémentation, l'augmentation des oméga-3 s'est accompagnée d'une réduction dose-dépendante du rapport oméga-6/oméga-3 dans tous les compartiments analysés, avec des réductions atteignant environ 50 % dans les groupes ayant l'apport le plus élevé (Walker et al., 2015) [7].

Là encore, le changement ne se limite pas à un simple ajout quantitatif de nouveaux acides gras. L'augmentation de l'EPA et du DHA entraîne une véritable réorganisation des membranes cellulaires. Dans les globules rouges et les plaquettes, on observe une substitution de plusieurs AGPI oméga-6, notamment l'acide arachidonique, l'acide adrénique et l'acide dihomo-gamma-linolénique, tandis que dans les cellules immunitaires, les modifications impliquent même des acides gras saturés et mono-insaturés (Walker et al., 2015) [7]. Ces adaptations semblent viser à préserver la fluidité et la fonctionnalité des membranes cellulaires, influençant des processus tels que la communication intracellulaire, la réponse immunitaire et la régulation de l'inflammation.

La pertinence clinique de ces modifications apparaît clairement en observant les effets de la supplémentation chez les sujets à haut risque cardiovasculaire. Dans une étude randomisée menée sur des individus indo-asiatiques résidant au Royaume-Uni, une population caractérisée par un risque particulièrement élevé de maladie coronarienne, douze semaines de supplémentation en huile de poisson ont entraîné une réduction significative des triglycérides plasmatiques, une diminution de l'apolipoprotéine B-48 (une protéine produite dans l'intestin, essentielle à la formation des chylomicrons), une augmentation du HDL et une hausse marquée des niveaux plaquettaires d'EPA et de DHA. Parallèlement, une réduction de l'acide arachidonique a été observée dans les phospholipides plaquettaires, suggérant une fois de plus que les effets des oméga-3 sont étroitement liés à leur capacité à modifier la composition lipidique des membranes (Lovegrove et al., 2004) [8].

Ces résultats aident à comprendre un concept fondamental : la supplémentation en oméga-3 n'agit pas comme un médicament qui active un récepteur unique ou une voie métabolique spécifique. Elle modifie plutôt progressivement l'environnement biologique au sein duquel les cellules opèrent. C'est un processus que l'on pourrait comparer au remplacement progressif des matériaux de construction d'une maison. La structure externe peut paraître identique, mais ses caractéristiques fonctionnelles changent profondément.

Les effets de cette réorganisation lipidique sont particulièrement évidents dans les pathologies caractérisées par une forte composante inflammatoire et immunitaire. La sclérose en plaques en est un exemple emblématique. Cette maladie auto-immune du système nerveux central est caractérisée par une inflammation chronique, une démyélinisation et des dommages neuronaux progressifs. Une revue systématique des études cliniques disponibles a mis en évidence que la supplémentation en oméga-3 et en huile de poisson est associée à une réduction significative des marqueurs inflammatoires, à une amélioration de l'activité de la glutathion réductase (enzyme qui aide à protéger les cellules contre les dommages oxydatifs), à une diminution du taux de récidives cliniques et à une amélioration de la qualité de vie des patients (AlAmmar et al., 2021) [9].

Bien que les résultats des études ne soient pas totalement uniformes, le tableau général suggère que l'EPA et le DHA peuvent contribuer à rééquilibrer la réponse immunitaire qui caractérise la maladie, en réduisant la production de médiateurs inflammatoires et en favorisant un environnement biologique moins agressif pour le tissu nerveux.

Dans le domaine des maladies neurodégénératives également, l'intérêt pour la supplémentation en oméga-3 a considérablement augmenté. La maladie d'Alzheimer représente l'un des principaux défis sanitaires de notre époque et de nombreuses études ont cherché à évaluer si l'EPA et le DHA pouvaient ralentir la progression du déclin cognitif. Une récente revue systématique avec méta-analyse, comprenant près de trois mille participants, a observé que plus de la moitié des études incluses rapportaient une amélioration ou une stabilisation des fonctions cognitives chez les sujets traités avec des oméga-3, du DHA, de l'EPA ou des formulations nutritionnelles enrichies comme Souvenaid® (un aliment destiné à des fins médicales spéciales, formulé pour soutenir la mémoire chez les personnes atteintes de la maladie d'Alzheimer à un stade précoce).

L'analyse a mis en évidence une réduction significative de la progression du déclin cognitif évaluée par l'échelle Clinical Dementia Rating, suggérant que les oméga-3 peuvent contribuer à préserver plus longtemps certaines fonctions cognitives chez les sujets atteints d'Alzheimer. Bien que toutes les échelles cognitives n'aient pas montré de différences statistiquement significatives, la donnée revêt une importance particulière si l'on considère que la maladie est caractérisée par une détérioration neuronale progressive et que, à ce jour, les options thérapeutiques disponibles restent limitées (Calderon Martinez et al., 2024) [10].

Dans l'ensemble, ces études permettent de comprendre que la supplémentation en oméga-3 ne représente pas simplement une augmentation de l'apport d'un nutriment. L'EPA et le DHA sont incorporés dans les tissus, modifient la composition des membranes cellulaires, réduisent progressivement la présence d'acides gras pro-inflammatoires et influencent de nombreux processus biologiques allant de la fonction cardiovasculaire à la régulation immunitaire, jusqu'à la santé neurologique. Les preuves disponibles suggèrent qu'une grande partie des bénéfices observés dans les différentes pathologies pourrait découler précisément de cette capacité à remodeler lentement l'architecture lipidique de l'organisme, créant un environnement biologique plus favorable à la résilience cellulaire et au maintien de l'homéostasie.

Les pathologies traitées

Après avoir compris comment les oméga-3 sont incorporés dans les tissus et comment la supplémentation est capable de modifier profondément la composition des membranes cellulaires, il est naturel de se demander quelles sont les principales pathologies dans lesquelles ces changements biologiques peuvent se traduire par des bénéfices cliniques concrets. La réponse est étonnamment vaste. Au cours des dernières décennies, l'EPA et le DHA ont été étudiés dans de nombreux contextes pathologiques, souvent très différents les uns des autres, mais unis par la présence de certains mécanismes fondamentaux : inflammation chronique, stress oxydatif, altérations des membranes cellulaires et dysfonctionnements des systèmes de signalisation intracellulaire.

L'un des domaines ayant suscité le plus grand intérêt est celui des maladies neurodégénératives. Des pathologies comme la maladie d'Alzheimer et la maladie de Parkinson partagent de nombreux processus pathologiques, notamment une neuro-inflammation persistante, une accumulation de protéines anormales, un dysfonctionnement mitochondrial, des dommages oxydatifs et une perte neuronale progressive. Dans ce scénario, les oméga-3 ont attiré une attention particulière car ils possèdent une caractéristique rare : la capacité d'agir simultanément sur plusieurs mécanismes impliqués dans la maladie (Chitre et al., 2019) [11].

Pendant de nombreuses années, on a cru que les bénéfices neurologiques des oméga-3 étaient dus exclusivement à leur intégration dans les membranes neuronales. Les recherches les plus récentes ont cependant mis en évidence un tableau beaucoup plus complexe. L'EPA et le DHA semblent en effet se comporter comme de véritables ligands biologiques capables d'activer des récepteurs cellulaires spécifiques, appelés FFAR (Free Fatty Acid Receptors), impliqués dans la régulation de l'inflammation, du métabolisme lipidique et de la signalisation neuronale (Chitre et al., 2019) [11]. Cette découverte a ouvert la possibilité de considérer les oméga-3 non seulement comme des nutriments, mais comme des molécules dotées d'un potentiel pharmacologique direct.

Dans la maladie d'Alzheimer, principale cause de démence dans le monde occidental, l'intérêt pour l'EPA et le DHA découle de leur capacité à préserver la fonctionnalité neuronale et à contrer la neuro-inflammation. Comme déjà discuté dans le paragraphe précédent, de nombreuses études ont observé une réduction de la progression du déclin cognitif chez les sujets traités avec des oméga-3 (Calderon Martinez et al., 2024) [10]. Les nouvelles preuves suggèrent que ces effets pourraient être le résultat d'une combinaison d'actions anti-inflammatoires, antioxydantes et neuroprotectrices qui agissent simultanément sur les principaux mécanismes impliqués dans la neurodégénérescence (Chitre et al., 2019) [11].

La maladie de Parkinson représente également un domaine particulièrement prometteur. Cette pathologie est caractérisée par la perte progressive des neurones dopaminergiques de la substantia nigra (une région du cerveau qui produit de la dopamine, une substance fondamentale pour le contrôle des mouvements) et par l'accumulation d'agrégats protéiques constitués principalement d'α-synucléine (protéine présente surtout dans les neurones, où elle contribue à la communication entre les cellules nerveuses). Bien que les thérapies pharmacologiques actuelles soient capables d'améliorer temporairement les symptômes, elles ne parviennent pas à bloquer le processus neurodégénératif sous-jacent. Les oméga-3 ont été étudiés précisément pour leur capacité à intervenir sur les mécanismes qui alimentent la progression de la maladie (Li et Song, 2022) [12].

Les preuves expérimentales indiquent que l'EPA et le DHA peuvent réduire l'activation microgliale, diminuer la libération de cytokines pro-inflammatoires, améliorer la fonction mitochondriale, limiter la production d'espèces réactives de l'oxygène et favoriser la synthèse de facteurs neurotrophiques indispensables à la survie neuronale. De plus, certaines études suggèrent que les oméga-3 peuvent contribuer au maintien de la protéostasie (processus par lequel les cellules maintiennent les protéines fonctionnelles) de l'α-synucléine, l'un des processus centraux dans la physiopathologie de Parkinson (Li et Song, 2022) [12]. Bien que des études cliniques de grande envergure soient nécessaires, les résultats actuels indiquent que ces nutriments pourraient représenter un soutien important dans les stratégies thérapeutiques futures.

Un deuxième grand chapitre concerne les maladies cardiovasculaires. Dans ce domaine, les oméga-3 représentent probablement l'une des catégories nutritionnelles les plus étudiées au monde. Leurs effets ne se limitent pas à la réduction des triglycérides plasmatiques, mais impliquent de nombreux niveaux de la physiologie cardiovasculaire ; d'un point de vue métabolique, l'EPA et le DHA réduisent la disponibilité des acides gras libres pour le foie, limitent la production de lipoprotéines athérogènes et protègent ces particules contre les processus d'oxydation. Sur le plan vasculaire, en revanche, ils modifient directement la composition des membranes cellulaires de l'endothélium, améliorant sa fonction et favorisant une meilleure régulation du tonus vasculaire (Drenjančević et Pitha, 2022) [13].

Un aspect particulièrement intéressant concerne la comparaison entre l'EPA et le DHA. Plusieurs études suggèrent que l'EPA pourrait posséder une capacité supérieure à contrer les processus athérothrombotiques grâce à des propriétés moléculaires spécifiques qui améliorent la stabilité oxydative des membranes cellulaires. Parallèlement, les oméga-3 semblent exercer des effets antifibrotiques, antiarythmiques et potentiellement favorables dans l'insuffisance cardiaque, contribuant à protéger à la fois la structure et la fonction du myocarde (Drenjančević et Pitha, 2022) [13].

L'oncologie représente un autre secteur dans lequel le rôle des oméga-3 reçoit une attention croissante. La relation entre inflammation chronique et développement tumoral est aujourd'hui largement reconnue, et c'est précisément dans ce contexte que l'EPA et le DHA semblent exercer certaines de leurs actions les plus intéressantes. Les preuves épidémiologiques indiquent qu'une consommation accrue d'oméga-3 est associée à une incidence plus faible de plusieurs cancers, notamment ceux du sein, de la prostate et du côlon-rectum (Akbar et al., 2024) [14].

Les effets observés semblent dépendre de multiples mécanismes biologiques. Les oméga-3 peuvent altérer la fluidité des membranes cellulaires tumorales, favoriser l'apoptose des cellules néoplasiques, limiter la prolifération cellulaire, réduire la production de médiateurs inflammatoires, inhiber l'angiogenèse tumorale et moduler l'expression de gènes impliqués dans la carcinogenèse (Akbar et al., 2024) [14]. En d'autres termes, ils n'agissent pas via une cible unique, mais interfèrent simultanément avec plusieurs processus indispensables à la croissance et à la survie de la tumeur.

La dermatologie offre également des exemples intéressants de l'application clinique des oméga-3. L'acné vulgaire, souvent considérée exclusivement comme un problème esthétique, est en réalité une pathologie inflammatoire chronique complexe dans laquelle l'activation des voies inflammatoires joue un rôle central. Une étude prospective menée sur des patients atteints d'acné a mis en évidence que presque tous les participants présentaient initialement des niveaux insuffisants d'EPA et de DHA (Guertler et al., 2024) [15].

L'association entre régime méditerranéen et supplémentation en oméga-3 d'origine algale a entraîné une augmentation progressive de l'indice oméga-3 érythrocytaire, accompagnée d'une réduction significative des lésions inflammatoires et non inflammatoires. Les patients atteignant des niveaux optimaux d'EPA et de DHA montraient généralement les améliorations cliniques les plus marquées, suggérant une relation étroite entre le statut nutritionnel en oméga-3 et le contrôle de l'inflammation cutanée (Guertler et al., 2024) [15].

En observant ces pathologies dans leur ensemble, un élément commun émerge. Bien qu'Alzheimer, Parkinson, l'athérosclérose, le cancer et l'acné soient des conditions profondément différentes d'un point de vue clinique, elles partagent une série de mécanismes biologiques fondamentaux : inflammation persistante, stress oxydatif, altérations de la fonction cellulaire et perte de l'équilibre homéostatique. Les oméga-3 semblent exercer leurs effets précisément sur ces processus de base, agissant comme des modulateurs de l'environnement biologique plutôt que comme de simples correcteurs d'un symptôme unique.

Cette caractéristique pourrait expliquer pourquoi l'EPA et le DHA continuent de susciter de l'intérêt dans des domaines de la médecine apparemment éloignés les uns des autres. Plus qu'agir comme un traitement spécifique pour une maladie unique, les oméga-3 semblent influencer ces mécanismes fondamentaux qui sont communs à bon nombre des principales pathologies chroniques de l'ère moderne. Et c'est probablement cette capacité à intervenir en amont des processus pathologiques qui fait de ces nutriments l'un des sujets les plus fascinants et prometteurs de la recherche biomédicale contemporaine.

Mais ces propriétés peuvent-elles également influencer la réponse de l'organisme à l'insuline ? Pour répondre, il convient d'approfondir une condition métabolique de plus en plus répandue, dans laquelle l'inflammation chronique, l'accumulation de graisse et les altérations de la signalisation insulinique sont étroitement liées.

Oméga-3 et insulinorésistance

Parmi les altérations métaboliques les plus répandues, l'insulinorésistance représente un exemple significatif de la manière dont l'inflammation et le métabolisme peuvent s'influencer mutuellement. Lorsque les cellules deviennent moins sensibles à l'insuline, l'organisme doit s'adapter pour maintenir la glycémie stable. Ce processus implique de nombreux tissus et divers mécanismes cellulaires. Les oméga-3, grâce à leurs propriétés anti-inflammatoires et à leur capacité à modifier les membranes cellulaires, pourraient contribuer à améliorer cet équilibre.

À la base de ce processus, il n'y a pas un seul mécanisme, mais un réseau complexe dans lequel convergent une inflammation chronique de bas grade, une accumulation de graisse viscérale, un stress oxydatif, un dysfonctionnement mitochondrial, une altération des membranes cellulaires et une accumulation de lipides dans le foie et les muscles. Dans ce contexte, les oméga-3 à longue chaîne, en particulier l'EPA et le DHA, jouent un rôle particulièrement intéressant car ils agissent simultanément sur bon nombre de ces altérations (Delarue, 2025) [16].

Les preuves expérimentales montrent de manière assez cohérente que l'EPA et le DHA réduisent l'inflammation du tissu adipeux, limitent l'infiltration macrophagique, diminuent la production de cytokines pro-inflammatoires telles que le TNF-α, l'IL-6 et la MCP-1, et favorisent la synthèse de médiateurs pro-résolutifs spécialisés, notamment les résolvines, les protectines et les maresines. Cette étape est fondamentale car le tissu adipeux enflammé ne représente plus un simple dépôt énergétique, mais devient un organe endocrinien dysfonctionnel capable d'interférer directement avec la signalisation insulinique.

L'EPA et le DHA semblent également améliorer la sensibilité à l'insuline par la modulation des membranes cellulaires et des voies intracellulaires impliquées dans la transmission du signal insulinique, y compris la cascade PI3K/AKT. En parallèle, ils contribuent à l'amélioration de la fonction mitochondriale, à la réduction du stress oxydatif et à la diminution de l'accumulation de triglycérides intrahépatiques, un élément particulièrement pertinent dans les conditions de stéatose hépatique métabolique (Delarue, 2025) [16].

L'une des conditions dans lesquelles les effets apparaissent les plus convaincants est le diabète gestationnel. Dans une méta-analyse d'essais cliniques randomisés, la supplémentation en oméga-3 a entraîné une réduction significative de la glycémie à jeun, de l'insuline à jeun et de l'indice HOMA-IR, indiquant une amélioration de la sensibilité à l'insuline chez les femmes traitées. Parallèlement, divers paramètres lipidiques se sont également améliorés, avec une réduction des triglycérides et du cholestérol VLDL et une augmentation du cholestérol HDL ; la donnée inflammatoire est tout aussi pertinente : chez les patientes atteintes de diabète gestationnel, la supplémentation en oméga-3 a réduit de manière significative les niveaux de protéine C-réactive, suggérant que l'amélioration de la sensibilité à l'insuline pourrait être étroitement liée à la réduction de l'inflammation systémique (Liu et al., 2023) [17].

Un autre domaine particulièrement significatif est le syndrome des ovaires polykystiques (SOPK, un trouble hormonal et métabolique qui touche les femmes en âge de procréer), une condition dans laquelle l'insulinorésistance représente l'un des principaux moteurs physiopathologiques. Dans une méta-analyse menée sur des femmes atteintes de cette pathologie, la supplémentation en oméga-3 a réduit de manière significative l'insuline sérique, l'HOMA-IR, le cholestérol total, les triglycérides, le cholestérol LDL, le VLDL et la protéine C-réactive à haute sensibilité, tout en augmentant le cholestérol HDL ; ces résultats sont importants car ils montrent que les oméga-3 n'interviennent pas seulement sur un seul paramètre, mais améliorent simultanément le profil insulinique, lipidique et inflammatoire (Xia et al., 2021) [18]. Dans une pathologie comme le SOPK, où l'hyperinsulinémie, l'inflammation et la dyslipidémie se renforcent mutuellement, une intervention capable d'agir sur plusieurs niveaux peut revêtir une valeur clinique importante.

Une revue consacrée aux études cliniques et de cohorte sur le SOPK confirme cette orientation. Les oméga-3 sont associés à des bénéfices sur le métabolisme glucidique, avec une réduction de l'insulinorésistance et une amélioration de la sensibilité à l'insuline ; ils montrent également des effets favorables sur le profil lipidique et, dans certaines études, sur le profil androgénique. Ce point est particulièrement intéressant car l'hyperinsulinémie contribue directement à l'hyperandrogénisme ovarien, créant un cercle vicieux qui soutient de nombreuses manifestations cliniques du syndrome (Melo et al., 2022) [19].

Le rôle des oméga-3 dans l'insulinorésistance émerge également en âge pédiatrique. Dans une étude menée sur des enfants et des adolescents obèses présentant une insulinorésistance, la supplémentation avec 1,8 gramme par jour d'oméga-3 pendant douze semaines a entraîné une réduction significative de la glycémie, de l'insulinémie et de l'indice HOMA-IR. Le même groupe a également montré une réduction marquée des triglycérides et une diminution significative de l'IMC (Indice de Masse Corporelle, une valeur qui met en relation le poids avec la taille d'une personne) (Juárez-López et al., 2013) [20].

Cette donnée revêt une valeur particulière car l'obésité infantile représente une fenêtre précoce de risque métabolique. Intervenir sur l'insulinorésistance dès l'âge pédiatrique signifie potentiellement modifier une trajectoire qui, dans les années suivantes, pourrait conduire au diabète de type 2, au syndrome métabolique et aux maladies cardiovasculaires.

Lorsque l'on observe le diabète dans son ensemble, les preuves deviennent plus hétérogènes mais restent néanmoins intéressantes. Une revue systématique avec méta-analyse de trente essais cliniques randomisés a montré que la supplémentation en oméga-3 réduit significativement la glycémie à jeun et la résistance à l'insuline, bien que sans produire d'effets statistiquement significatifs sur l'hémoglobine glyquée (Delpino et al., 2022) [21].

Les oméga-3 ne doivent pas être interprétés comme une thérapie substitutive du diabète ou de l'insulinorésistance, mais comme une intervention nutritionnelle complémentaire capable d'améliorer le terrain biologique sur lequel ces conditions se développent. Ils peuvent réduire l'inflammation, améliorer le profil lipidique, soutenir la fonction mitochondriale, moduler la signalisation insulinique et favoriser une meilleure réponse métabolique, surtout lorsqu'ils sont intégrés dans un contexte plus large d'alimentation correcte, d'activité physique, de réduction de la graisse viscérale et de contrôle des facteurs de risque cardiovasculaire.

Dans leur ensemble, les preuves suggèrent que les oméga-3 agissent sur l'insulinorésistance non pas par un mécanisme unique, mais par un réseau d'effets convergents. En réduisant l'inflammation du tissu adipeux, en améliorant la qualité des membranes cellulaires, en modulant l'AMPK, en contenant l'activation excessive de mTOR et en soutenant la fonction mitochondriale, l'EPA et le DHA contribuent à rendre la cellule métaboliquement plus flexible.

Dans cette perspective, l'insulinorésistance peut être vue comme une cellule qui a perdu son élasticité : elle reçoit des signaux, mais peine à s'adapter. Les oméga-3 semblent contribuer à restituer une partie de cette élasticité biologique. Ils n'imposent pas à la cellule une direction unique, mais l'aident à sortir d'un état inflammatoire, rigide et dysfonctionnel, favorisant un environnement plus propice à la réponse insulinique et à l'homéostasie métabolique.

Cependant, pour mieux comprendre ces effets, il faut également considérer le rapport entre l'EPA, le DHA et l'acide arachidonique, un oméga-6 impliqué dans la production de médiateurs inflammatoires. Cet équilibre pourrait influencer non seulement la sensibilité à l'insuline, mais aussi l'activité de voies fondamentales pour la croissance cellulaire. Parmi celles-ci, la cascade PI3K/AKT/mTOR, déjà approfondie dans les chapitres précédents, revêt une importance particulière.

L’acide arachidonique et mTOR

Pour comprendre cette relation, nous devons observer comment l'acide arachidonique peut influencer directement les signaux qui régulent la croissance, l'inflammation et le métabolisme cellulaire. Bien qu'il s'agisse d'un composant physiologique des membranes, son activité biologique va bien au-delà de la production de médiateurs inflammatoires. Certaines recherches ont en effet démontré qu'il peut activer la cascade PI3K/AKT et, par des mécanismes différents, également mTOR. Ces observations permettent d'approfondir le rapport entre les Oméga-3 et les Oméga-6, en soulignant comment des acides gras spécifiques peuvent moduler d'importants processus cellulaires.

Pendant de nombreuses années, l'acide arachidonique a été considéré principalement comme le précurseur des eicosanoïdes, une vaste famille de molécules bioactives comprenant les prostaglandines, les thromboxanes et les leucotriènes. Les recherches les plus récentes ont cependant montré que son rôle est beaucoup plus large. L'acide arachidonique peut en effet agir directement comme une molécule signal, en activant des voies intracellulaires spécifiques indépendamment de la simple production de ses métabolites. L'une des premières études ayant contribué à clarifier ce concept a démontré que l'acide arachidonique est capable d'activer rapidement la phosphatidylinositol-3-kinase (PI3K), l'un des principaux nœuds régulateurs du métabolisme et de la croissance cellulaire. Dans les cellules endothéliales, les neutrophiles et les cellules myéloïdes, l'exposition à l'acide arachidonique détermine en effet une augmentation rapide de l'activité de PI3K, accompagnée de l'activation ultérieure d'AKT, l'une des principales protéines effectrices en aval de cette voie de signalisation (Hii et al., 2001) [22].

Pour comprendre l'importance de ce phénomène, il est utile d'imaginer PI3K comme le tableau électrique central d'une grande entreprise. Lorsqu'il est activé, de nombreux systèmes commencent à fonctionner simultanément : croissance cellulaire, survie, synthèse protéique, métabolisme énergétique et réponse inflammatoire. L'acide arachidonique semble donc posséder la capacité d'appuyer directement sur l'un des interrupteurs les plus importants de toute la physiologie cellulaire.

Par la suite, il a été observé que cette activation ne s'arrête pas à PI3K. Dans les cellules musculaires lisses vasculaires, l'acide arachidonique induit une phosphorylation séquentielle d'AKT, S6K1, 4EBP1 et eIF4E, toutes des molécules appartenant à la cascade PI3K/AKT/mTOR qui contrôle le début de la synthèse protéique (Neeli et al., 2003) [23]. En d'autres termes, la présence d'acide arachidonique signale à la cellule que les conditions sont réunies pour augmenter la production de nouvelles protéines et favoriser la croissance cellulaire.

Cette étape est particulièrement importante car elle représente l'un des principaux points de connexion entre la nutrition et la croissance des tissus. mTOR, en effet, peut être considéré comme une sorte de capteur biologique de l'abondance. Lorsqu'il est activé, il interprète l'environnement comme favorable à la croissance et stimule une série de processus anaboliques. L'étude de Neeli et ses collaborateurs a démontré que l'acide arachidonique est capable d'activer directement cette voie, augmentant significativement la synthèse protéique cellulaire (Neeli et al., 2003) [23].

Les implications de ce phénomène deviennent encore plus évidentes dans le contexte oncologique. Dans les cellules de carcinome prostatique, il a été observé que l'acide arachidonique active rapidement la cascade PI3K/AKT, favorisant ensuite la translocation nucléaire du facteur de transcription NF-κB (Hughes-Fulford et al., 2006) [24]. NF-κB représente l'un des principaux régulateurs de l'inflammation et de la prolifération cellulaire et contrôle l'expression de nombreux gènes impliqués dans la croissance tumorale.

L'exposition des cellules tumorales à l'acide arachidonique détermine en effet l'augmentation de l'expression de molécules pro-inflammatoires et pro-prolifératives telles que COX-2, IL-1β, IL-6, TNF-α, GM-CSF et ICAM-1. Plus significatif encore, le blocage pharmacologique de PI3K réduit de manière substantielle tant l'activation de ces gènes que la prolifération cellulaire elle-même, confirmant le rôle central de la cascade PI3K/AKT comme médiateur des effets de l'acide arachidonique (Hughes-Fulford et al., 2006) [24].

Un tableau analogue émerge dans le carcinome mammaire agressif. Dans ce contexte, l'acide arachidonique s'est révélé capable d'activer AKT par un mécanisme dépendant de l'EGFR (récepteur du facteur de croissance épidermique) et de PI3K, favorisant la migration et l'invasion des cellules tumorales. Ces processus représentent certaines des caractéristiques fondamentales de la progression néoplasique, car ils permettent aux cellules tumorales d'abandonner la tumeur primaire et de coloniser d'autres tissus ; l'aspect le plus intéressant de cette étude est que l'acide arachidonique ne se limite pas à stimuler la croissance cellulaire, mais semble favoriser également l'acquisition d'un comportement biologique plus agressif. Grâce à l'activation coordonnée de PI3K, AKT, EGFR et NF-κB, les cellules acquièrent en effet une plus grande capacité de mouvement, d'invasion et de dégradation de la matrice extracellulaire (Villegas-Comonfort et al., 2014) [25].

La découverte la plus importante est cependant arrivée quelques années plus tard, lorsqu'il a été démontré que l'acide arachidonique peut activer directement mTOR par un mécanisme jusqu'alors inconnu. En analysant des échantillons de tumeur mammaire humaine, les chercheurs ont observé une forte corrélation entre les niveaux d'acide arachidonique et l'activité de mTORC1 et de mTORC2, les deux complexes qui constituent le système mTOR (Wen et al., 2013) [26].

Ce qui rend ces résultats particulièrement pertinents est le fait que l'activation de mTOR induite par l'acide arachidonique ne dépend pas des mécanismes classiques normalement impliqués dans sa régulation. Dans des conditions physiologiques, mTOR est généralement activé par les nutriments, l'insuline, les facteurs de croissance et les acides aminés. Dans cette étude, en revanche, l'acide arachidonique s'est révélé capable de stimuler directement mTORC1 par une voie indépendante de PI3K, des acides aminés et du complexe TSC2 ; cela signifie que l'acide arachidonique possède la capacité de contourner certains des principaux systèmes de contrôle physiologique normalement chargés de réguler la croissance cellulaire. Dans les modèles animaux, cette activation s'est traduite par une augmentation de l'angiogenèse, de la prolifération cellulaire et de l'incidence tumorale, des effets qui étaient complètement bloqués par la rapamycine, un puissant inhibiteur de mTOR (Wen et al., 2013) [26].

Ces observations revêtent une importance particulière si elles sont replacées dans le contexte de l'alimentation moderne. Comme discuté dans les paragraphes précédents, l'alimentation occidentale se caractérise par une augmentation marquée de l'apport en Oméga-6 et par une réduction de la consommation d'Oméga-3. Ce déséquilibre modifie progressivement la composition des membranes cellulaires, augmentant la disponibilité d'acide arachidonique dans les tissus. En considérant la capacité de l'acide arachidonique à activer PI3K, AKT, NF-κB et mTOR, il devient évident que le rapport entre les Oméga-6 et les Oméga-3 peut influencer bien plus que la simple inflammation.

Dans leur ensemble, les preuves actuellement disponibles dessinent un modèle biologique cohérent. L'acide arachidonique ne représente pas seulement le précurseur de médiateurs inflammatoires, mais se comporte comme un véritable régulateur de la croissance cellulaire. Grâce à l'activation coordonnée de la voie PI3K/AKT/mTOR, il est capable d'influencer la synthèse protéique, la prolifération cellulaire, l'angiogenèse et la progression tumorale. Comprendre ces mécanismes est fondamental pour interpréter correctement le rôle des Oméga-3 qui, en remplaçant progressivement l'acide arachidonique dans les membranes cellulaires, peuvent contribuer à réduire l'intensité de ces signaux prolifératifs et inflammatoires.

Oméga-3 et acide arachidonique

Si l’acide arachidonique représente l’un des principaux promoteurs des voies cellulaires impliquées dans l’inflammation, la prolifération et l’activation de mTOR, il est naturel de se demander comment les Oméga-3 parviennent à exercer leurs effets protecteurs. La réponse ressort clairement des recherches les plus récentes : l’EPA et le DHA n’agissent pas simplement en s’ajoutant aux membranes cellulaires, mais ils remplacent progressivement l’acide arachidonique au sein des tissus, modifiant ainsi l’ensemble de l’environnement biochimique dans lequel opèrent les cellules.

Pour comprendre ce phénomène, il est utile d’imaginer la membrane cellulaire comme un immense panneau de contrôle composé de milliers d’interrupteurs. Chaque acide gras inséré dans la membrane contribue à déterminer quels signaux seront transmis et avec quelle intensité. Lorsque l’acide arachidonique prédomine, la cellule dispose d’une plus grande réserve de substrats pour la production de médiateurs pro-inflammatoires et pour l’activation des voies impliquées dans la croissance cellulaire. En revanche, lorsque l’EPA et le DHA prennent sa place, la nature même des signaux cellulaires change.

Les premières preuves de ce phénomène sont apparues dès les années quatre-vingt. Une étude menée sur des sujets sains a démontré que quelques semaines de supplémentation en EPA entraînent une incorporation significative de cet Oméga-3 dans les phospholipides des membranes plaquettaires, accompagnée d’une réduction parallèle de l’acide arachidonique présent dans les mêmes compartiments lipidiques (Galloway et al., 1985) [27]. Cette donnée est particulièrement importante car elle démontre que l’EPA ne se limite pas à circuler dans le sang, mais pénètre physiquement dans les structures cellulaires en occupant les espaces précédemment occupés par l’acide arachidonique.

Au fil des années, des études de plus en plus sophistiquées ont permis de comprendre que cette substitution n’est pas un phénomène limité aux plaquettes. Chez de jeunes adultes sains, la consommation de poisson, d’huile de poisson ou de DHA hautement concentré a entraîné une augmentation significative des niveaux d’EPA et de DHA dans les lipides plasmatiques, les membranes érythrocytaires et les plaquettes, accompagnée d’une réduction des AGPI (acides gras polyinsaturés présents dans des aliments comme le poisson, les noix et les huiles végétales) appartenant à la famille des Oméga-6. Une relation directe est également apparue entre la quantité consommée et la quantité incorporée dans les tissus : plus l’apport en Oméga-3 était élevé, plus la substitution des acides gras Oméga-6 présents dans les membranes cellulaires était importante (Vidgren et al., 1997) [28].

L’un des aspects les plus intéressants observés dans cette étude concerne le comportement du DHA. En plus de s’incorporer directement dans les membranes, une partie du DHA est convertie rétrogradement en EPA, augmentant ainsi davantage la disponibilité des acides gras Oméga-3 biologiquement actifs. Ce mécanisme amplifie encore la capacité des Oméga-3 à modifier le rapport entre l’EPA, le DHA et l’acide arachidonique au sein des tissus.

Les recherches ultérieures ont montré que la substitution de l’acide arachidonique est un phénomène extrêmement organisé et spécifique. En analysant différents compartiments biologiques après douze mois de supplémentation en EPA et DHA, il a été observé que l’augmentation des Oméga-3 est compensée principalement par une réduction des AGPI Oméga-6, y compris l’acide arachidonique, dans les phospholipides plasmatiques, les globules rouges et les plaquettes. Dans certains compartiments, la supplémentation équivalente à environ quatre portions hebdomadaires de poisson bleu a réduit le rapport Oméga-6/Oméga-3 d’environ 50 % (Walker et al., 2015) [7].

Cette donnée revêt une importance biologique énorme. Comme vu dans le paragraphe précédent, l’acide arachidonique représente un activateur direct des voies PI3K/AKT/mTOR et NF-κB. Réduire progressivement sa présence dans les membranes signifie diminuer le potentiel d’activation de ces voies. En d’autres termes, l’EPA et le DHA n’agissent pas seulement en produisant des médiateurs anti-inflammatoires, mais ils réduisent également la disponibilité du substrat à l’origine de nombreux signaux pro-inflammatoires et pro-prolifératifs.

La substitution de l’acide arachidonique a également été observée dans des conditions pathologiques caractérisées par d’importantes altérations du métabolisme lipidique. Chez les enfants atteints de mucoviscidose, la supplémentation en DHA hautement concentré pendant douze mois a entraîné une augmentation marquée des niveaux érythrocytaires de DHA et d’EPA, accompagnée d’une réduction significative des niveaux d’acide arachidonique et des rapports ARA/DHA et ARA/EPA. Ces modifications ont été associées à une réduction des marqueurs lipidiques de l’inflammation et à une amélioration de l’équilibre global entre les AGPI Oméga-6 et Oméga-3 (Ayats-Vidal et al., 2023) [29].

Ce concept apparaît particulièrement important car il souligne que le rapport entre l’acide arachidonique et les Oméga-3 pourrait représenter un biomarqueur biologiquement plus significatif que la simple quantité absolue de chaque acide gras. Ce qui compte, ce n’est pas seulement la quantité de DHA ou d’EPA présente dans l’organisme, mais aussi la quantité d’acide arachidonique disponible pour entrer en compétition avec eux dans les processus de signalisation cellulaire.

Les implications cliniques de cet équilibre ressortent clairement chez les patients critiques admis en soins intensifs. Dans une étude menée sur des sujets âgés gravement malades, ceux qui présentaient des concentrations plus élevées de DHA et d’Oméga-3 totaux montraient une meilleure survie par rapport aux patients ayant des niveaux inférieurs. La supplémentation intraveineuse en Oméga-3 a entraîné une augmentation rapide de l’EPA et du DHA et une réduction concomitante de l’acide arachidonique et du rapport ARA/EPA (Barros et al., 2013) [30].

Ce changement n’est pas resté confiné aux données biochimiques. Les patients recevant des Oméga-3 ont montré une amélioration significative des échanges gazeux et un profil lipidique plus favorable du point de vue inflammatoire. Une fois de plus, le même schéma observé dans les études précédentes émerge : à mesure que l’EPA et le DHA augmentent, la disponibilité de l’acide arachidonique diminue et le contexte biologique dans lequel se développent les réponses inflammatoires se modifie.

En observant l’ensemble de ces preuves, une vision très différente de celle traditionnellement attribuée aux Oméga-3 émerge. Pendant longtemps, l’EPA et le DHA ont été considérés simplement comme des nutriments dotés de propriétés anti-inflammatoires. En réalité, les données montrent que leur effet principal pourrait être encore plus profond. Les Oméga-3 modifient progressivement la composition des membranes cellulaires, remplacent l’acide arachidonique dans les compartiments biologiques, réduisent le rapport Oméga-6/Oméga-3 et altèrent la disponibilité des substrats utilisés par les cellules pour générer des signaux inflammatoires et prolifératifs.

Dans cette perspective, le rapport entre les Oméga-3 et l’acide arachidonique ne représente pas seulement un indice nutritionnel, mais un véritable indicateur de l’équilibre biologique de l’organisme. D’un côté, nous trouvons un acide gras capable d’alimenter des voies comme PI3K, AKT et mTOR ; de l’autre, nous trouvons des nutriments qui en réduisent progressivement la présence dans les membranes cellulaires et en limitent l’influence physiologique. C’est précisément dans cet équilibre délicat que semble résider une part significative des effets attribués aux Oméga-3 sur la santé humaine.

Oméga-3 et mTOR

Dans le paragraphe précédent, nous avons vu comment l'EPA et le DHA sont capables de remplacer progressivement l'acide arachidonique au sein des membranes cellulaires. Cette substitution produit des conséquences qui vont bien au-delà de la simple modification de la composition lipidique. L'un des effets les plus pertinents apparus dans la littérature scientifique concerne en effet la régulation de mTOR, l'une des principales centrales de contrôle de la croissance cellulaire, du métabolisme énergétique et de la synthèse protéique.

Pour comprendre la signification biologique de cette relation, il est utile de rappeler que mTOR agit comme un capteur d'abondance. Lorsque les nutriments, l'énergie et les facteurs de croissance sont disponibles en quantité adéquate, cette protéine favorise la croissance cellulaire, la synthèse de nouvelles protéines et la prolifération des tissus. En revanche, lorsque l'activité de mTOR est réduite, la cellule tend à s'orienter vers des programmes métaboliques davantage axés sur l'entretien, la réparation et le recyclage des structures endommagées.

Ces dernières années, une donnée particulièrement intéressante a émergé : alors que l'acide arachidonique tend à activer mTOR, les oméga-3 semblent exercer l'effet inverse. L'EPA et le DHA agissent en effet comme des régulateurs négatifs de cette voie de signalisation, contribuant à limiter l'activation excessive des processus prolifératifs et inflammatoires.

L'une des démonstrations les plus récentes de ce phénomène provient d'une étude menée sur des souris soumises à un stress thermique chronique, une condition capable de compromettre la fonction cognitive et d'augmenter significativement le stress oxydatif cérébral. Dans ce modèle expérimental, l'exposition à la chaleur a entraîné une activation marquée de la cascade PI3K-AKT-mTOR au sein de l'hippocampe, accompagnée d'altérations de la fonction neuronale et d'une détérioration des capacités cognitives (Ren et al., 2025) [31].

L'apport en oméga-3 a profondément modifié ce scénario. Les niveaux cérébraux d'EPA et de DHA ont augmenté, tandis que la phosphorylation des protéines appartenant à la voie PI3K-AKT-mTOR a diminué de manière significative. Parallèlement, une amélioration des performances cognitives, une réduction du stress oxydatif, une meilleure conservation de la structure neuronale et une diminution des dommages mitochondriaux ont été observées. Ce qui rend ces résultats particulièrement intéressants est le rôle de l'autophagie. Comme déjà discuté dans d'autres chapitres du livre, l'autophagie peut être comparée au système d'entretien interne de la cellule. À travers ce processus, les organites endommagés, les agrégats protéiques et les composants cellulaires qui ne sont plus fonctionnels sont éliminés. L'étude a démontré que les oméga-3 améliorent le flux autophagique précisément par l'inhibition de la voie PI3K-AKT-mTOR, permettant aux cellules nerveuses de maintenir plus efficacement leur intégrité structurelle (Ren et al., 2025) [31].

L'effet inhibiteur des oméga-3 sur mTOR ne semble cependant pas limité au système nerveux. Dans le cancer colorectal, l'une des néoplasies les plus fréquemment associées à l'hyperactivation de la cascade PI3K/AKT/mTOR, l'EPA et le DHA ont montré leur capacité à réduire la prolifération cellulaire et à augmenter l'apoptose, c'est-à-dire la mort programmée des cellules tumorales ; dans des modèles animaux de carcinome colorectal induit chimiquement, les oméga-3 ont réduit l'incidence et la gravité des lésions tumorales. Les études cellulaires ont également mis en évidence une suppression significative de la voie PI3K/AKT/Bcl-2, l'un des principaux réseaux de signalisation qui convergent sur mTOR et qui favorisent la survie des cellules tumorales. Lorsque les chercheurs ont réactivé artificiellement PI3K, une grande partie des effets antitumoraux des oméga-3 a été atténuée, confirmant que la modulation de cette voie représente l'un des mécanismes centraux de leur activité biologique (Huang et al., 2020) [32].

Un tableau analogue émerge également dans l'étude de la fibrose hépatique. Cette condition, caractérisée par une substitution progressive du tissu hépatique normal par du tissu fibreux, représente l'une des principales causes d'insuffisance hépatique chronique. Dans des modèles expérimentaux où la production endogène d'oméga-3 était augmentée par l'expression du gène fat-1, une réduction marquée de la fibrose hépatique et de l'inflammation tissulaire a été observée ; les analyses moléculaires ont montré que cette protection était accompagnée d'une réduction significative de l'activité de mTOR et d'une modulation simultanée des signaux qui régulent la survie cellulaire, y compris les systèmes Bcl-2 et Bax. De plus, le DHA s'est révélé capable de réduire directement l'activation des cellules stellaires hépatiques, considérées comme les principaux moteurs de la fibrogenèse (Shan et al., 2021) [33].

Les preuves peut-être les plus spectaculaires proviennent cependant de la recherche oncologique. Dans le carcinome pulmonaire non à petites cellules, le DHA a démontré sa capacité à réprimer directement mTOR par un double mécanisme biologique : d'un côté, il active AMPK, le principal capteur énergétique de la cellule ; de l'autre, il inhibe la cascade PI3K/AKT ; cette double intervention entraîne une réduction profonde de l'activité de mTOR et induit simultanément deux processus fondamentaux pour le contrôle de la croissance tumorale : l'apoptose et l'autophagie. Lorsque les chercheurs ont bloqué AMPK ou réactivé artificiellement AKT, l'activité de mTOR a recommencé à augmenter et une grande partie de la mort cellulaire induite par le DHA a disparu (Kim et al., 2015) [34]. Ce résultat suggère que l'inhibition de mTOR ne représente pas un effet secondaire des oméga-3, mais l'un des mécanismes centraux par lesquels ils exercent leur activité biologique.

Un élément de confirmation supplémentaire provient des études sur le rapport entre oméga-3 et oméga-6. En utilisant des souris génétiquement modifiées pour convertir les oméga-6 en oméga-3 par l'expression de l'enzyme fat-1, les chercheurs ont observé que l'augmentation du rapport PUFA n-3/n-6 entraîne une suppression significative de mTORC1, l'un des deux principaux complexes fonctionnels de mTOR. Chez les souris porteuses de mutations APC, un modèle expérimental qui reproduit fidèlement la carcinogenèse colorectale humaine, l'augmentation du rapport oméga-3/oméga-6 a réduit drastiquement le nombre et la taille des tumeurs intestinales. Encore plus intéressante est la comparaison directe entre le DHA, l'EPA et l'acide arachidonique : alors que l'EPA et le DHA ont inhibé la prolifération cellulaire et favorisé l'apoptose, l'acide arachidonique a montré des effets opposés (Liu et al., 2016) [35].

Cette donnée crée un lien direct avec le paragraphe précédent. D'un côté, nous trouvons l'acide arachidonique, capable d'activer PI3K, AKT et mTOR ; de l'autre, l'EPA et le DHA, capables de supprimer ces mêmes voies de signalisation. Il ne s'agit pas simplement de nutriments ayant des effets différents, mais de molécules qui semblent exercer des actions biologiques opposées sur les mêmes nœuds régulateurs du métabolisme cellulaire.

Dans leur ensemble, ces preuves suggèrent qu'une part importante des bénéfices attribués aux oméga-3 pourrait découler précisément de leur capacité à moduler négativement mTOR. Par l'inhibition de la cascade PI3K/AKT/mTOR, l'activation d'AMPK, la promotion de l'autophagie et la réduction des signaux prolifératifs, l'EPA et le DHA contribuent à déplacer l'équilibre cellulaire de la croissance incontrôlée vers le maintien de l'homéostasie. Dans cette perspective, le rapport entre oméga-3 et mTOR représente l'un des points de rencontre les plus importants entre nutrition, métabolisme et prévention des maladies chroniques.

Oméga-3 et AMPK

Si mTOR peut être considéré comme le capteur cellulaire de l'abondance, l'AMPK représente son contrepoids physiologique. Les deux protéines fonctionnent comme les plateaux d'une balance métabolique. Lorsque mTOR prédomine, la cellule interprète l'environnement comme favorable à la croissance, à la synthèse protéique et à la prolifération. En revanche, lorsque l'AMPK s'active, le message biologique change radicalement : la priorité n'est plus de croître, mais de conserver l'énergie, de réparer les dommages et de maintenir l'homéostasie.

L'AMPK, dont le nom complet est AMP-activated protein kinase, est souvent définie comme le principal capteur énergétique de la cellule. Lorsque les réserves énergétiques diminuent ou que la cellule est exposée à des conditions de stress, cette protéine s'active et coordonne une vaste réponse adaptative visant à rétablir l'équilibre métabolique. Parmi ses effets les plus importants figurent la stimulation de l'autophagie, l'inhibition de la synthèse lipidique, la réduction de l'inflammation et la suppression de l'activité de mTOR.

Ces dernières années, il est apparu de plus en plus clairement que l'EPA et le DHA possèdent une capacité remarquable à activer l'AMPK dans de nombreux tissus et conditions pathologiques différents. Cette observation est particulièrement pertinente car elle suggère que bon nombre des effets attribués aux oméga-3 pourraient être médiés précisément par ce capteur énergétique central.

L'une des démonstrations les plus complètes provient des études sur le sepsis (une réaction grave de l'organisme à une infection, qui provoque une inflammation diffuse et peut endommager des organes vitaux). Pendant le sepsis, la réponse immunitaire perd son contrôle physiologique et génère des dommages diffus impliquant simultanément le foie, les reins, le cœur et d'autres organes vitaux. Dans un modèle expérimental de sepsis induit par ligature et perforation du cæcum (la première partie du gros intestin), les oméga-3 ont réduit de manière significative la production de cytokines inflammatoires et atténué les dommages multiorganiques ; l'analyse moléculaire a mis en évidence que ces effets étaient étroitement associés à une puissante activation de l'AMPK et à une inhibition concomitante de mTOR. Plus intéressant encore, le blocage pharmacologique de l'AMPK ou la réactivation artificielle de mTOR ont réduit significativement la protection induite par les oméga-3 (Liu et al., 2023) [36].

Ce résultat suggère que l'AMPK ne représente pas simplement un marqueur biologique associé aux effets des oméga-3, mais l'un des principaux médiateurs responsables de leur activité thérapeutique.

Un rôle tout aussi important émerge dans la régulation des processus fibrotiques. Les fibroses représentent en effet une réponse pathologique dans laquelle les mécanismes normaux de réparation sont remplacés par une production excessive de tissu cicatriciel. Dans la fibrose péritonéale associée à la dialyse péritonéale, l'EPA et le DHA ont montré leur capacité à activer un axe de signalisation sophistiqué impliquant l'AMPK ; dans ce modèle, les oméga-3 ont réduit ce que l'on appelle l'hyperglycolyse, une reprogrammation métabolique qui rappelle étroitement l'effet Warburg observé dans les cellules tumorales. Par l'activation de l'AMPK, l'EPA et le DHA ont inhibé mTOR, réduit la production de lactate et limité la transformation des cellules mésothéliales en cellules fibrotiques (Zhang et al., 2024) [37]. En d'autres termes, les oméga-3 ne se sont pas limités à contrer l'inflammation, mais ont directement corrigé l'altération métabolique qui alimentait le processus pathologique.

Ces résultats sont particulièrement intéressants car ils introduisent un concept qui prend une importance croissante dans la médecine moderne : de nombreuses maladies chroniques semblent partager de profondes altérations du métabolisme cellulaire. Dans ce contexte, l'AMPK émerge comme une sorte de superviseur métabolique capable de remettre de l'ordre au sein de systèmes cellulaires dysfonctionnels. L'activation de l'AMPK par les oméga-3 a également été observée dans le contexte oncologique. Dans le carcinome pulmonaire non à petites cellules, le DHA induit une activation marquée de l'AMPK accompagnée d'une inhibition simultanée de la cascade PI3K/AKT/mTOR. Cette double action provoque une réduction de la prolifération cellulaire et favorise à la fois l'autophagie et l'apoptose.

Un aspect particulièrement significatif ressortant de cette étude est que le blocage expérimental de l'AMPK réduit drastiquement l'autophagie et la mort cellulaire induites par le DHA. Cela démontre que l'activation de cette protéine représente l'un des événements centraux par lesquels les oméga-3 exercent leurs effets antitumoraux. Dans les modèles animaux avec une production endogène élevée d'oméga-3, la croissance tumorale était en effet significativement réduite, accompagnée d'une augmentation de la phosphorylation de l'AMPK et d'une diminution de l'activité d'AKT (Kim et al., 2015) [34].

Un mécanisme analogue a été observé dans le carcinome mammaire. Dans les cellules MCF-7, le DHA induit une réponse autophagique particulièrement complexe qui implique la protéine OSGIN1, un gène associé à la réponse cellulaire au stress oxydatif. Suite à l'exposition au DHA, les cellules montrent une augmentation des niveaux d'OSGIN1, une production accrue d'espèces réactives de l'oxygène au niveau mitochondrial et une activation marquée de l'AMPK. Cette activation s'accompagne de la phosphorylation de Raptor, l'un des principaux régulateurs de mTORC1, et de la suppression conséquente de l'activité de mTOR. L'effet final est la formation d'autophagosomes (petites vésicules cellulaires qui collectent des composants endommagés ou inutiles) et l'activation de programmes cellulaires incompatibles avec la survie de la cellule tumorale. Lorsque OSGIN1 est réduit au silence, une grande partie des effets du DHA disparaît, indiquant que le rapport entre stress oxydatif contrôlé, activation de l'AMPK et inhibition de mTOR représente l'un des mécanismes fondamentaux de l'action biologique des oméga-3 (Tsai et al., 2021) [38].

L'importance de l'AMPK ne se limite toutefois pas aux tumeurs ou aux maladies métaboliques. Le système nerveux et les organes sensoriels semblent également dépendre fortement de cette protéine pour maintenir leur intégrité fonctionnelle. Dans la rétine ischémique, une condition qui caractérise de nombreuses pathologies oculaires responsables de la perte de la vue, le DHA s'est révélé capable de réactiver l'AMPK via le récepteur GPR120 ; l'activation de cette cascade a entraîné une réduction de l'expression de HIF-1α et de VEGF, deux des principaux promoteurs de l'angiogenèse pathologique rétinienne. De plus, le DHA a amélioré l'intégrité de la barrière endothéliale et réduit la formation de nouveaux vaisseaux anormaux. Lorsque l'AMPK a été génétiquement éliminée, les oméga-3 ont perdu complètement leur capacité protectrice (Dátilo et al., 2023) [39]. Ce résultat représente l'une des preuves les plus convaincantes du rôle central de l'AMPK comme médiateur des effets biologiques des oméga-3.

En observant l'ensemble de ces preuves, un tableau étonnamment cohérent émerge. Bien que les pathologies étudiées soient profondément différentes les unes des autres — sepsis, fibrose, cancer, neurodégénérescence et maladies ischémiques de la rétine — le mécanisme moléculaire qui unit les effets des oméga-3 tend à converger toujours vers le même nœud biologique : l'activation de l'AMPK.

Cette protéine apparaît en effet comme l'un des principaux interprètes intracellulaires du signal transmis par l'EPA et le DHA. Grâce à son activation, les processus prolifératifs excessifs sont inhibés, l'activité de mTOR est réduite, l'autophagie est favorisée, l'inflammation est limitée et la capacité de la cellule à s'adapter aux conditions de stress est améliorée. Dans cette perspective, l'AMPK ne représente pas seulement une cible moléculaire des oméga-3, mais l'un des principaux points de rencontre entre nutrition, métabolisme énergétique, longévité cellulaire et prévention des maladies chroniques.

Conclusions

Le parcours abordé dans ce chapitre nous a permis de comprendre à quel point les oméga-3 sont importants pour l'équilibre de l'organisme. L'EPA et le DHA ne sont pas seulement des composants des membranes cellulaires, ils participent également à la régulation de l'inflammation, de l'immunité et du métabolisme. Leur présence influence la communication entre les cellules et contribue au maintien des fonctions biologiques. En particulier, le rapport avec les oméga-6 joue un rôle significatif, car la disponibilité des différents acides gras conditionne la production des médiateurs impliqués dans la réponse inflammatoire.

Ces propriétés expliquent l'intérêt croissant pour la supplémentation. Les recherches ont démontré que l'EPA et le DHA sont progressivement incorporés dans les membranes du cœur, des globules rouges, des plaquettes et des cellules immunitaires. Ce processus modifie la composition lipidique des tissus et réduit, dans différents compartiments, la présence de l'acide arachidonique. Il ne s'agit donc pas d'une simple augmentation des nutriments disponibles, mais d'une transformation structurelle qui peut influencer le comportement cellulaire.

De ces modifications découlent des implications possibles pour de nombreuses pathologies. Les études ont mis en évidence des effets favorables sur certains paramètres cardiovasculaires, inflammatoires et métaboliques. D'autres recherches ont exploré le potentiel des oméga-3 dans les maladies neurodégénératives, auto-immunes, oncologiques et dermatologiques. Dans la maladie d'Alzheimer et la maladie de Parkinson, l'attention se concentre surtout sur la neuro-inflammation et la protection neuronale. En oncologie, en revanche, les résultats expérimentaux suggèrent des effets possibles sur la prolifération cellulaire. Toutefois, de nombreux bénéfices nécessitent encore des confirmations cliniques et ne peuvent être considérés comme équivalents à des traitements établis.

Un lien particulièrement important concerne l'insulinorésistance. L'EPA et le DHA peuvent contribuer à réduire l'inflammation du tissu adipeux et à améliorer certains indicateurs métaboliques. Des résultats favorables ont été observés dans le diabète gestationnel, le syndrome des ovaires polykystiques et l'obésité pédiatrique. Ces effets suggèrent un soutien possible à la sensibilité à l'insuline, bien que les preuves restent hétérogènes et dépendent des conditions étudiées.

Pour mieux comprendre ces résultats, nous avons approfondi le rôle de l'acide arachidonique. Cet oméga-6 peut activer, dans des modèles expérimentaux spécifiques, une voie de signalisation importante PI3K/AKT/mTOR. Son remplacement progressif dans les membranes par l'EPA et le DHA pourrait donc modifier la disponibilité des signaux impliqués dans l'inflammation et la croissance cellulaire.

De là émerge le rapport avec mTOR, une protéine fondamentale pour la régulation de la synthèse protéique et de la prolifération. Plusieurs études expérimentales ont montré que les oméga-3 peuvent en limiter l'activation, favorisant dans certaines conditions l'autophagie et le maintien de l'équilibre cellulaire.

Ce mécanisme conduit enfin à l'AMPK, le principal capteur énergétique de la cellule. Les recherches ont mis en évidence que l'EPA et le DHA peuvent l'activer, contribuant ainsi à la régulation de mTOR, de l'inflammation et des processus métaboliques.

Dans l'ensemble, les oméga-3 apparaissent comme des régulateurs biologiques importants, capables d'agir sur des mécanismes partagés par de nombreuses conditions pathologiques. Leur valeur réside surtout dans leur capacité à soutenir l'équilibre cellulaire. Garantir un apport alimentaire adéquat en EPA et en DHA représente donc un choix nutritionnel concret, à intégrer dans un mode de vie équilibré. La supplémentation, lorsqu'elle est nécessaire, doit en revanche être évaluée en tenant compte des conditions individuelles et des preuves disponibles.

Références

[1] New Insights into the Health Potential of ω-3 Polyunsaturated Fatty Acids

Lakshimi e Kavitha, 2023

Current Nutrition Reports, 2023;12(4):813-829.

[2] Modulation of Inflammation and Immunity by Omega-3 Fatty Acids: A Possible Role in the Prevention and Arresting of Autoimmune, Viral and Age-Related Diseases

Poggioli et al., 2023

European Review for Medical and Pharmacological Sciences, 2023;27(15):7380-7400.

[3] Omega-3 Fatty Acids and Neuroinflammation in Depression: Targeting Damage-Associated Molecular Patterns and Neural Biomarkers

Malau et al., 2024

Cells, 2024;13(21):1791.

[4] Long Chain Omega-3 Polyunsaturated Fatty Acids: Are They Beneficial for Physical and Cognitive Function in the Elderly?

Erhardt et al., 2021

Journal of Nutrition Health and Aging, 2021;25(4):454-461.

[5] Dietary Fish Intake and Omega-3 Polyunsaturated Fatty Acids and Cancer Survival: A Systematic Review and Meta-Analysis

Wang et al., 2023

Critical Reviews in Food Science and Nutrition, 2023;63(23):6235-6251.

[6] Effects of Fish-Oil Supplementation on Myocardial Fatty Acids in Humans

Metcalf et al., 2007

American Journal of Clinical Nutrition, 2007;85(5):1222-1228.

[7] The Pattern of Fatty Acids Displaced by EPA and DHA Following 12 Months Supplementation Varies Between Blood Cell and Plasma Fractions

Walker et al., 2015

Nutrients, 2015;7(8):6281-6293.

[8] Moderate Fish-Oil Supplementation Reverses Low Platelet Long-Chain n-3 Polyunsaturated Fatty Acid Status and Reduces Plasma Triacylglycerol Concentrations in British Indo-Asians

Lovegrove et al., 2004

American Journal of Clinical Nutrition, 2004;79(6):974-982.

[9] Effect of Omega-3 Fatty Acids and Fish Oil Supplementation on Multiple Sclerosis: A Systematic Review

AlAmmar et al., 2021

Nutritional Neuroscience, 2021;24(7):569-579.

[10] The Effects of Omega-3, DHA, EPA, Souvenaid® in Alzheimer's Disease: A Systematic Review and Meta-Analysis

Calderon Martinez et al., 2024

Neuropsychopharmacology Reports, 2024; 44(3):545-556.

[11] Omega-3 Fatty Acids as Druggable Therapeutics for Neurodegenerative Disorders

Chitre et al., 2019

CNS & Neurological Disorders - Drug Targets, 2019;18(10):735-749.

[12] Potential Treatment of Parkinson's Disease with Omega-3 Polyunsaturated Fatty Acids

Li e Song, 2022

Nutritional Neuroscience, 2022;25(1):180-191.

[13] Omega-3 Polyunsaturated Fatty Acids: Vascular and Cardiac Effects on the Cellular and Molecular Level (Narrative Review)

Drenjančević e Pitha, 2022

International Journal of Molecular Sciences, 2022;23(4):2104.

[14] Understanding the Role of Polyunsaturated Fatty Acids in Cancer Development and Prevention

Akbar et al., 2024

Cancer Treatment and Research, 2024;191:57-93.

[15] Exploring the Potential of Omega-3 Fatty Acids in Patients with Acne: A Prospective Intervention Study

Guertler et al., 2024

Journal of Cosmetic Dermatology, 2024;23(10):3295-3304.

[16] Beneficial Effects of Long-Chain n-3 Fatty Acids on Insulin Resistance: Basic and Clinical Aspects

Delarue, 2025

Biochimie, 2025;239(Pt A):30-40.

[17] Effects of Omega-3 Supplementation on Glucose and Lipid Metabolism in Patients with Gestational Diabetes: A Meta-Analysis of Randomized Controlled Trials

Liu et al., 2023

Journal of Diabetes and its Complications, 2023;37(4):108451.

[18] Efficacy of Omega-3 Fatty Acid Supplementation on Cardiovascular Risk Factors in Patients with Polycystic Ovary Syndrome: A Systematic Review and Meta-Analysis

Xia et al., 2021

Annals of Palliative Medicine, 2021;10(6):6425-6437.

[19] Omega-3 supplementation in the treatment of polycystic ovary syndrome (PCOS) - a review of clinical trials and cohort

Melo et al., 2022

Endocrine Regulations, 2022;56(1):66-79.

[20] Omega-3 Polyunsaturated Fatty Acids Reduce Insulin Resistance and Triglycerides in Obese Children and Adolescents

Juárez-López et al., 2013

Pediatric Diabetes, 2013;14(5):377-383.

[21] Omega-3 Supplementation and Diabetes: A Systematic Review and Meta-Analysis

Delpino et al., 2022

Critical Reviews in Food Science and Nutrition, 2022;62(16):4435-4448.

[22] Activation of the Phosphatidylinositol 3-Kinase-AKT/Protein Kinase B Signalling Pathway by Arachidonic Acid in Human Myeloid and Endothelial Cells: Involvement of the ErbB Receptor Family

Hii et al., 2001

Journal of Biological Chemistry, 2001;276(29):27246-27255.

[23] Arachidonic Acid Activation of Translation Initiation Signalling in Vascular Smooth Muscle Cells

Neeli et al., 2003

Biochemical and Biophysical Research Communications, 2003;309(4):755-761.

[24] Arachidonic Acid Activates Phosphatidylinositol 3-Kinase Signaling and Induces Gene Expression in Prostate Cancer

Hughes-Fulford et al., 2006

Cancer Research, 2006;66(3):1427-1433.

[25] Arachidonic Acid Promotes Migration and Invasion Through a PI3K/AKT-Dependent Pathway in MDA-MB-231 Breast Cancer Cells

Villegas-Comonfort et al., 2014

Prostaglandins, Leukotrienes and Essential Fatty Acids, 2014;90(5):169-177.

[26] Critical Role of Arachidonic Acid-Activated mTOR Signaling in Breast Carcinogenesis and Angiogenesis

Wen et al., 2013

Oncogene, 2013;32(2):160-170.

[27] Effects of Dietary Fish Oil Supplementation on the Fatty Acid Composition of Human Platelet Membrane Phospholipids: Demonstration of Selective Incorporation of Eicosapentaenoic Acid into Membrane Phospholipid Pools

Galloway et al., 1985

Clinical Science, 1985;68(4):449-454.

[28] Incorporation of n-3 Fatty Acids into Plasma Lipid Fractions, and Erythrocyte membranes and platelets During Dietary Supplementation with Fish, Fish Oil and Docosahexaenoic Acid-Rich Oil Among Healthy Young Men

Vidgren et al., 1997

Lipids, 1997;32:697-705.

[29] Changes of Erythrocyte Fatty Acids after Supplementation with Highly Concentrated Docosahexaenoic Acid (DHA) in Pediatric Cystic Fibrosis: A Randomized Double-Blind Controlled Trial

Ayats-Vidal et al., 2023

Journal of Clinical Medicine, 2023;12(11):3704.

[30] Intravenous n-3 Fatty Acid Supplementation and n-3 Fatty Acid Status and Outcome in Critically Ill Elderly Patients Receiving Enteral Nutrition

Barros et al., 2013

Clinical Nutrition, 2013;32(4):599-605.

[31] Omega-3 Polyunsaturated Fatty Acids Improve Cognitive Function in Heat-Stressed Mice by Enhancing Autophagy Through Inhibition of PI3K-AKT-mTOR Pathway Phosphorylation

Ren et al., 2025

Food & Function, 2025;16(5):1931-1946.

[32] Omega-3 Polyunsaturated Fatty Acids Attenuate MNU-Induced Colorectal Cancer in Rats by Blocking PI3K/AKT/Bcl-2 Signaling

Huang et al., 2020

OncoTargets and Therapy, 2020;13:1953-1965.

[33] Endogenous Production of n-3 Polyunsaturated Fatty Acids Protects Mice from Carbon Tetrachloride-Induced Liver Fibrosis by Regulating mTOR and Bcl-2/Bax Signaling Pathways

Shan et al., 2021

Experimental Physiology, 2021;106(4):983-993.

[34] Docosahexaenoic Acid Induces Cell Death in Human Non-Small Cell Lung Cancer Cells by Repressing mTOR via AMPK Activation and PI3K/AKT Inhibition

Kim et al., 2015

BioMed Research International, 2015;2015:239764.

[35] Elevation of n-3/n-6 PUFAs ratio Suppresses mTORC1 and Prevents Colorectal Carcinogenesis Associated with APC Mutation

Liu et al., 2016

Oncotarget, 2016;7(47):76944-76954.

[36] Protective Effect of Omega-3 Polyunsaturated Fatty Acids on Sepsis via the AMPK/mTOR Pathway

Liu et al., 2023

Pharmaceutical Biology, 2023;61(1):306-315.

[37] Omega-3 Polyunsaturated Fatty Acids Protect Peritoneal Mesothelial Cells from Hyperglycolysis and Mesothelial-to-Mesenchymal Transition Through the FFAR4/CaMKKβ/AMPK/mTOR Signaling Pathway

Zhang et al., 2024

International Immunopharmacology, 2024;128:111561.

[38] Docosahexaenoic acid promotes the formation of autophagosomes in MCF-7 breast cancer cells through oxidative stress-induced growth inhibitor 1 mediated activation of AMPK/mTOR pathway

Tsai et al., 2021

Food and Chemical Toxicology, 2021;154:112318.

[39] Omega-3 Polyunsaturated Fatty Acids Activate AMP Kinase and Protect the Retina from Ischemic Injury: An In Vitro and In Vivo Study

Dátilo et al., 2023

Experimental Eye Research, 2023;226:109345.