
Scientific Book

Omega 3 y composición de las membranas celulares

Los ácidos grasos Omega-3, en particular el EPA y el DHA, desempeñan funciones importantes en la estructura de las membranas celulares y en la regulación de los procesos inflamatorios. La investigación estudia sus efectos en el metabolismo lipídico, la salud cardiovascular, la inmunidad y la función cerebral, con beneficios que dependen del contexto clínico. En el libro «La scelta di Vivere in Salute o in Malattia» (La elección de vivir con salud o con enfermedad), el Dr. A. Colonnese y R. Panzironi profundizan en los mecanismos biológicos de los Omega-3 y en la evidencia relativa a su suplementación.

Citar este artículo
Colonnese, A. & Panzironi, R. (2026). Omega 3 y composición de las membranas celulares. La elección de vivir en salud o en enfermedad. https://lifesciencehub.info/es/la-scelta-di-vivere-in-salute-o-in-malattia/omega-3-y-composicion-de-las-membranas-celulares
La elección de vivir en salud o en enfermedad · ISBN 979-12-82692-05-2

DOI lsh.es.libro.27

  • Publicación 05/11/2026
  • Actualización 05/11/2026
  • OMEGA-3
  • EPA
  • DHA
  • ÁCIDO ARAQUIDÓNICO
  • PI3K/AKT/MTOR
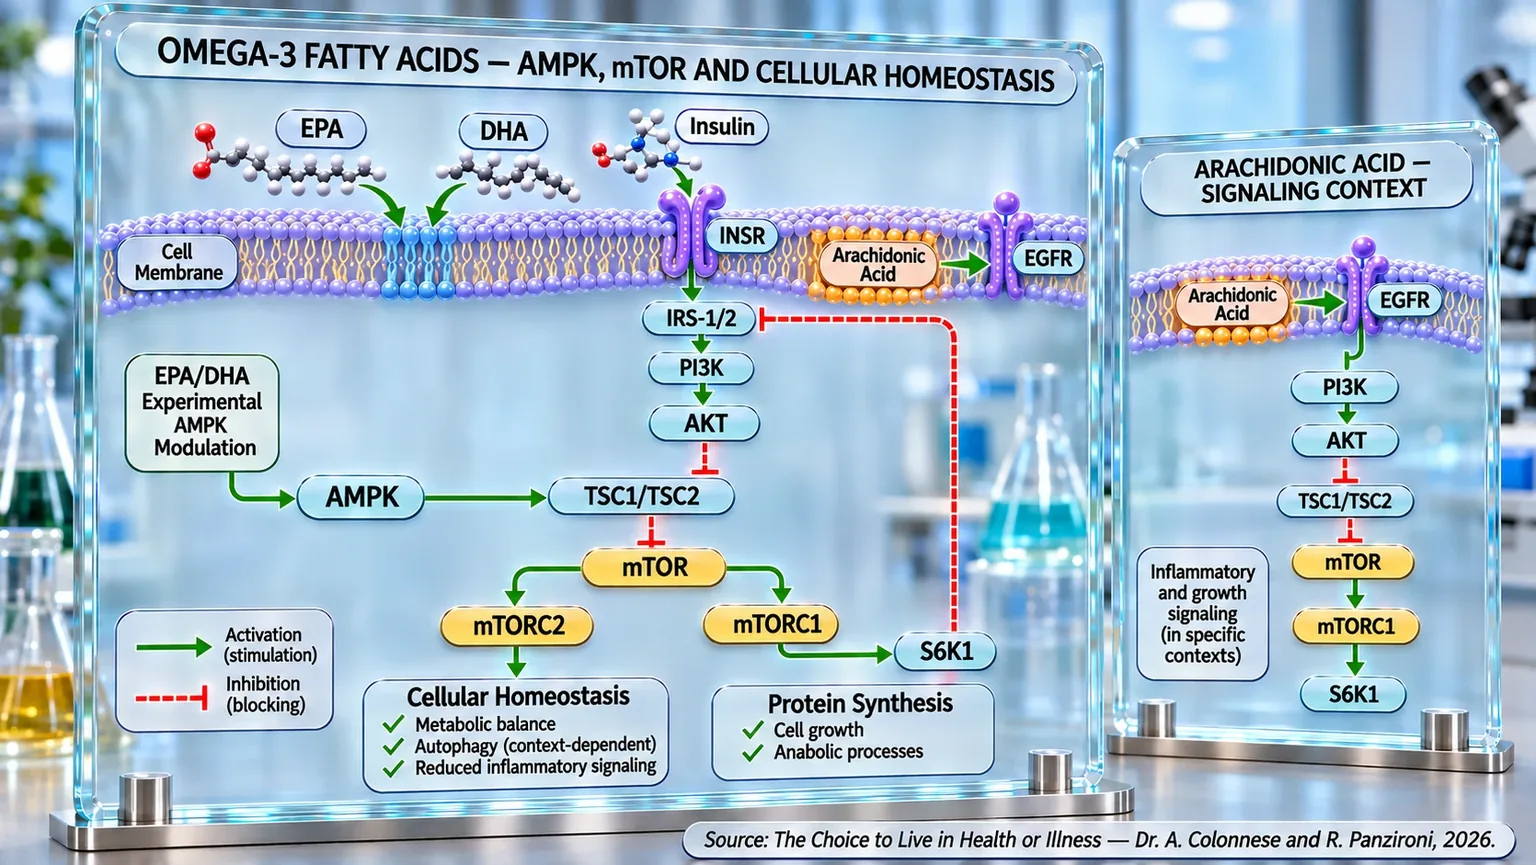
Infografía molecular con bicapa fosfolipídica, receptores INSR y EGFR y flechas verdes o rojas hacia complejos metabólicos intracelulares.
Esquema de las interacciones entre membrana celular, EPA, DHA, insulina y ácido araquidónico: las vías INSR–IRS-1/2–PI3K–AKT y EGFR–PI3K–AKT convergen en TSC1/TSC2–mTOR, mTORC1, mTORC2 y S6K1. La modulación experimental de AMPK por parte del EPA/DHA está vinculada a la homeostasis celular, la síntesis proteica y las señales inflamatorias.

ABSTRACT

Los ácidos grasos omega-3, principalmente EPA y DHA, contribuyen a la estructura de las membranas celulares y a la regulación de las respuestas inflamatorias, inmunitarias y metabólicas. En el libro "La scelta di Vivere in Salute o in Malattia", el Dr. A. Colonnese y R. Panzironi examinan la relación entre la disponibilidad de omega-3 y omega-6, la composición lipídica de los tejidos y los mecanismos de señalización celular, distinguiendo las adaptaciones biológicas de los beneficios clínicos aún por confirmar.

La ingesta de EPA y DHA favorece su incorporación progresiva en las membranas de los cardiomiocitos, eritrocitos, plaquetas y células inmunitarias, modificando su composición y reduciendo la proporción de ácido araquidónico en algunos compartimentos. Esta variación puede influir en la producción de mediadores inflamatorios. En modelos experimentales específicos, el ácido araquidónico interviene en la activación de PI3K/AKT/mTOR, mientras que el EPA y el DHA pueden modular dicha señalización, limitar la actividad de mTOR y favorecer la autofagia. La activación de AMPK constituye otro posible vínculo con el metabolismo energético y el control de la inflamación.

Los estudios reportan mejoras en algunos indicadores cardiovasculares, inflamatorios y metabólicos. Se han observado resultados favorables relacionados con la sensibilidad a la insulina en la diabetes gestacional, el síndrome de ovario poliquístico y la obesidad pediátrica, aunque con evidencias heterogéneas. El interés por el alzhéimer y el párkinson se centra sobre todo en la neuroinflamación y la protección neuronal; en las enfermedades autoinmunes y dermatológicas se están explorando otras implicaciones. En oncología, los efectos sobre la proliferación derivan principalmente de observaciones experimentales y no demuestran eficacia terapéutica en humanos.

En conjunto, los omega-3 participan en procesos celulares interconectados a través de modificaciones de las membranas y la regulación de vías metabólicas. Un aporte dietético adecuado de EPA y DHA puede formar parte de un estilo de vida equilibrado, mientras que una posible suplementación requiere una evaluación individual. Sigue siendo esencial distinguir los mecanismos observados en modelos experimentales de los resultados clínicos, evitando equiparar la modulación de AMPK y mTOR con la prevención o el tratamiento demostrado de las patologías en las diversas poblaciones y condiciones metabólicas estudiadas hasta la fecha.

Sus propiedades

Los ácidos grasos Omega-3 pertenecen a la familia de los ácidos grasos poliinsaturados esenciales, nutrientes que el organismo humano no es capaz de sintetizar por sí mismo y que, por tanto, deben obtenerse a través de la alimentación. Entre ellos, el ácido eicosapentaenoico (EPA) y el ácido docosahexaenoico (DHA) representan las formas biológicamente más activas y más estudiadas. Aunque durante muchos años los Omega-3 se asociaron casi exclusivamente a la salud cardiovascular, la investigación moderna ha ampliado progresivamente esta visión, demostrando cómo estos lípidos participan en la regulación de la inflamación, la inmunidad, la función neuronal, el metabolismo energético e incluso en los procesos implicados en el envejecimiento y la progresión de numerosas patologías crónicas. Hoy en día, los Omega-3 se consideran verdaderos reguladores biológicos, capaces de influir en el comportamiento de las células a través de mecanismos que van mucho más allá del simple papel estructural en las membranas celulares.

Para comprender la importancia de los Omega-3 es útil imaginar la membrana celular como una ciudad rodeada de murallas. Estas murallas no representan una barrera pasiva, sino un sistema dinámico que regula continuamente la entrada y salida de señales, nutrientes e información. El EPA y el DHA se incorporan a las membranas celulares, modificando su fluidez, su funcionalidad y su capacidad de respuesta a los estímulos ambientales. Esta característica permite a los Omega-3 influir en numerosos procesos biológicos, incluida la producción de moléculas implicadas en la respuesta inflamatoria (Lakshimi y Kavitha, 2023) [1].

Uno de los aspectos más relevantes surgidos de la literatura se refiere a la relación entre Omega-3 y Omega-6. Ambas familias de ácidos grasos son indispensables para la salud, pero deben estar presentes en un equilibrio adecuado. A lo largo de la evolución humana, la relación entre Omega-6 y Omega-3 era probablemente cercana a 1:1. Con la llegada de la alimentación moderna, caracterizada por un amplio uso de aceites vegetales refinados y una reducción del consumo de pescado, este equilibrio se ha alterado progresivamente, alcanzando en muchas poblaciones occidentales valores superiores a 15:1 o incluso 20:1. Tal desequilibrio favorece la producción de mediadores lipídicos proinflamatorios y contribuye al desarrollo de un estado de inflamación crónica de bajo grado, una condición que hoy se considera uno de los principales factores subyacentes a las enfermedades crónicas modernas (Poggioli et al., 2023) [2]; (Lakshimi y Kavitha, 2023) [1].

Desde el punto de vista fisiológico, el EPA y el DHA actúan como antagonistas naturales de numerosos mecanismos inflamatorios. Cuando una célula se somete a estrés o daño, las membranas liberan ácidos grasos que posteriormente se transforman en moléculas señal. Si predominan los Omega-6, la respuesta tiende a ser más inflamatoria; si, por el contrario, hay cantidades adecuadas de Omega-3, se producen mediadores especializados que favorecen la resolución de la inflamación. Esto no significa suprimir el sistema inmunitario, sino guiarlo hacia una conclusión ordenada y eficiente de la respuesta inflamatoria (Poggioli et al., 2023) [2]; (Lakshimi y Kavitha, 2023) [1].

La acción inmunomoduladora de los Omega-3 representa uno de los ámbitos de investigación más prometedores. El EPA y el DHA son capaces de reducir la activación de las células inmunitarias y de limitar la liberación de citoquinas proinflamatorias, moléculas que, si se producen en exceso, pueden contribuir al daño tisular. Este efecto ha llevado a numerosos investigadores a estudiar su posible papel en las enfermedades autoinmunes, condiciones en las que el sistema inmunitario pierde la capacidad de distinguir correctamente entre lo que pertenece al organismo y lo que es extraño. Diversos estudios han observado una reducción de la actividad de la enfermedad en patologías como la artritis reumatoide, el lupus eritematoso sistémico, la esclerosis múltiple y la diabetes tipo 1 en sujetos que consumían cantidades adecuadas de Omega-3 (Poggioli et al., 2023) [2].

Sin embargo, los efectos de los Omega-3 no se limitan al sistema inmunitario periférico. Una cantidad particularmente elevada de DHA está presente en el cerebro, donde contribuye a la estructura de las membranas neuronales y a la transmisión de las señales nerviosas. En los últimos años ha surgido con creciente evidencia la hipótesis de que muchas enfermedades neurológicas y psiquiátricas comparten un denominador común: la neuroinflamación crónica. En esta condición, las células normalmente encargadas de la protección del sistema nervioso, como la microglía y los astrocitos, permanecen persistentemente activadas, produciendo sustancias inflamatorias que comprometen la función neuronal. En el trastorno depresivo mayor, por ejemplo, se han observado aumentos de biomarcadores asociados al daño neuronal y a la activación inmunitaria cerebral. Los Omega-3 parecen contrarrestar estos procesos mediante la reducción de la activación microglial (la respuesta de las células de defensa del cerebro, llamadas microglía, ante infecciones, daños u otras amenazas), la disminución de la producción de citoquinas inflamatorias y la modulación de biomarcadores específicos del daño neuronal (Malau et al., 2024) [3].

Estas observaciones ayudan a comprender por qué numerosos estudios han asociado niveles adecuados de Omega-3 con una mejor salud mental y cognitiva. El cerebro puede compararse con una red eléctrica extremadamente compleja: para que la comunicación entre las células nerviosas ocurra correctamente, las membranas neuronales deben mantener una estructura flexible y funcional. El EPA y el DHA contribuyen a preservar esta característica, favoreciendo la plasticidad sináptica y la resiliencia neuronal frente a los estímulos dañinos (Malau et al., 2024) [3].

La importancia de los Omega-3 emerge con particular evidencia durante el envejecimiento. Con el paso de los años aumenta el riesgo de deterioro cognitivo, reducción de la movilidad y pérdida de autonomía. En una población de ancianos con trastornos subjetivos de la memoria, un mayor consumo alimentario de EPA y DHA resultó asociado a un mejor rendimiento cognitivo global, mayor atención, mejor velocidad psicomotora y mejores parámetros de movilidad física. En particular, el EPA mostró asociaciones favorables con la velocidad de la marcha y otras medidas de la funcionalidad motora, lo que sugiere que el mantenimiento de un aporte adecuado de Omega-3 puede contribuir a preservar no solo las capacidades mentales, sino también las físicas durante el envejecimiento (Erhardt et al., 2021) [4].

El metabolismo también resulta fuertemente influenciado por la disponibilidad de Omega-3. Las evidencias científicas indican que estos ácidos grasos pueden mejorar la sensibilidad a la insulina, reducir la inflamación sistémica y preservar la función endotelial. Además, diversos estudios sugieren un papel potencial en la ralentización de la progresión de complicaciones diabéticas como la retinopatía, la nefropatía y la proteinuria, condiciones estrechamente asociadas al daño vascular crónico provocado por la hiperglucemia (Lakshimi y Kavitha, 2023) [1].

El aparato cardiovascular representa probablemente uno de los ámbitos más estudiados. Los Omega-3 contribuyen a la reducción de los triglicéridos plasmáticos, mejoran la función endotelial y modulan favorablemente los procesos inflamatorios implicados en la aterosclerosis. En otras palabras, parecen actuar tanto sobre la calidad de la sangre que circula por los vasos como sobre la salud de las propias paredes vasculares. Este doble efecto contribuye a explicar su consolidado papel en la prevención cardiovascular (Lakshimi y Kavitha, 2023) [1]; (Poggioli et al., 2023) [2].

El interés hacia los Omega-3 se ha extendido también al ámbito oncológico. Un metaanálisis que incluyó veintiún estudios de cohortes observó que un elevado consumo de pescado y de Omega-3 marinos estaba asociado a una mejor supervivencia en pacientes afectados por cáncer. Los beneficios resultaron particularmente evidentes en algunas neoplasias, entre ellas el carcinoma de próstata y el carcinoma de ovario. Aunque los mecanismos aún no están completamente aclarados, los autores plantean la hipótesis de que la reducción de la inflamación sistémica, la modulación de la respuesta inmunitaria y la inhibición de procesos implicados en el crecimiento tumoral pueden contribuir a tales efectos (Wang et al., 2023) [5].

Las propiedades inmunomoduladoras de los Omega-3 han atraído la atención también en el contexto de las infecciones virales. Estudios recientes sugieren que el EPA y el DHA pueden contribuir a modular la respuesta inflamatoria sistémica durante las infecciones, reduciendo el riesgo de que la propia respuesta inmunitaria se vuelva excesivamente agresiva. En el caso de la COVID-19, algunos trabajos han reportado mejoras en los parámetros respiratorios y en los resultados clínicos en sujetos que tomaban Omega-3, aunque son necesarios más estudios para confirmar definitivamente estos resultados (Poggioli et al., 2023) [2]; (Lakshimi y Kavitha, 2023) [1].

En su conjunto, las evidencias disponibles delinean un cuadro coherente. Los Omega-3 no son simplemente nutrientes energéticos o componentes estructurales de las membranas celulares, sino verdaderos reguladores de la comunicación biológica. A través de la modulación de la inflamación, la inmunidad, la función neuronal y el metabolismo, el EPA y el DHA participan en procesos fundamentales para el mantenimiento de la homeostasis. Además, la creciente prevalencia de enfermedades crónicas asociadas a la inflamación hace particularmente relevante la recuperación de un equilibrio adecuado entre Omega-6 y Omega-3, un objetivo que hoy parece no solo nutricional, sino profundamente fisiológico. Las investigaciones más recientes sugieren que el mantenimiento de dicho equilibrio puede representar una de las herramientas más eficaces para apoyar la salud a lo largo de toda la vida, desde la función cerebral hasta la salud cardiovascular, desde la regulación inmunitaria hasta el envejecimiento saludable.

La suplementación

Si el primer paso para comprender los Omega-3 consiste en conocer su fisiología, el siguiente paso es entender qué sucede cuando estos nutrientes se introducen en cantidades superiores a las que habitualmente están presentes en la dieta. La suplementación representa, de hecho, una herramienta particularmente interesante porque permite observar, en tiempos relativamente breves, cómo el EPA y el DHA se incorporan a los tejidos y cómo dicha incorporación puede traducirse en modificaciones biológicas medibles.

Durante muchos años se supuso que los efectos de los Omega-3 eran el resultado de mecanismos indirectos y lentos. Sin embargo, las investigaciones más recientes han demostrado que el EPA y el DHA pueden incorporarse a los tejidos humanos con una rapidez sorprendente. Un estudio realizado en pacientes sometidos a cirugía cardíaca mostró que la suplementación con aceite de pescado determina una acumulación progresiva de EPA y DHA en los fosfolípidos del tejido miocárdico, con niveles cercanos al máximo alcanzados ya después de unos treinta días de tratamiento (Metcalf et al., 2007) [6]. Este dato es particularmente importante porque demuestra que el corazón no está simplemente expuesto a los Omega-3 que circulan en la sangre, sino que los integra directamente en su propia estructura celular.

El aspecto quizás más interesante que surgió de esta investigación se refiere al fenómeno de la sustitución lipídica. El aumento de EPA y DHA en las membranas cardíacas ocurre, de hecho, a expensas del ácido araquidónico, uno de los ácidos grasos Omega-6 más involucrados en la síntesis de mediadores proinflamatorios y proarrítmicos. Es como si, dentro de la membrana celular, nuevos protagonistas tomaran gradualmente el lugar de los anteriores, modificando el tipo de mensajes que la célula será capaz de producir en respuesta a los estímulos ambientales (Metcalf et al., 2007) [6].

Esta dinámica no afecta exclusivamente al corazón. Estudios de suplementación a largo plazo han demostrado que el EPA y el DHA se incorporan progresivamente en los principales compartimentos lipídicos del organismo, incluidos el plasma, los glóbulos rojos, las plaquetas y las células inmunitarias. Después de doce meses de suplementación, el aumento de los Omega-3 resultó acompañado de una reducción dependiente de la dosis de la relación Omega-6/Omega-3 en todos los compartimentos analizados, con reducciones que en los grupos de mayor ingesta alcanzaron aproximadamente el 50% (Walker et al., 2015) [7].

También en este caso, el cambio no se limita a una simple adición cuantitativa de nuevos ácidos grasos. El incremento de EPA y DHA determina una verdadera reorganización de las membranas celulares. En los glóbulos rojos y en las plaquetas se observa una sustitución de diversos PUFA Omega-6, incluidos el ácido araquidónico, el ácido adrénico y el ácido dihomo-gamma-linolénico, mientras que en las células inmunitarias las modificaciones involucran incluso ácidos grasos saturados y monoinsaturados (Walker et al., 2015) [7]. Estas adaptaciones parecen destinadas a preservar la fluidez y la funcionalidad de las membranas celulares, influyendo en procesos tales como la comunicación intracelular, la respuesta inmunitaria y la regulación de la inflamación.

La relevancia clínica de tales modificaciones emerge claramente al observar los efectos de la suplementación en sujetos con elevado riesgo cardiovascular. En un estudio aleatorizado realizado en individuos indoasiáticos residentes en el Reino Unido, una población caracterizada por un riesgo particularmente elevado de enfermedad coronaria, doce semanas de suplementación con aceite de pescado determinaron una reducción significativa de los triglicéridos plasmáticos, una disminución de la apolipoproteína B-48 (una proteína producida en el intestino, esencial para formar los quilomicrones), un aumento de las HDL y un marcado crecimiento de los niveles plaquetarios de EPA y DHA. Paralelamente, se observó una reducción del ácido araquidónico en los fosfolípidos plaquetarios, sugiriendo una vez más que los efectos de los Omega-3 están estrechamente vinculados a su capacidad para modificar la composición lipídica de las membranas (Lovegrove et al., 2004) [8].

Estos resultados ayudan a comprender un concepto fundamental: la suplementación con Omega-3 no actúa como un fármaco que activa un único receptor o una vía metabólica específica. Más bien, modifica progresivamente el entorno biológico dentro del cual operan las células. Es un proceso que podríamos comparar con la sustitución gradual de los materiales de construcción de una casa. La estructura externa puede parecer idéntica, pero sus características funcionales cambian profundamente.

Los efectos de esta reorganización lipídica resultan particularmente evidentes en las patologías caracterizadas por una fuerte componente inflamatoria e inmunitaria. La esclerosis múltiple representa un ejemplo emblemático. Esta enfermedad autoinmune del sistema nervioso central se caracteriza por inflamación crónica, desmielinización y daño neuronal progresivo. Una revisión sistemática de los estudios clínicos disponibles ha destacado que la suplementación con Omega-3 y aceite de pescado está asociada a una reducción significativa de los marcadores inflamatorios, a una mejora de la actividad de la glutatión reductasa (enzima que ayuda a proteger las células de los daños oxidativos), a una disminución de la tasa de recidivas clínicas y a una mejora de la calidad de vida de los pacientes (AlAmmar et al., 2021) [9].

Aunque los resultados de los estudios no son completamente uniformes, el cuadro general sugiere que el EPA y el DHA pueden contribuir a reequilibrar la respuesta inmunitaria que caracteriza la enfermedad, reduciendo la producción de mediadores inflamatorios y favoreciendo un entorno biológico menos agresivo frente al tejido nervioso.

También en el ámbito de las enfermedades neurodegenerativas, el interés hacia la suplementación con Omega-3 ha crecido notablemente. La enfermedad de Alzheimer representa uno de los principales desafíos sanitarios de nuestro tiempo y numerosos estudios han intentado evaluar si el EPA y el DHA pueden ralentizar la progresión del deterioro cognitivo. Una reciente revisión sistemática con metaanálisis, que incluye a casi tres mil participantes, observó que más de la mitad de los estudios incluidos reportaban una mejora o una estabilización de las funciones cognitivas en los sujetos tratados con Omega-3, DHA, EPA o formulaciones nutricionales enriquecidas como Souvenaid® (un alimento para fines médicos especiales, formulado para apoyar la memoria en las personas con enfermedad de Alzheimer en fase inicial).

El análisis destacó una reducción significativa de la progresión del deterioro cognitivo evaluada a través de la escala Clinical Dementia Rating, sugiriendo que los Omega-3 pueden contribuir a preservar durante más tiempo algunas funciones cognitivas en los sujetos afectados por Alzheimer. Aunque no todas las escalas cognitivas mostraron diferencias estadísticamente significativas, el dato asume particular relevancia considerando que la enfermedad se caracteriza por un deterioro neuronal progresivo y que, hasta la fecha, las opciones terapéuticas disponibles siguen siendo limitadas (Calderon Martinez et al., 2024) [10].

En su conjunto, estos estudios permiten comprender cómo la suplementación con Omega-3 no representa simplemente un aumento de la ingesta de un nutriente. El EPA y el DHA se incorporan a los tejidos, modifican la composición de las membranas celulares, reducen progresivamente la presencia de ácidos grasos proinflamatorios e influyen en numerosos procesos biológicos que van desde la función cardiovascular hasta la regulación inmunitaria, pasando por la salud neurológica. Las evidencias disponibles sugieren que gran parte de los beneficios observados en las diversas patologías puede derivar precisamente de esta capacidad de remodelar lentamente la arquitectura lipídica del organismo, creando un entorno biológico más favorable para la resiliencia celular y el mantenimiento de la homeostasis.

Las patologías tratadas

Tras comprender cómo se incorporan los Omega-3 en los tejidos y cómo la suplementación es capaz de modificar profundamente la composición de las membranas celulares, es natural preguntarse cuáles son las principales patologías en las que estos cambios biológicos pueden traducirse en beneficios clínicos concretos. La respuesta es sorprendentemente amplia. En las últimas décadas, el EPA y el DHA han sido estudiados en numerosos contextos patológicos, a menudo muy diferentes entre sí, pero que comparten la presencia de algunos mecanismos fundamentales: inflamación crónica, estrés oxidativo, alteraciones de las membranas celulares y disfunciones de los sistemas de señalización intracelular.

Uno de los ámbitos que ha atraído mayor interés es el de las enfermedades neurodegenerativas. Patologías como la enfermedad de Alzheimer y la enfermedad de Parkinson comparten numerosos procesos patológicos, entre ellos la neuroinflamación persistente, la acumulación de proteínas anómalas, la disfunción mitocondrial, el daño oxidativo y la pérdida neuronal progresiva. En este escenario, los Omega-3 han suscitado una atención particular porque poseen una característica rara: la capacidad de actuar simultáneamente sobre múltiples mecanismos implicados en la enfermedad (Chitre et al., 2019) [11].

Durante muchos años se creyó que los beneficios neurológicos de los Omega-3 se debían exclusivamente a su integración en las membranas neuronales. Sin embargo, las investigaciones más recientes han puesto de manifiesto un panorama mucho más complejo. De hecho, el EPA y el DHA parecen comportarse como verdaderos ligandos biológicos capaces de activar receptores celulares específicos, denominados FFAR (Free Fatty Acid Receptors), implicados en la regulación de la inflamación, el metabolismo lipídico y la señalización neuronal (Chitre et al., 2019) [11]. Este descubrimiento ha abierto la posibilidad de considerar los Omega-3 no solo como nutrientes, sino como moléculas dotadas de un potencial farmacológico directo.

En la enfermedad de Alzheimer, la principal causa de demencia en el mundo occidental, el interés hacia el EPA y el DHA deriva de su capacidad para preservar la funcionalidad neuronal y contrarrestar la neuroinflamación. Como ya se ha discutido en el párrafo anterior, numerosos estudios han observado una reducción de la progresión del deterioro cognitivo en los sujetos tratados con Omega-3 (Calderon Martinez et al., 2024) [10]. Las nuevas evidencias sugieren que tales efectos pueden ser el resultado de una combinación de acciones antiinflamatorias, antioxidantes y neuroprotectoras que actúan simultáneamente sobre los principales mecanismos implicados en la neurodegeneración (Chitre et al., 2019) [11].

La enfermedad de Parkinson también representa un ámbito particularmente prometedor. Esta patología se caracteriza por la pérdida progresiva de las neuronas dopaminérgicas de la sustancia negra (una región del cerebro que produce dopamina, una sustancia fundamental para el control de los movimientos) y por la acumulación de agregados proteicos constituidos principalmente por α-sinucleína (proteína presente sobre todo en las neuronas, donde contribuye a la comunicación entre las células nerviosas). Aunque las terapias farmacológicas actuales son capaces de mejorar temporalmente los síntomas, no logran bloquear el proceso neurodegenerativo subyacente. Los Omega-3 han sido estudiados precisamente por su capacidad para intervenir en los mecanismos que alimentan la progresión de la enfermedad (Li y Song, 2022) [12].

Las evidencias experimentales indican que el EPA y el DHA pueden reducir la activación microglial, disminuir la liberación de citoquinas proinflamatorias, mejorar la función mitocondrial, limitar la producción de especies reactivas del oxígeno y favorecer la síntesis de factores neurotróficos indispensables para la supervivencia neuronal. Además, algunos estudios sugieren que los Omega-3 pueden contribuir al mantenimiento de la proteostasis (proceso mediante el cual las células mantienen las proteínas funcionando) de la α-sinucleína, uno de los procesos centrales en la fisiopatología del Parkinson (Li y Song, 2022) [12]. Aunque son necesarios más estudios clínicos de gran envergadura, los resultados actuales indican que estos nutrientes podrían representar un apoyo importante en las estrategias terapéuticas futuras.

Un segundo gran capítulo se refiere a las enfermedades cardiovasculares. En este ámbito, los Omega-3 representan probablemente una de las categorías nutricionales más estudiadas del mundo. Sus efectos no se limitan a la reducción de los triglicéridos plasmáticos, sino que involucran numerosos niveles de la fisiología cardiovascular; desde el punto de vista metabólico, el EPA y el DHA reducen la disponibilidad de ácidos grasos libres para el hígado, limitan la producción de lipoproteínas aterógenas y protegen dichas partículas de los procesos de oxidación. En el plano vascular, por otro lado, modifican directamente la composición de las membranas celulares del endotelio, mejorando su función y favoreciendo una mejor regulación del tono vascular (Drenjančević y Pitha, 2022) [13].

Un aspecto particularmente interesante se refiere a la comparación entre el EPA y el DHA. Diversos estudios sugieren que el EPA podría poseer una capacidad superior para contrarrestar los procesos aterotrombóticos gracias a propiedades moleculares específicas que mejoran la estabilidad oxidativa de las membranas celulares. Paralelamente, los Omega-3 parecen ejercer efectos antifibróticos, antiarrítmicos y potencialmente favorables en la insuficiencia cardíaca, contribuyendo a proteger tanto la estructura como la función del miocardio (Drenjančević y Pitha, 2022) [13].

La oncología representa otro sector en el que el papel de los Omega-3 está recibiendo una atención creciente. La relación entre la inflamación crónica y el desarrollo tumoral es hoy ampliamente reconocida, y precisamente en este contexto el EPA y el DHA parecen ejercer algunas de sus acciones más interesantes. Las evidencias epidemiológicas indican que una mayor ingesta de Omega-3 está asociada a una menor incidencia de diversos tumores, entre ellos los de mama, próstata y colon-recto (Akbar et al., 2024) [14].

Los efectos observados parecen depender de múltiples mecanismos biológicos. Los Omega-3 pueden alterar la fluidez de las membranas celulares tumorales, favorecer la apoptosis de las células neoplásicas, limitar la proliferación celular, reducir la producción de mediadores inflamatorios, inhibir la angiogénesis tumoral y modular la expresión de genes implicados en la carcinogénesis (Akbar et al., 2024) [14]. En otras palabras, no actúan a través de un único objetivo, sino que interfieren simultáneamente con diversos procesos indispensables para el crecimiento y la supervivencia del tumor.

La dermatología también ofrece ejemplos interesantes de la aplicación clínica de los Omega-3. El acné vulgar, a menudo considerado exclusivamente un problema estético, es en realidad una patología inflamatoria crónica compleja en la que la activación de las vías inflamatorias desempeña un papel central. Un estudio prospectivo realizado en pacientes afectados por acné puso de manifiesto que casi todos los participantes presentaban inicialmente niveles insuficientes de EPA y DHA (Guertler et al., 2024) [15].

La asociación entre la dieta mediterránea y la suplementación con Omega-3 de origen algal determinó un aumento progresivo del índice Omega-3 eritrocitario, acompañado de una reducción significativa tanto de las lesiones inflamatorias como de las no inflamatorias. Los pacientes que alcanzaban niveles óptimos de EPA y DHA mostraban generalmente las mejoras clínicas más marcadas, lo que sugiere una estrecha relación entre el estado nutricional de los Omega-3 y el control de la inflamación cutánea (Guertler et al., 2024) [15].

Al observar estas patologías en su conjunto, emerge un elemento común. Aunque el Alzheimer, el Parkinson, la aterosclerosis, el cáncer y el acné sean condiciones profundamente diferentes desde el punto de vista clínico, comparten una serie de mecanismos biológicos fundamentales: inflamación persistente, estrés oxidativo, alteraciones de la función celular y pérdida del equilibrio homeostático. Los Omega-3 parecen ejercer sus efectos precisamente sobre estos procesos básicos, actuando como moduladores del entorno biológico en lugar de como simples correctores de un síntoma aislado.

Esta característica podría explicar por qué el EPA y el DHA siguen suscitando interés en campos de la medicina aparentemente distantes entre sí. Más que actuar como un tratamiento específico para una sola enfermedad, los Omega-3 parecen influir en aquellos mecanismos fundamentales que comparten muchas de las principales patologías crónicas de la edad moderna. Y es probablemente esta capacidad de intervenir en el origen de los procesos patológicos lo que convierte a estos nutrientes en uno de los temas más fascinantes y prometedores de la investigación biomédica contemporánea.

¿Pero pueden estas propiedades influir también en la respuesta del organismo a la insulina? Para responder, es necesario profundizar en una condición metabólica cada vez más extendida, en la que la inflamación crónica, la acumulación de grasa y las alteraciones de la señalización insulínica están estrechamente relacionadas.

Omega-3 e insulinorresistencia

Entre las alteraciones metabólicas más comunes, la resistencia a la insulina representa un ejemplo significativo de cómo la inflamación y el metabolismo pueden influirse mutuamente. Cuando las células se vuelven menos sensibles a la insulina, el organismo debe adaptarse para mantener estable la glucemia. Este proceso involucra numerosos tejidos y diversos mecanismos celulares. Los Omega-3, gracias a sus propiedades antiinflamatorias y a su capacidad para modificar las membranas celulares, podrían contribuir a mejorar dicho equilibrio.

En la base de este proceso no existe un único mecanismo, sino una red compleja en la que convergen la inflamación crónica de bajo grado, la acumulación de grasa visceral, el estrés oxidativo, la disfunción mitocondrial, la alteración de las membranas celulares y la acumulación de lípidos en el hígado y el músculo. En este contexto, los Omega-3 de cadena larga, en particular el EPA y el DHA, asumen un papel especialmente interesante porque actúan simultáneamente sobre muchas de estas alteraciones (Delarue, 2025) [16].

Las evidencias experimentales muestran de manera bastante coherente que el EPA y el DHA reducen la inflamación del tejido adiposo, limitan la infiltración macrofágica, disminuyen la producción de citoquinas proinflamatorias como el TNF-α, la IL-6 y la MCP-1, y favorecen la síntesis de mediadores pro-resolutivos especializados, entre ellos las resolvinas, protectinas y maresinas. Este paso es fundamental porque el tejido adiposo inflamado ya no representa un simple depósito energético, sino que se convierte en un órgano endocrino disfuncional capaz de interferir directamente con la señalización insulínica.

El EPA y el DHA parecen, además, mejorar la sensibilidad insulínica a través de la modulación de las membranas celulares y de las vías intracelulares involucradas en la transmisión de la señal insulínica, incluida la cascada PI3K/AKT. En paralelo, contribuyen a la mejora de la función mitocondrial, a la reducción del estrés oxidativo y a la disminución de la acumulación de triglicéridos intrahepáticos, un elemento especialmente relevante en las condiciones de esteatosis hepática metabólica (Delarue, 2025) [16].

Una de las condiciones en las que los efectos parecen más convincentes es la diabetes gestacional. En un metaanálisis de estudios clínicos aleatorizados, la suplementación con Omega-3 determinó una reducción significativa de la glucemia en ayunas, de la insulina en ayunas y del índice HOMA-IR, lo que indica una mejora de la sensibilidad insulínica en las mujeres tratadas. Paralelamente, también mejoraron diversos parámetros lipídicos, con reducción de los triglicéridos y del colesterol VLDL y aumento del colesterol HDL; el dato inflamatorio es igualmente relevante: en las pacientes con diabetes gestacional, la suplementación con Omega-3 redujo significativamente los niveles de proteína C reactiva, lo que sugiere que la mejora de la sensibilidad insulínica puede estar estrechamente vinculada a la reducción de la inflamación sistémica (Liu et al., 2023) [17].

Otro ámbito particularmente significativo es el síndrome de ovario poliquístico (SOP, un trastorno hormonal y metabólico que afecta a las mujeres en edad fértil), una condición en la que la resistencia a la insulina representa uno de los principales motores fisiopatológicos. En un metaanálisis realizado en mujeres con esta patología, la suplementación con Omega-3 redujo de forma significativa la insulina sérica, el HOMA-IR, el colesterol total, los triglicéridos, el colesterol LDL, el VLDL y la proteína C reactiva de alta sensibilidad, aumentando al mismo tiempo el colesterol HDL; estos resultados son importantes porque muestran que los Omega-3 no intervienen solo sobre un único parámetro, sino que mejoran simultáneamente el perfil insulínico, lipídico e inflamatorio (Xia et al., 2021) [18]. En una patología como el SOP, en la que la hiperinsulinemia, la inflamación y la dislipidemia se refuerzan mutuamente, una intervención capaz de actuar en múltiples niveles puede asumir un valor clínico relevante.

Una revisión dedicada a los estudios clínicos y de cohorte sobre el SOP confirma esta dirección. Los Omega-3 resultan asociados a beneficios en el metabolismo glucídico, con reducción de la resistencia a la insulina y mejora de la sensibilidad insulínica; muestran además efectos favorables sobre el perfil lipídico y, en algunos estudios, también sobre el perfil androgénico. Este punto es particularmente interesante porque la hiperinsulinemia contribuye directamente al hiperandrogenismo ovárico, creando un círculo vicioso que sostiene muchas manifestaciones clínicas del síndrome (Melo et al., 2022) [19].

El papel de los Omega-3 en la resistencia a la insulina emerge también en la edad pediátrica. En un estudio realizado en niños y adolescentes obesos con resistencia a la insulina, la suplementación con 1,8 gramos al día de Omega-3 durante doce semanas determinó una reducción significativa de la glucemia, de la insulinemia y del índice HOMA-IR. El mismo grupo mostró también una marcada reducción de los triglicéridos y una disminución significativa del IMC (Índice de Masa Corporal, un valor que relaciona el peso con la altura de una persona) (Juárez-López et al., 2013) [20].

Este dato asume un valor particular porque la obesidad infantil representa una ventana precoz de riesgo metabólico. Intervenir sobre la resistencia a la insulina ya en la edad pediátrica significa potencialmente modificar una trayectoria que, en los años sucesivos, podría conducir a diabetes de tipo 2, síndrome metabólico y enfermedad cardiovascular.

Cuando se observa la diabetes en su conjunto, las evidencias se vuelven más heterogéneas pero siguen siendo interesantes. Una revisión sistemática con metaanálisis de treinta estudios clínicos aleatorizados mostró que la suplementación con Omega-3 reduce significativamente la glucemia en ayunas y la resistencia insulínica, aunque sin producir efectos estadísticamente significativos sobre la hemoglobina glicosilada (Delpino et al., 2022) [21].

Los Omega-3 no deben interpretarse como una terapia sustitutiva de la diabetes o de la resistencia a la insulina, sino como una intervención nutricional complementaria capaz de mejorar el terreno biológico sobre el que se desarrollan estas condiciones. Pueden reducir la inflamación, mejorar el perfil lipídico, apoyar la función mitocondrial, modular la señalización insulínica y favorecer una mejor respuesta metabólica, sobre todo cuando se insertan en un contexto más amplio de alimentación correcta, actividad física, reducción de la grasa visceral y control de los factores de riesgo cardiovascular.

En su conjunto, las evidencias sugieren que los Omega-3 actúan sobre la resistencia a la insulina no a través de un único mecanismo, sino mediante una red de efectos convergentes. Al reducir la inflamación del tejido adiposo, mejorar la calidad de las membranas celulares, modular la AMPK, contener la activación excesiva de mTOR y apoyar la función mitocondrial, el EPA y el DHA contribuyen a hacer que la célula sea metabólicamente más flexible.

En esta perspectiva, la resistencia a la insulina puede verse como una célula que ha perdido elasticidad: recibe señales, pero le cuesta adaptarse. Los Omega-3 parecen contribuir a devolver una parte de esta elasticidad biológica. No imponen a la célula una dirección única, sino que la ayudan a salir de un estado inflamatorio, rígido y disfuncional, favoreciendo un entorno más propicio para la respuesta insulínica y la homeostasis metabólica.

Sin embargo, para comprender mejor estos efectos, es necesario considerar también la relación entre el EPA, el DHA y el ácido araquidónico, un Omega-6 involucrado en la producción de mediadores inflamatorios. Este equilibrio podría influir no solo en la sensibilidad insulínica, sino también en la actividad de vías fundamentales para el crecimiento celular. Entre ellas, cobra especial importancia la cascada PI3K/AKT/mTOR, ya analizada en los capítulos anteriores.

El ácido araquidónico y mTOR

Para comprender esta relación, debemos observar cómo el ácido araquidónico puede influir directamente en las señales que regulan el crecimiento, la inflamación y el metabolismo celular. Aunque es un componente fisiológico de las membranas, su actividad biológica va mucho más allá de la producción de mediadores inflamatorios. Algunas investigaciones han demostrado, de hecho, que puede activar la cascada PI3K/AKT y, a través de mecanismos diferentes, también mTOR. Estas observaciones permiten profundizar en la relación entre Omega-3 y Omega-6, destacando cómo ácidos grasos específicos pueden modular importantes procesos celulares.

Durante muchos años, el ácido araquidónico fue considerado principalmente el precursor de los eicosanoides, una vasta familia de moléculas bioactivas que incluye prostaglandinas, tromboxanos y leucotrienos. Sin embargo, las investigaciones más recientes han mostrado que su papel es mucho más amplio. El ácido araquidónico puede actuar directamente como molécula señal, activando vías intracelulares específicas independientemente de la simple producción de sus metabolitos. Uno de los primeros estudios que contribuyó a aclarar este concepto demostró que el ácido araquidónico es capaz de activar rápidamente la fosfatidilinositol-3-quinasa (PI3K), uno de los principales nodos reguladores del metabolismo y del crecimiento celular. En células endoteliales, neutrófilos y células mieloides, la exposición al ácido araquidónico determina, de hecho, un rápido aumento de la actividad de PI3K, acompañado por la posterior activación de AKT, una de las principales proteínas efectoras a favor de esta vía de señalización (Hii et al., 2001) [22].

Para comprender la importancia de este fenómeno, es útil imaginar a PI3K como el cuadro eléctrico central de una gran empresa. Cuando se activa, numerosos sistemas comienzan a funcionar simultáneamente: crecimiento celular, supervivencia, síntesis proteica, metabolismo energético y respuesta inflamatoria. El ácido araquidónico parece, por tanto, poseer la capacidad de pulsar directamente uno de los interruptores más importantes de toda la fisiología celular.

Posteriormente, se observó que esta activación no se detiene en PI3K. En las células musculares lisas vasculares, el ácido araquidónico induce una fosforilación secuencial de AKT, S6K1, 4EBP1 y eIF4E, todas moléculas pertenecientes a la cascada PI3K/AKT/mTOR que controla el inicio de la síntesis proteica (Neeli et al., 2003) [23]. En otras palabras, la presencia de ácido araquidónico señala a la célula que existen condiciones disponibles para aumentar la producción de nuevas proteínas y favorecer el crecimiento celular.

Este paso es particularmente importante porque representa uno de los principales puntos de conexión entre nutrición y crecimiento de los tejidos. mTOR, de hecho, puede considerarse una especie de sensor biológico de la abundancia. Cuando se activa, interpreta el entorno como favorable para el crecimiento y estimula una serie de procesos anabólicos. El estudio de Neeli y colaboradores demostró que el ácido araquidónico es capaz de activar directamente esta vía, aumentando significativamente la síntesis proteica celular (Neeli et al., 2003) [23].

Las implicaciones de este fenómeno se vuelven aún más evidentes en el contexto oncológico. En las células de carcinoma prostático se ha observado que el ácido araquidónico activa rápidamente la cascada PI3K/AKT, favoreciendo posteriormente la translocación nuclear del factor de transcripción NF-κB (Hughes-Fulford et al., 2006) [24]. NF-κB representa uno de los principales reguladores de la inflamación y de la proliferación celular, y controla la expresión de numerosos genes involucrados en el crecimiento tumoral.

La exposición de las células tumorales al ácido araquidónico determina, de hecho, el aumento de la expresión de moléculas proinflamatorias y proproliferativas como COX-2, IL-1β, IL-6, TNF-α, GM-CSF e ICAM-1. Aún más significativo es el hecho de que el bloqueo farmacológico de la PI3K reduzca de forma sustancial tanto la activación de estos genes como la proliferación celular misma, confirmando el papel central de la cascada PI3K/AKT como mediador de los efectos del ácido araquidónico (Hughes-Fulford et al., 2006) [24].

Un cuadro análogo emerge en el carcinoma mamario agresivo. En este contexto, el ácido araquidónico demostró ser capaz de activar AKT a través de un mecanismo dependiente de EGFR (receptor del factor de crecimiento epidérmico) y PI3K, promoviendo la migración y la invasión de las células tumorales. Estos procesos representan algunas de las características fundamentales de la progresión neoplásica, ya que permiten a las células tumorales abandonar el tumor primario y colonizar otros tejidos; el aspecto más interesante de este estudio es que el ácido araquidónico no se limita a estimular el crecimiento celular, sino que parece favorecer también la adquisición de un comportamiento biológico más agresivo. A través de la activación coordinada de PI3K, AKT, EGFR y NF-κB, las células adquieren, de hecho, una mayor capacidad de movimiento, invasión y degradación de la matriz extracelular (Villegas-Comonfort et al., 2014) [25].

El descubrimiento más importante llegó, sin embargo, algunos años después, cuando se demostró que el ácido araquidónico puede activar directamente mTOR a través de un mecanismo hasta entonces desconocido. Al analizar muestras de tumor mamario humano, los investigadores observaron una fuerte correlación entre los niveles de ácido araquidónico y la actividad tanto de mTORC1 como de mTORC2, los dos complejos que constituyen el sistema mTOR (Wen et al., 2013) [26].

Lo que hace que estos resultados sean particularmente relevantes es el hecho de que la activación de mTOR inducida por el ácido araquidónico no depende de los mecanismos clásicos normalmente involucrados en su regulación. En condiciones fisiológicas, mTOR es generalmente activado por nutrientes, insulina, factores de crecimiento y aminoácidos. En este estudio, en cambio, el ácido araquidónico demostró ser capaz de estimular directamente mTORC1 a través de una vía independiente de PI3K, de los aminoácidos y del complejo TSC2; esto significa que el ácido araquidónico posee la capacidad de eludir algunos de los principales sistemas de control fisiológico normalmente destinados a regular el crecimiento celular. En modelos animales, dicha activación se tradujo en un aumento de la angiogénesis, de la proliferación celular y de la incidencia tumoral, efectos que resultaban completamente bloqueados por la rapamicina, un potente inhibidor de mTOR (Wen et al., 2013) [26].

Estas observaciones adquieren una importancia particular si se insertan en el contexto de la dieta moderna. Como se discutió en los párrafos anteriores, la alimentación occidental se caracteriza por un marcado aumento de la ingesta de Omega-6 y por una reducción del consumo de Omega-3. Este desequilibrio modifica progresivamente la composición de las membranas celulares, aumentando la disponibilidad de ácido araquidónico en los tejidos. Considerando la capacidad del ácido araquidónico para activar PI3K, AKT, NF-κB y mTOR, resulta evidente cómo la relación entre Omega-6 y Omega-3 puede influir mucho más que en la simple inflamación.

En su conjunto, las evidencias actualmente disponibles delinean un modelo biológico coherente. El ácido araquidónico no representa solamente el precursor de mediadores inflamatorios, sino que se comporta como un verdadero regulador del crecimiento celular. A través de la activación coordinada de la vía PI3K/AKT/mTOR, es capaz de influir en la síntesis proteica, la proliferación celular, la angiogénesis y la progresión tumoral. Comprender estos mecanismos es fundamental para interpretar correctamente el papel de los Omega-3, que, al sustituir progresivamente al ácido araquidónico en las membranas celulares, pueden contribuir a reducir la intensidad de estas señales proliferativas e inflamatorias.

Omega-3 y ácido araquidónico

Si el ácido araquidónico representa uno de los principales promotores de las vías celulares implicadas en la inflamación, la proliferación y la activación de mTOR, resulta natural preguntarse cómo logran los Omega-3 ejercer sus efectos protectores. La respuesta surge claramente de las investigaciones más recientes: el EPA y el DHA no actúan simplemente añadiéndose a las membranas celulares, sino que sustituyen progresivamente al ácido araquidónico dentro de los tejidos, modificando así todo el entorno bioquímico en el que operan las células.

Para comprender este fenómeno, es útil imaginar la membrana celular como un enorme panel de control compuesto por miles de interruptores. Cada ácido graso insertado en la membrana contribuye a determinar qué señales se transmitirán y con qué intensidad. Cuando prevalece el ácido araquidónico, la célula dispone de una mayor reserva de sustratos para la producción de mediadores proinflamatorios y para la activación de vías implicadas en el crecimiento celular. Cuando, por el contrario, el EPA y el DHA ocupan su lugar, la naturaleza misma de las señales celulares cambia.

Las primeras evidencias de este fenómeno surgieron ya en los años ochenta. Un estudio realizado en sujetos sanos demostró que pocas semanas de suplementación con EPA determinan una incorporación significativa de este Omega-3 en los fosfolípidos de las membranas plaquetarias, acompañada de una reducción paralela del ácido araquidónico presente en los mismos compartimentos lipídicos (Galloway et al., 1985) [27]. Este dato es particularmente importante porque demuestra que el EPA no se limita a circular en la sangre, sino que entra físicamente en las estructuras celulares ocupando los espacios anteriormente ocupados por el ácido araquidónico.

Con el paso de los años, estudios cada vez más sofisticados han permitido comprender que dicha sustitución no es un fenómeno limitado a las plaquetas. En adultos jóvenes sanos, el consumo de pescado, aceite de pescado o DHA altamente concentrado determinó un aumento significativo de los niveles de EPA y DHA en los lípidos plasmáticos, en las membranas eritrocitarias y en las plaquetas, acompañado de una reducción de los PUFA (ácidos grasos poliinsaturados presentes en alimentos como pescado, nueces y aceites vegetales) pertenecientes a la familia Omega-6. Además, surgió una relación directa entre la cantidad ingerida y la cantidad incorporada en los tejidos: cuanto mayor era la ingesta de Omega-3, mayor resultaba la sustitución de los ácidos grasos Omega-6 presentes en las membranas celulares (Vidgren et al., 1997) [28].

Uno de los aspectos más interesantes observados en este estudio se refiere al comportamiento del DHA. Además de incorporarse directamente en las membranas, parte del DHA se convierte retrógradamente en EPA, aumentando aún más la disponibilidad de ácidos grasos Omega-3 biológicamente activos. Este mecanismo amplifica todavía más la capacidad de los Omega-3 para modificar la relación entre EPA, DHA y ácido araquidónico dentro de los tejidos.

Las investigaciones posteriores han mostrado que la sustitución del ácido araquidónico es un fenómeno extremadamente organizado y específico. Al analizar diferentes compartimentos biológicos tras doce meses de suplementación con EPA y DHA, se observó que el aumento de los Omega-3 se compensa principalmente mediante una reducción de los PUFA Omega-6, incluido el ácido araquidónico, en los fosfolípidos plasmáticos, en los glóbulos rojos y en las plaquetas. En algunos compartimentos, la suplementación equivalente a unas cuatro porciones semanales de pescado azul redujo la relación Omega-6/Omega-3 en aproximadamente un 50% (Walker et al., 2015) [7].

Este dato adquiere una relevancia biológica enorme. Como se ha visto en el párrafo anterior, el ácido araquidónico representa un activador directo de las vías PI3K/AKT/mTOR y NF-κB. Reducir progresivamente su presencia en las membranas significa disminuir el potencial de activación de dichas vías. En otras palabras, el EPA y el DHA no actúan solo produciendo mediadores antiinflamatorios, sino que también reducen la disponibilidad del sustrato del que se originan muchas de las señales proinflamatorias y proproliferativas.

La sustitución del ácido araquidónico también se ha observado en condiciones patológicas caracterizadas por importantes alteraciones del metabolismo lipídico. En niños afectados por fibrosis quística, la suplementación con DHA altamente concentrado durante doce meses determinó un aumento marcado de los niveles eritrocitarios de DHA y EPA, acompañado de una reducción significativa de los niveles de ácido araquidónico y de las relaciones ARA/DHA y ARA/EPA. Dichas modificaciones resultaron asociadas a una reducción de los marcadores lipídicos de la inflamación y a una mejora del equilibrio general entre PUFA Omega-6 y Omega-3 (Ayats-Vidal et al., 2023) [29].

Este concepto parece particularmente importante porque destaca que la relación entre ácido araquidónico y Omega-3 podría representar un biomarcador biológicamente más significativo que la simple cantidad absoluta de cada ácido graso. No cuenta solo cuánto DHA o EPA estén presentes en el organismo, sino también cuánto ácido araquidónico esté disponible para competir con ellos en los procesos de señalización celular.

Las implicaciones clínicas de este equilibrio emergen claramente también en los pacientes críticos ingresados en cuidados intensivos. En un estudio realizado en sujetos ancianos gravemente enfermos, aquellos que presentaban concentraciones más elevadas de DHA y Omega-3 totales mostraban una mayor supervivencia en comparación con los pacientes con niveles inferiores. La suplementación intravenosa de Omega-3 determinó un rápido aumento de EPA y DHA y una reducción contextual del ácido araquidónico y de la relación ARA/EPA (Barros et al., 2013) [30].

Este cambio no se mantuvo confinado a los datos bioquímicos. Los pacientes que recibían Omega-3 mostraron una mejora significativa del intercambio gaseoso y un perfil lipídico más favorable desde el punto de vista inflamatorio. Una vez más, surge el mismo esquema observado en los estudios anteriores: al aumentar el EPA y el DHA, disminuye la disponibilidad de ácido araquidónico y se modifica el contexto biológico en el que se desarrollan las respuestas inflamatorias.

Observando en conjunto estas evidencias, surge una visión muy diferente a la tradicionalmente atribuida a los Omega-3. Durante mucho tiempo, el EPA y el DHA fueron considerados simplemente nutrientes dotados de propiedades antiinflamatorias. En realidad, los datos muestran que su efecto principal podría ser aún más profundo. Los Omega-3 modifican progresivamente la composición de las membranas celulares, sustituyen al ácido araquidónico en los compartimentos biológicos, reducen la relación Omega-6/Omega-3 y alteran la disponibilidad de los sustratos utilizados por las células para generar señales inflamatorias y proliferativas.

Desde esta perspectiva, la relación entre Omega-3 y ácido araquidónico no representa solo un índice nutricional, sino un verdadero indicador del equilibrio biológico del organismo. Por un lado, encontramos un ácido graso capaz de alimentar vías como PI3K, AKT y mTOR; por otro, encontramos nutrientes que reducen progresivamente su presencia en las membranas celulares y limitan su influencia fisiológica. Es precisamente en este delicado equilibrio donde parece residir una parte significativa de los efectos atribuidos a los Omega-3 sobre la salud humana.

Omega-3 y mTOR

En el párrafo anterior vimos cómo el EPA y el DHA son capaces de sustituir progresivamente al ácido araquidónico dentro de las membranas celulares. Esta sustitución produce consecuencias que van mucho más allá de la simple modificación de la composición lipídica. De hecho, uno de los efectos más relevantes que han surgido de la literatura científica se refiere a la regulación de mTOR, una de las principales centrales de control del crecimiento celular, del metabolismo energético y de la síntesis proteica.

Para comprender el significado biológico de esta relación, es útil recordar que mTOR actúa como un sensor de abundancia. Cuando los nutrientes, la energía y los factores de crecimiento están disponibles en cantidad adecuada, esta proteína promueve el crecimiento celular, la síntesis de nuevas proteínas y la proliferación de los tejidos. Cuando, por el contrario, la actividad de mTOR se reduce, la célula tiende a desplazarse hacia programas metabólicos más orientados al mantenimiento, a la reparación y al reciclaje de las estructuras dañadas.

En los últimos años ha surgido un dato particularmente interesante: mientras que el ácido araquidónico tiende a activar mTOR, los Omega-3 parecen ejercer el efecto opuesto. El EPA y el DHA actúan, de hecho, como reguladores negativos de esta vía de señalización, contribuyendo a limitar la activación excesiva de los procesos proliferativos e inflamatorios.

Una de las demostraciones más recientes de este fenómeno proviene de un estudio realizado en ratones sometidos a estrés térmico crónico, una condición capaz de comprometer la función cognitiva y de aumentar significativamente el estrés oxidativo cerebral. En este modelo experimental, la exposición al calor determinó una marcada activación de la cascada PI3K-AKT-mTOR dentro del hipocampo, acompañada de alteraciones de la función neuronal y de un deterioro de las capacidades cognitivas (Ren et al., 2025) [31].

La suplementación con Omega-3 modificó profundamente este escenario. Los niveles cerebrales de EPA y DHA aumentaron, mientras que la fosforilación de las proteínas pertenecientes a la vía PI3K-AKT-mTOR se redujo de forma significativa. Paralelamente, se observó una mejora del rendimiento cognitivo, una reducción del estrés oxidativo, una mejor conservación de la estructura neuronal y una disminución del daño mitocondrial. Lo que hace que estos resultados sean particularmente interesantes es el papel de la autofagia. Como ya se ha discutido en otros capítulos del libro, la autofagia puede compararse con el sistema de mantenimiento interno de la célula. A través de este proceso se eliminan orgánulos dañados, agregados proteicos y componentes celulares que ya no son funcionales. El estudio demostró que los Omega-3 mejoran el flujo autofágico precisamente a través de la inhibición de la vía PI3K-AKT-mTOR, permitiendo a las células nerviosas mantener más eficazmente su propia integridad estructural (Ren et al., 2025) [31].

Sin embargo, el efecto inhibitorio de los Omega-3 sobre mTOR no parece limitarse al sistema nervioso. En el cáncer colorrectal, una de las neoplasias más frecuentemente asociadas a la hiperactivación de la cascada PI3K/AKT/mTOR, el EPA y el DHA han mostrado la capacidad de reducir la proliferación celular y aumentar la apoptosis, es decir, la muerte programada de las células tumorales; en modelos animales de carcinoma colorrectal inducido químicamente, los Omega-3 redujeron la incidencia y la gravedad de las lesiones tumorales. Los estudios celulares han puesto de manifiesto, además, una significativa supresión de la vía PI3K/AKT/Bcl-2, una de las principales redes de señalización que convergen en mTOR y que favorecen la supervivencia de las células tumorales. Cuando los investigadores reactivaron artificialmente PI3K, gran parte de los efectos antitumorales de los Omega-3 se atenuó, confirmando que la modulación de esta vía representa uno de los mecanismos centrales de su actividad biológica (Huang et al., 2020) [32].

Un cuadro análogo surge también en el estudio de la fibrosis hepática. Esta condición, caracterizada por una sustitución progresiva del tejido hepático normal por tejido fibroso, representa una de las principales causas de insuficiencia hepática crónica. En modelos experimentales en los que la producción endógena de Omega-3 aumentaba a través de la expresión del gen fat-1, se observó una marcada reducción de la fibrosis hepática y de la inflamación tisular; los análisis moleculares mostraron que dicha protección iba acompañada de una significativa reducción de la actividad de mTOR y de una contemporánea modulación de las señales que regulan la supervivencia celular, incluidos los sistemas Bcl-2 y Bax. Además, el DHA resultó capaz de reducir directamente la activación de las células estrelladas hepáticas, consideradas los principales motores de la fibrogénesis (Shan et al., 2021) [33].

Las evidencias quizás más espectaculares provienen, sin embargo, de la investigación oncológica. En el carcinoma pulmonar de células no pequeñas, el DHA ha demostrado ser capaz de reprimir directamente mTOR a través de un doble mecanismo biológico: por un lado, activa AMPK, el principal sensor energético de la célula; por otro, inhibe la cascada PI3K/AKT; esta doble intervención determina una profunda reducción de la actividad de mTOR e induce simultáneamente dos procesos fundamentales para el control del crecimiento tumoral: apoptosis y autofagia. Cuando los investigadores bloquearon AMPK o reactivaron artificialmente AKT, la actividad de mTOR volvió a aumentar y gran parte de la muerte celular inducida por el DHA desapareció (Kim et al., 2015) [34]. Este resultado sugiere que la inhibición de mTOR no representa un efecto secundario de los Omega-3, sino uno de los mecanismos centrales a través de los cuales ejercen su actividad biológica.

Un elemento adicional de confirmación proviene de los estudios sobre la relación entre Omega-3 y Omega-6. Utilizando ratones genéticamente modificados para convertir los Omega-6 en Omega-3 a través de la expresión de la enzima fat-1, los investigadores observaron que el aumento de la relación PUFA n-3/n-6 determina una significativa supresión de mTORC1, uno de los dos principales complejos funcionales de mTOR. En los ratones portadores de mutaciones APC, un modelo experimental que reproduce fielmente la carcinogénesis colorrectal humana, el aumento de la relación Omega-3/Omega-6 redujo drásticamente el número y el tamaño de los tumores intestinales. Aún más interesante es la comparación directa entre DHA, EPA y ácido araquidónico: mientras que el EPA y el DHA inhibieron la proliferación celular y promovieron la apoptosis, el ácido araquidónico mostró efectos opuestos (Liu et al., 2016) [35].

Este dato crea una conexión directa con el párrafo anterior. Por un lado, encontramos el ácido araquidónico, capaz de activar PI3K, AKT y mTOR; por otro, el EPA y el DHA, capaces de suprimir estas mismas vías de señalización. No se trata simplemente de nutrientes con efectos diferentes, sino de moléculas que parecen ejercer acciones biológicas opuestas sobre los mismos nodos reguladores del metabolismo celular.

En su conjunto, estas evidencias sugieren que una parte relevante de los beneficios atribuidos a los Omega-3 puede derivar precisamente de su capacidad para modular negativamente mTOR. A través de la inhibición de la cascada PI3K/AKT/mTOR, la activación de AMPK, la promoción de la autofagia y la reducción de las señales proliferativas, el EPA y el DHA contribuyen a desplazar el equilibrio celular desde el crecimiento incontrolado hacia el mantenimiento de la homeostasis. Bajo esta perspectiva, la relación entre Omega-3 y mTOR representa uno de los puntos de encuentro más importantes entre nutrición, metabolismo y prevención de las enfermedades crónicas.

Omega-3 y AMPK

Si mTOR puede considerarse el sensor celular de la abundancia, AMPK representa su contrapeso fisiológico. Ambas proteínas funcionan como los platos de una balanza metabólica. Cuando prevalece mTOR, la célula interpreta el entorno como favorable para el crecimiento, la síntesis proteica y la proliferación. Cuando, por el contrario, se activa AMPK, el mensaje biológico cambia radicalmente: la prioridad ya no es crecer, sino conservar energía, reparar los daños y mantener la homeostasis.

AMPK, cuyo nombre completo es AMP-activated protein kinase (proteína quinasa activada por AMP), se define a menudo como el principal sensor energético de la célula. Cuando las reservas energéticas disminuyen o cuando la célula se expone a condiciones de estrés, esta proteína se activa y coordina una vasta respuesta adaptativa destinada a restablecer el equilibrio metabólico. Entre sus efectos más importantes se encuentran la estimulación de la autofagia, la inhibición de la síntesis lipídica, la reducción de la inflamación y la supresión de la actividad de mTOR.

En los últimos años ha quedado claro que el EPA y el DHA poseen una notable capacidad para activar AMPK en numerosos tejidos y condiciones patológicas diferentes. Esta observación es particularmente relevante porque sugiere que muchos de los efectos atribuidos a los Omega-3 podrían estar mediados precisamente por este sensor energético central.

Una de las demostraciones más completas proviene de los estudios sobre la sepsis (una reacción grave del organismo a una infección, que provoca una inflamación generalizada y puede dañar órganos vitales). Durante la sepsis, la respuesta inmunitaria pierde su control fisiológico y genera un daño difuso que involucra simultáneamente al hígado, los riñones, el corazón y otros órganos vitales. En un modelo experimental de sepsis inducida mediante ligadura y punción del ciego (la primera parte del intestino grueso), los Omega-3 redujeron significativamente la producción de citoquinas inflamatorias y atenuaron el daño multiorgánico; el análisis molecular evidenció que estos efectos estaban estrechamente asociados a una potente activación de AMPK y a una concomitante inhibición de mTOR. Aún más interesante es el hecho de que el bloqueo farmacológico de AMPK o la reactivación artificial de mTOR redujeron significativamente la protección inducida por los Omega-3 (Liu et al., 2023) [36].

Este resultado sugiere que AMPK no representa simplemente un marcador biológico asociado a los efectos de los Omega-3, sino uno de los principales mediadores responsables de su actividad terapéutica.

Un papel igualmente importante emerge en la regulación de los procesos fibróticos. Las fibrosis representan, de hecho, una respuesta patológica en la que los mecanismos normales de reparación son sustituidos por una producción excesiva de tejido cicatricial. En la fibrosis peritoneal asociada a la diálisis peritoneal, el EPA y el DHA mostraron la capacidad de activar un sofisticado eje de señalización que involucra a AMPK; en este modelo, los Omega-3 redujeron la llamada hiperglucólisis, una reprogramación metabólica que recuerda de cerca al efecto Warburg observado en las células tumorales. A través de la activación de AMPK, el EPA y el DHA inhibieron mTOR, redujeron la producción de lactato y limitaron la transformación de las células mesoteliales en células fibróticas (Zhang et al., 2024) [37]. En otras palabras, los Omega-3 no se limitaron a contrarrestar la inflamación, sino que corrigieron directamente la alteración metabólica que alimentaba el proceso patológico.

Estos resultados son particularmente interesantes porque introducen un concepto que está adquiriendo creciente importancia en la medicina moderna: muchas enfermedades crónicas parecen compartir profundas alteraciones del metabolismo celular. En este contexto, AMPK emerge como una especie de supervisor metabólico capaz de poner orden dentro de sistemas celulares disfuncionales. La activación de AMPK por parte de los Omega-3 también se ha observado en el contexto oncológico. En el carcinoma pulmonar de células no pequeñas, el DHA induce una marcada activación de AMPK acompañada de una simultánea inhibición de la cascada PI3K/AKT/mTOR. Esta doble acción provoca una reducción de la proliferación celular y favorece tanto la autofagia como la apoptosis.

Un aspecto particularmente significativo surgido de este estudio es que el bloqueo experimental de AMPK reduce drásticamente la autofagia y la muerte celular inducidas por el DHA. Esto demuestra que la activación de esta proteína representa uno de los eventos centrales a través de los cuales los Omega-3 ejercen sus efectos antitumorales. En los modelos animales con elevada producción endógena de Omega-3, el crecimiento tumoral resultaba, de hecho, significativamente reducido, acompañado de un aumento de la fosforilación de AMPK y de una disminución de la actividad de AKT (Kim et al., 2015) [34].

Un mecanismo análogo se ha observado en el carcinoma mamario. En células MCF-7, el DHA induce una respuesta autofágica particularmente compleja que involucra a la proteína OSGIN1, un gen asociado a la respuesta celular al estrés oxidativo. Tras la exposición al DHA, las células muestran un aumento de los niveles de OSGIN1, una mayor producción de especies reactivas del oxígeno a nivel mitocondrial y una marcada activación de AMPK. Esta activación se acompaña de la fosforilación de Raptor, uno de los principales reguladores de mTORC1, y de la consecuente supresión de la actividad de mTOR. El efecto final es la formación de autofagosomas (pequeñas vesículas celulares que recogen componentes dañados o inútiles) y la activación de programas celulares incompatibles con la supervivencia de la célula tumoral. Cuando se silencia OSGIN1, gran parte de los efectos del DHA desaparece, lo que indica que la relación entre estrés oxidativo controlado, activación de AMPK e inhibición de mTOR representa uno de los mecanismos fundamentales de la acción biológica de los Omega-3 (Tsai et al., 2021) [38].

La importancia de AMPK no se limita, sin embargo, a los tumores o a las enfermedades metabólicas. También el sistema nervioso y los órganos sensoriales parecen depender fuertemente de esta proteína para mantener su integridad funcional. En la retina isquémica, una condición que caracteriza numerosas patologías oculares responsables de la pérdida de visión, el DHA resultó capaz de reactivar AMPK a través del receptor GPR120; la activación de esta cascada determinó una reducción de la expresión de HIF-1α y VEGF, dos de los principales promotores de la angiogénesis patológica retiniana. Además, el DHA mejoró la integridad de la barrera endotelial y redujo la formación de nuevos vasos anómalos. Cuando AMPK fue eliminada genéticamente, los Omega-3 perdieron completamente su capacidad protectora (Dátilo et al., 2023) [39]. Este resultado representa una de las pruebas más convincentes del papel central de AMPK como mediador de los efectos biológicos de los Omega-3.

Observando en su conjunto todas estas evidencias, emerge un cuadro sorprendentemente coherente. Aunque las patologías estudiadas sean profundamente diferentes entre sí —sepsis, fibrosis, cáncer, neurodegeneración y enfermedades isquémicas de la retina—, el mecanismo molecular que une los efectos de los Omega-3 tiende a converger siempre en el mismo nodo biológico: la activación de AMPK.

Esta proteína aparece, de hecho, como uno de los principales intérpretes intracelulares de la señal transmitida por el EPA y el DHA. A través de su activación se inhiben procesos proliferativos excesivos, se reduce la actividad de mTOR, se favorece la autofagia, se limita la inflamación y se mejora la capacidad de la célula para adaptarse a las condiciones de estrés. Bajo esta perspectiva, AMPK no representa solo una diana molecular de los Omega-3, sino uno de los principales puntos de encuentro entre nutrición, metabolismo energético, longevidad celular y prevención de enfermedades crónicas.

Conclusiones

El recorrido abordado en este capítulo nos ha permitido comprender lo importantes que son los Omega-3 para el equilibrio del organismo. El EPA y el DHA no representan solo componentes de las membranas celulares, sino que participan en la regulación de la inflamación, la inmunidad y el metabolismo. Su presencia influye en la comunicación entre las células y contribuye al mantenimiento de las funciones biológicas. En particular, la relación con los Omega-6 adquiere un papel significativo, ya que la disponibilidad de los diferentes ácidos grasos condiciona la producción de los mediadores involucrados en la respuesta inflamatoria.

Estas propiedades explican el creciente interés hacia la suplementación. Las investigaciones han demostrado que el EPA y el DHA se incorporan progresivamente en las membranas del corazón, los glóbulos rojos, las plaquetas y las células inmunitarias. Dicho proceso modifica la composición lipídica de los tejidos y reduce, en diversos compartimentos, la presencia del ácido araquidónico. Por lo tanto, no se trata de un simple aumento de los nutrientes disponibles, sino de una transformación estructural que puede influir en el comportamiento celular.

De estas modificaciones se derivan posibles implicaciones para numerosas patologías. Los estudios han destacado efectos favorables en algunos parámetros cardiovasculares, inflamatorios y metabólicos. Investigaciones adicionales han explorado el potencial de los Omega-3 en enfermedades neurodegenerativas, autoinmunes, oncológicas y dermatológicas. En el Alzheimer y el Parkinson, la atención se centra sobre todo en la neuroinflamación y en la protección neuronal. En oncología, en cambio, los resultados experimentales sugieren posibles efectos sobre la proliferación celular. Sin embargo, muchos beneficios aún requieren confirmaciones clínicas y no pueden considerarse equivalentes a tratamientos consolidados.

Una conexión particularmente importante se refiere a la resistencia a la insulina. El EPA y el DHA pueden contribuir a reducir la inflamación del tejido adiposo y a mejorar algunos indicadores metabólicos. Se han observado resultados favorables en la diabetes gestacional, en el síndrome de ovario poliquístico y en la obesidad pediátrica. Estos efectos sugieren un posible apoyo a la sensibilidad insulínica, aunque las evidencias siguen siendo heterogéneas y dependen de las condiciones estudiadas.

Para comprender mejor tales resultados, hemos profundizado en el papel del ácido araquidónico. Este Omega-6 puede activar, en modelos experimentales específicos, una importante vía de señalización PI3K/AKT/mTOR. Su sustitución progresiva en las membranas por parte del EPA y el DHA podría, por tanto, modificar la disponibilidad de las señales involucradas en la inflamación y en el crecimiento celular.

De aquí surge la relación con mTOR, una proteína fundamental para la regulación de la síntesis proteica y de la proliferación. Diversos estudios experimentales han mostrado que los Omega-3 pueden limitar su activación, favoreciendo en determinadas condiciones la autofagia y el mantenimiento del equilibrio celular.

Este mecanismo conduce finalmente a AMPK, el principal sensor energético de la célula. Las investigaciones han destacado que el EPA y el DHA pueden activarla, contribuyendo a la regulación de mTOR, de la inflamación y de los procesos metabólicos.

En conjunto, los Omega-3 emergen como importantes reguladores biológicos, capaces de actuar sobre mecanismos compartidos por numerosas condiciones patológicas. Su valor reside sobre todo en la capacidad de sostener el equilibrio celular. Garantizar un aporte alimentario adecuado de EPA y DHA representa, por tanto, una elección nutricional concreta, que debe integrarse en un estilo de vida equilibrado. La suplementación, cuando sea necesaria, debe evaluarse considerando las condiciones individuales y las evidencias disponibles.

Referencias

[1] New Insights into the Health Potential of ω-3 Polyunsaturated Fatty Acids

Lakshimi e Kavitha, 2023

Current Nutrition Reports, 2023;12(4):813-829.

[2] Modulation of Inflammation and Immunity by Omega-3 Fatty Acids: A Possible Role in the Prevention and Arresting of Autoimmune, Viral and Age-Related Diseases

Poggioli et al., 2023

European Review for Medical and Pharmacological Sciences, 2023;27(15):7380-7400.

[3] Omega-3 Fatty Acids and Neuroinflammation in Depression: Targeting Damage-Associated Molecular Patterns and Neural Biomarkers

Malau et al., 2024

Cells, 2024;13(21):1791.

[4] Long Chain Omega-3 Polyunsaturated Fatty Acids: Are They Beneficial for Physical and Cognitive Function in the Elderly?

Erhardt et al., 2021

Journal of Nutrition Health and Aging, 2021;25(4):454-461.

[5] Dietary Fish Intake and Omega-3 Polyunsaturated Fatty Acids and Cancer Survival: A Systematic Review and Meta-Analysis

Wang et al., 2023

Critical Reviews in Food Science and Nutrition, 2023;63(23):6235-6251.

[6] Effects of Fish-Oil Supplementation on Myocardial Fatty Acids in Humans

Metcalf et al., 2007

American Journal of Clinical Nutrition, 2007;85(5):1222-1228.

[7] The Pattern of Fatty Acids Displaced by EPA and DHA Following 12 Months Supplementation Varies Between Blood Cell and Plasma Fractions

Walker et al., 2015

Nutrients, 2015;7(8):6281-6293.

[8] Moderate Fish-Oil Supplementation Reverses Low Platelet Long-Chain n-3 Polyunsaturated Fatty Acid Status and Reduces Plasma Triacylglycerol Concentrations in British Indo-Asians

Lovegrove et al., 2004

American Journal of Clinical Nutrition, 2004;79(6):974-982.

[9] Effect of Omega-3 Fatty Acids and Fish Oil Supplementation on Multiple Sclerosis: A Systematic Review

AlAmmar et al., 2021

Nutritional Neuroscience, 2021;24(7):569-579.

[10] The Effects of Omega-3, DHA, EPA, Souvenaid® in Alzheimer's Disease: A Systematic Review and Meta-Analysis

Calderon Martinez et al., 2024

Neuropsychopharmacology Reports, 2024; 44(3):545-556.

[11] Omega-3 Fatty Acids as Druggable Therapeutics for Neurodegenerative Disorders

Chitre et al., 2019

CNS & Neurological Disorders - Drug Targets, 2019;18(10):735-749.

[12] Potential Treatment of Parkinson's Disease with Omega-3 Polyunsaturated Fatty Acids

Li e Song, 2022

Nutritional Neuroscience, 2022;25(1):180-191.

[13] Omega-3 Polyunsaturated Fatty Acids: Vascular and Cardiac Effects on the Cellular and Molecular Level (Narrative Review)

Drenjančević e Pitha, 2022

International Journal of Molecular Sciences, 2022;23(4):2104.

[14] Understanding the Role of Polyunsaturated Fatty Acids in Cancer Development and Prevention

Akbar et al., 2024

Cancer Treatment and Research, 2024;191:57-93.

[15] Exploring the Potential of Omega-3 Fatty Acids in Patients with Acne: A Prospective Intervention Study

Guertler et al., 2024

Journal of Cosmetic Dermatology, 2024;23(10):3295-3304.

[16] Beneficial Effects of Long-Chain n-3 Fatty Acids on Insulin Resistance: Basic and Clinical Aspects

Delarue, 2025

Biochimie, 2025;239(Pt A):30-40.

[17] Effects of Omega-3 Supplementation on Glucose and Lipid Metabolism in Patients with Gestational Diabetes: A Meta-Analysis of Randomized Controlled Trials

Liu et al., 2023

Journal of Diabetes and its Complications, 2023;37(4):108451.

[18] Efficacy of Omega-3 Fatty Acid Supplementation on Cardiovascular Risk Factors in Patients with Polycystic Ovary Syndrome: A Systematic Review and Meta-Analysis

Xia et al., 2021

Annals of Palliative Medicine, 2021;10(6):6425-6437.

[19] Omega-3 supplementation in the treatment of polycystic ovary syndrome (PCOS) - a review of clinical trials and cohort

Melo et al., 2022

Endocrine Regulations, 2022;56(1):66-79.

[20] Omega-3 Polyunsaturated Fatty Acids Reduce Insulin Resistance and Triglycerides in Obese Children and Adolescents

Juárez-López et al., 2013

Pediatric Diabetes, 2013;14(5):377-383.

[21] Omega-3 Supplementation and Diabetes: A Systematic Review and Meta-Analysis

Delpino et al., 2022

Critical Reviews in Food Science and Nutrition, 2022;62(16):4435-4448.

[22] Activation of the Phosphatidylinositol 3-Kinase-AKT/Protein Kinase B Signalling Pathway by Arachidonic Acid in Human Myeloid and Endothelial Cells: Involvement of the ErbB Receptor Family

Hii et al., 2001

Journal of Biological Chemistry, 2001;276(29):27246-27255.

[23] Arachidonic Acid Activation of Translation Initiation Signalling in Vascular Smooth Muscle Cells

Neeli et al., 2003

Biochemical and Biophysical Research Communications, 2003;309(4):755-761.

[24] Arachidonic Acid Activates Phosphatidylinositol 3-Kinase Signaling and Induces Gene Expression in Prostate Cancer

Hughes-Fulford et al., 2006

Cancer Research, 2006;66(3):1427-1433.

[25] Arachidonic Acid Promotes Migration and Invasion Through a PI3K/AKT-Dependent Pathway in MDA-MB-231 Breast Cancer Cells

Villegas-Comonfort et al., 2014

Prostaglandins, Leukotrienes and Essential Fatty Acids, 2014;90(5):169-177.

[26] Critical Role of Arachidonic Acid-Activated mTOR Signaling in Breast Carcinogenesis and Angiogenesis

Wen et al., 2013

Oncogene, 2013;32(2):160-170.

[27] Effects of Dietary Fish Oil Supplementation on the Fatty Acid Composition of Human Platelet Membrane Phospholipids: Demonstration of Selective Incorporation of Eicosapentaenoic Acid into Membrane Phospholipid Pools

Galloway et al., 1985

Clinical Science, 1985;68(4):449-454.

[28] Incorporation of n-3 Fatty Acids into Plasma Lipid Fractions, and Erythrocyte membranes and platelets During Dietary Supplementation with Fish, Fish Oil and Docosahexaenoic Acid-Rich Oil Among Healthy Young Men

Vidgren et al., 1997

Lipids, 1997;32:697-705.

[29] Changes of Erythrocyte Fatty Acids after Supplementation with Highly Concentrated Docosahexaenoic Acid (DHA) in Pediatric Cystic Fibrosis: A Randomized Double-Blind Controlled Trial

Ayats-Vidal et al., 2023

Journal of Clinical Medicine, 2023;12(11):3704.

[30] Intravenous n-3 Fatty Acid Supplementation and n-3 Fatty Acid Status and Outcome in Critically Ill Elderly Patients Receiving Enteral Nutrition

Barros et al., 2013

Clinical Nutrition, 2013;32(4):599-605.

[31] Omega-3 Polyunsaturated Fatty Acids Improve Cognitive Function in Heat-Stressed Mice by Enhancing Autophagy Through Inhibition of PI3K-AKT-mTOR Pathway Phosphorylation

Ren et al., 2025

Food & Function, 2025;16(5):1931-1946.

[32] Omega-3 Polyunsaturated Fatty Acids Attenuate MNU-Induced Colorectal Cancer in Rats by Blocking PI3K/AKT/Bcl-2 Signaling

Huang et al., 2020

OncoTargets and Therapy, 2020;13:1953-1965.

[33] Endogenous Production of n-3 Polyunsaturated Fatty Acids Protects Mice from Carbon Tetrachloride-Induced Liver Fibrosis by Regulating mTOR and Bcl-2/Bax Signaling Pathways

Shan et al., 2021

Experimental Physiology, 2021;106(4):983-993.

[34] Docosahexaenoic Acid Induces Cell Death in Human Non-Small Cell Lung Cancer Cells by Repressing mTOR via AMPK Activation and PI3K/AKT Inhibition

Kim et al., 2015

BioMed Research International, 2015;2015:239764.

[35] Elevation of n-3/n-6 PUFAs ratio Suppresses mTORC1 and Prevents Colorectal Carcinogenesis Associated with APC Mutation

Liu et al., 2016

Oncotarget, 2016;7(47):76944-76954.

[36] Protective Effect of Omega-3 Polyunsaturated Fatty Acids on Sepsis via the AMPK/mTOR Pathway

Liu et al., 2023

Pharmaceutical Biology, 2023;61(1):306-315.

[37] Omega-3 Polyunsaturated Fatty Acids Protect Peritoneal Mesothelial Cells from Hyperglycolysis and Mesothelial-to-Mesenchymal Transition Through the FFAR4/CaMKKβ/AMPK/mTOR Signaling Pathway

Zhang et al., 2024

International Immunopharmacology, 2024;128:111561.

[38] Docosahexaenoic acid promotes the formation of autophagosomes in MCF-7 breast cancer cells through oxidative stress-induced growth inhibitor 1 mediated activation of AMPK/mTOR pathway

Tsai et al., 2021

Food and Chemical Toxicology, 2021;154:112318.

[39] Omega-3 Polyunsaturated Fatty Acids Activate AMP Kinase and Protect the Retina from Ischemic Injury: An In Vitro and In Vivo Study

Dátilo et al., 2023

Experimental Eye Research, 2023;226:109345.