
Scientific Book

Psoriasis et signaux traversant la peau

Le psoriasis est une maladie inflammatoire à médiation immunitaire qui implique la prolifération des kératinocytes et l'activation de réponses immunitaires spécifiques. Les voies IL-23/Th17, PI3K/AKT/mTOR et HIF-1α participent aux processus cellulaires associés à l'inflammation cutanée et aux altérations de la croissance épidermique. Dans le livre « La scelta di Vivere in Salute o in Malattia », le Dr A. Colonnese et R. Panzironi analysent le rapport entre métabolisme cellulaire, régulation immunitaire et manifestations du psoriasis, en offrant une lecture biologique de la maladie.

Citer cet article
Colonnese, A. & Panzironi, R. (2026). Psoriasis et signaux traversant la peau. Le choix de vivre en santé ou en maladie. https://lifesciencehub.info/fr/la-scelta-di-vivere-in-salute-o-in-malattia/psoriasis-et-signaux-traversant-la-peau
Le choix de vivre en santé ou en maladie · ISBN 979-12-82692-04-5

DOI lsh.fr.libro.8

  • Publication 05/11/2026
  • Mise à jour 05/11/2026
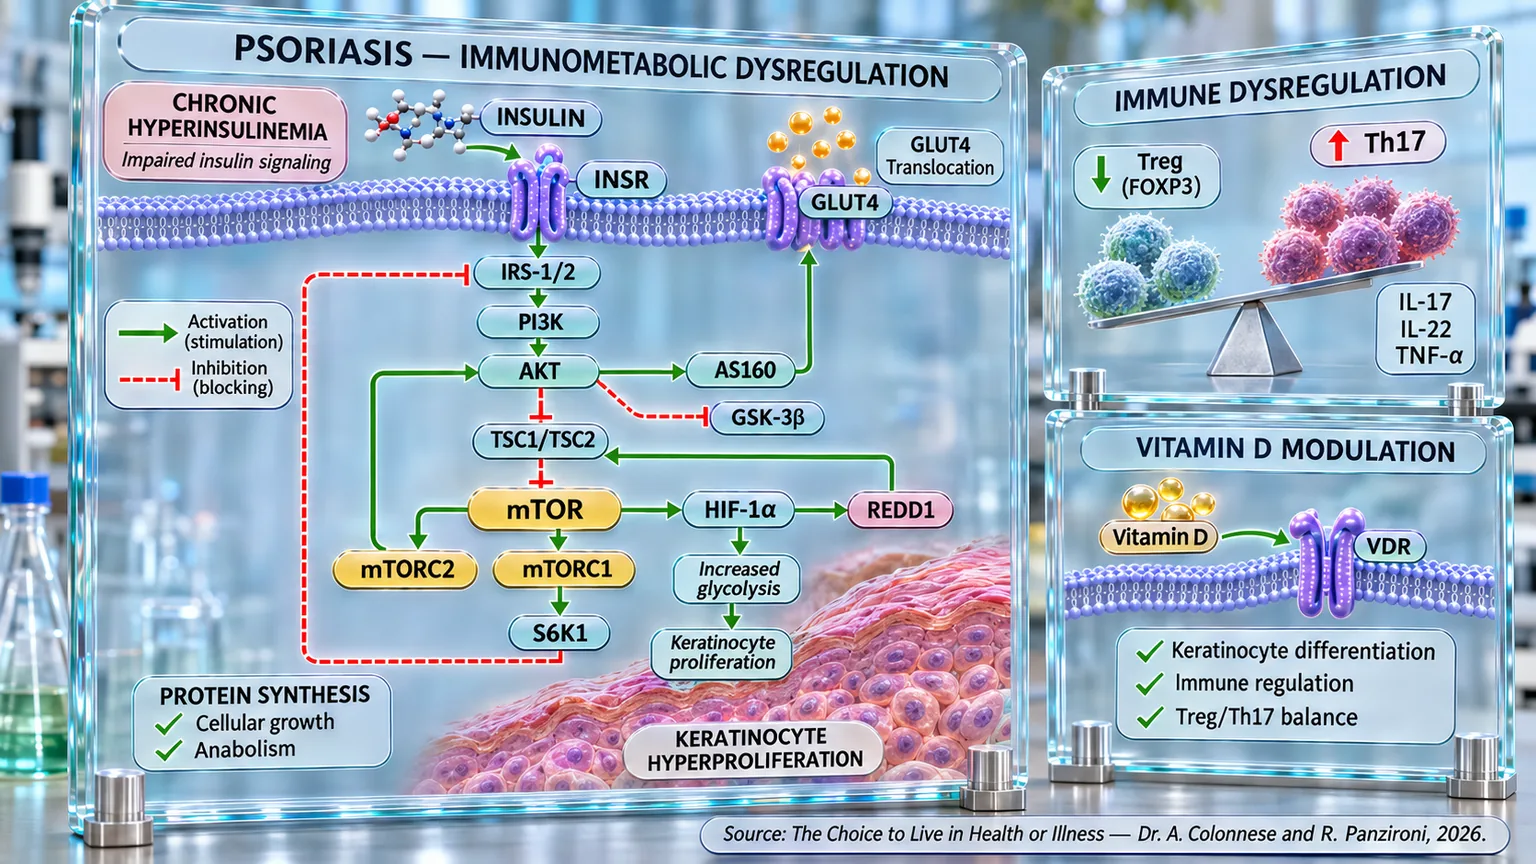
Schéma sur panneaux transparents avec membrane cellulaire, cascade insulinique, tissu épidermique, balance Treg-Th17 et récepteur VDR.
Infographie de la dérégulation immunométabolique dans le psoriasis : l'hyperinsulinémie chronique altère la signalisation insulinique PI3K/AKT/mTOR, liée à HIF-1α, à la glycolyse et à l'hyperprolifération des kératinocytes ; à côté, le déséquilibre entre des Treg réduits et des Th17 augmentés ainsi que la modulation vitamine D–VDR relient métabolisme cellulaire, immunité et croissance épidermique.

ABSTRACT

Le psoriasis est une maladie inflammatoire chronique systémique dans laquelle des altérations immunitaires et métaboliques accompagnent les manifestations cutanées. Dans le livre "La scelta di Vivere in Salute o in Malattia", le Dr A. Colonnese et R. Panzironi analysent les interactions entre le métabolisme insulinique, la signalisation intracellulaire et l'inflammation, en considérant également les associations avec l'obésité, le syndrome métabolique et le risque cardiovasculaire.

La réponse immunitaire psoriasique présente une augmentation des cellules Th17 et des médiateurs IL-17, IL-22 et TNF-α, associée à une altération des cellules T régulatrices. La réduction de la stabilité de FOXP3 peut contribuer à la perte du contrôle immunitaire. Parallèlement, une hyperinsulinémie et une insulinorésistance ont été observées chez les patients, même en l'absence d'obésité ou de diabète, parfois avec des indicateurs glycémiques conventionnels normaux. Il reste toutefois à déterminer dans quelle mesure l'hyperinsulinémie précède et contribue directement à la pathogenèse du psoriasis.

Un lien moléculaire possible implique PI3K/AKT/mTOR, une voie hyperactivée dans la peau psoriasique. mTORC1 soutient la prolifération et le métabolisme glycolytique des kératinocytes, en plus de participer à la réponse Th17. Par l'intermédiaire de HIF-1α, la signalisation métabolique favorise l'expression de composants glycolytiques et peut contribuer à l'hyperprolifération épidermique. Les recherches sur l'inhibition de mTOR par la rapamycine ou le sirolimus décrivent des réductions de la prolifération kératinocytaire et de l'inflammation ; le méthotrexate peut également moduler l'équilibre Treg/Teff via AMPK et mTOR. Ces observations nécessitent une distinction entre les résultats expérimentaux et l'applicabilité clinique.

La vitamine D participe également à la régulation immunitaire et à la différenciation des kératinocytes. Des taux inférieurs sont fréquemment associés à une plus grande sévérité du psoriasis, tandis que les analogues topiques possèdent une efficacité clinique documentée.

Dans l'ensemble, le psoriasis apparaît comme une pathologie immunométabolique multifactorielle, dans laquelle les altérations insuliniques, la signalisation mTOR/HIF-1α et le déséquilibre Th17/Treg peuvent interagir. Cette perspective élargit la compréhension des processus pathologiques sans attribuer à un mécanisme unique un rôle causal exclusif. L'intégration des observations métaboliques avec celles immunologiques peut orienter les recherches sur les rapports entre inflammation cutanée, altérations et cibles thérapeutiques, tout en maintenant une distinction entre les associations cliniques et les mécanismes expérimentaux.

Épidémiologie du psoriasis

Le psoriasis est l'une des maladies inflammatoires chroniques les plus répandues au monde, avec un impact qui dépasse largement la peau. Il touche environ 2 à 3 % de la population mondiale, ce qui représente plus de 125 millions de personnes atteintes (données OMS, 2023).

L'âge d'apparition suit une tendance bimodale, c'est-à-dire deux pics distincts : le premier entre 15 et 30 ans, le second entre 50 et 60 ans. L'apparition précoce, souvent associée à l'antigène HLA-Cw6 (variante d'une protéine présente à la surface des cellules, reconnue comme cible par le système immunitaire), est généralement plus agressive et présente une composante génétique plus marquée. À l'inverse, les formes tardives ont tendance à avoir une évolution plus légère mais plus persistante dans le temps.

Malgré la variété des manifestations cliniques, la forme la plus courante est le psoriasis vulgaire en plaques, qui représente environ 80 à 90 % des cas. Les lésions typiques, des plaques érythémateuses et squameuses localisées sur les coudes, les genoux, le cuir chevelu et la région lombaire, reflètent le résultat visible d'une inflammation profonde, systémique et complexe.

Au-delà de l'aspect dermatologique, le psoriasis s'accompagne fréquemment de comorbidités métaboliques et cardiovasculaires (présence de plusieurs pathologies chez le même individu), telles que le syndrome métabolique, l'obésité, l'hypertension et l'insulinorésistance. Pour cette raison, la maladie est aujourd'hui considérée comme un trouble immuno-métabolique systémique, qui ne se limite plus à la peau mais constitue l'expression d'un dysfonctionnement inflammatoire plus large de l'organisme.

D'un point de vue psychologique, l'impact est tout aussi significatif : les lésions visibles peuvent compromettre la qualité de vie, l'estime de soi et les relations sociales, menant souvent à l'anxiété et à la dépression. Le psoriasis n'est donc pas seulement une maladie cutanée, mais un phénomène biologique et social complexe, où la génétique, l'immunité et le métabolisme s'entremêlent dans un équilibre instable.

Déséquilibre des lymphocytes T

Le psoriasis est aujourd'hui reconnu comme une maladie caractérisée par une activation excessive du système immunitaire, qui réagit même lorsque cela n'est pas nécessaire. Dans un organisme sain, les lymphocytes T régulateurs (Treg) agissent comme un frein physiologique de l'immunité, maintenant l'équilibre entre activation et tolérance. Lorsque ce frein se relâche, comme c'est le cas dans le psoriasis, l'inflammation devient chronique et s'auto-entretient, entraînant la prolifération incontrôlée des kératinocytes (cellules principales de l'épiderme qui produisent la kératine, une protéine qui renforce et protège la peau, les cheveux et les ongles) et l'apparition des lésions cutanées caractéristiques. C'est comme si le système immunitaire, au lieu d'éteindre l'alarme une fois le danger écarté, continuait à faire retentir la sirène, provoquant des dommages à ses propres tissus.

Les études les plus récentes ont démontré que chez les patients psoriasiques, les Treg ne sont pas simplement réduites en nombre, mais surtout dysfonctionnelles. Dans des conditions normales, ces cellules inhibent les lymphocytes T helper 17 (un type de cellules effectrices), qui produisent des cytokines pro-inflammatoires comme l'IL-17, l'IL-22 et le TNF-α. Dans le psoriasis, en revanche, les Treg perdent leur capacité suppressive et, dans certains cas, se transforment elles-mêmes en cellules Th17, alimentant le processus inflammatoire au lieu de le contrôler (Kanda et al., 2021) [1]. Il se crée ainsi un véritable cercle vicieux immunitaire, où l'IL-23 favorise la conversion des Treg en Th17 et, simultanément, l'IL-17 produite par ces dernières inhibe l'expression de Foxp3 (un gène indispensable déjà traité au chapitre 6 sur le système immunitaire) pour la fonction régulatrice des Treg. Le résultat est un système immunitaire qui, privé de ses mécanismes d'autorégulation, se comporte comme un accélérateur sans freins.

Les recherches ont également montré que cette perte d'équilibre n'est pas seulement quantitative mais épigénétique (l'ensemble des mécanismes biologiques qui régulent l'activité des gènes). Les Treg des patients psoriasiques présentent en effet une chromatine (ADN organisé avec des protéines à l'intérieur du noyau cellulaire) plus « ouverte » et donc plus active, capable de répondre de manière anormale aux stimuli inflammatoires. Après un traitement par des médicaments biologiques anti-IL-17, cette hyperactivité diminue, signe que l'environnement inflammatoire lui-même peut modifier le comportement des Treg et que leur fonction peut être partiellement rétablie (Zhang et al., 2025) [2].

En parallèle, des études expérimentales ont exploré de nouvelles voies thérapeutiques visant non seulement à bloquer les cytokines pro-inflammatoires, mais à rétablir l'homéostasie immunitaire (état d'équilibre dynamique du système immunitaire). Un exemple innovant est représenté par le peptide dNP2-ctCTLA-4 (molécule expérimentale conçue pour pénétrer dans les cellules immunitaires et en atténuer l'activation), qui agit en favorisant l'expansion et la stabilisation des Treg, tout en réduisant la production d'IL-17 par les cellules Th17 et Tc17 (cellules tueuses du système immunitaire). Dans les modèles murins (modèles expérimentaux utilisant la souris ou le rat pour étudier les fonctions biologiques et les maladies humaines) de psoriasis, le traitement par ce peptide a entraîné une nette réduction de l'inflammation cutanée et une amélioration clinique supérieure à celle des médicaments biologiques traditionnels (Lee et al., 2023) [3]. Cette approche suggère un changement de perspective : non seulement éteindre le feu de l'inflammation, mais rallumer le système d'autorégulation qui empêche l'incendie de repartir.

Dans des modèles expérimentaux de psoriasis, l'application topique de butyrate de sodium (forme saline du butyrate, un acide gras à chaîne courte) a réduit de manière significative l'épaisseur et la desquamation cutanée, normalisant la production d'IL-10 et de FOXP3, marqueurs d'une activité Treg correcte, et supprimant les cytokines pro-inflammatoires IL-17 et IL-6. Lorsque les Treg étaient éliminées artificiellement, l'effet thérapeutique du butyrate disparaissait, confirmant son rôle central dans le rétablissement de l'équilibre immunitaire (Schwarz et al., 2021) [4].

La vitamine D3 et ses analogues ont également démontré leur capacité à soutenir la fonction des Treg : dans une étude comparative entre l'analogue synthétique de la vitamine D (maxacalcitol) et le corticostéroïde bétaméthasone, les deux ont réduit les signes cliniques de la dermatite psoriasiforme (inflammation cutanée présentant des caractéristiques similaires au psoriasis), mais seul le maxacalcitol a augmenté de manière significative les cellules Foxp3+ et l'expression d'IL-10, renforçant l'environnement immunosuppresseur et suggérant une action plus profonde sur le rééquilibrage immunitaire (Hau et al., 2018) [5].

Dans l'ensemble, ces preuves décrivent un tableau clair : le psoriasis n'est pas seulement une réaction excessive du système immunitaire, mais une perte de régulation interne. Les Treg, normalement chargées de maintenir la tolérance et le calme immunologique, deviennent incapables d'exercer leur fonction, se transformant parfois en protagonistes de l'inflammation qu'elles devraient contenir. Rétablir l'équilibre correct entre Treg et Th17 signifie, en fin de compte, remettre de l'ordre dans un système qui a perdu sa hiérarchie biologique.

C'est comme si, dans un orchestre, toute la section des instruments à vent commençait à jouer hors tempo, couvrant l'harmonie générale : la musique, dans ce cas la réponse immunitaire, perd sa cohérence et se transforme en bruit. Les nouvelles stratégies thérapeutiques visent donc non seulement à faire taire les instruments les plus bruyants, mais à rééduquer le chef d'orchestre, en restituant au système immunitaire sa capacité à jouer en équilibre.

Altérations métaboliques : hyperinsulinémie et insulinorésistance dans le psoriasis

Ces dernières années, une vérité fondamentale est apparue avec une clarté croissante : le psoriasis n'est pas seulement une maladie de la peau, mais un trouble systémique dans lequel le métabolisme et le système immunitaire interagissent de manière dysfonctionnelle. La peau, en ce sens, devient le miroir d'une inflammation qui naît ailleurs et qui se nourrit de processus métaboliques altérés, parmi lesquels la résistance à l'insuline.

L'observation clinique d'un lien entre le psoriasis et l'altération du métabolisme glucidique normal remonte à plusieurs décennies, mais ce n'est que récemment que les connexions biologiques unissant l'inflammation et l'insulinorésistance ont été quantifiées. Des études pionnières menées dès les années 90 avaient démontré que, chez les patients psoriasiques, les taux d'insuline plasmatique augmentaient de manière disproportionnée après l'ingestion de glucose, tandis que la vitesse de disparition du glucose était réduite, signe évident d'une sensibilité insulinique diminuée (Brenelli et al., 1995) [6]. La réponse du potassium sérique à l'insuline apparaissait également compromise, une donnée suggérant que le défaut ne concernait pas seulement le métabolisme des sucres, mais aussi d'autres fonctions cellulaires dépendantes de l'hormone.

Avec les progrès des connaissances, le tableau est devenu plus clair : la résistance à l'insuline chez les patients psoriasiques se manifeste même en l'absence de diabète ou d'obésité, et peut être mesurée par des tests de sensibilité spécifiques. En utilisant le clamp euglycémique hyperinsulinémique, la méthode la plus précise disponible, il a été observé que la capacité des tissus à répondre à l'insuline est significativement réduite chez les sujets atteints de psoriasis modéré ou sévère, même lorsque les taux de glucose et l'hémoglobine glyquée restent dans la norme (Gyldenløve et al., 2015) [7]. Cela indique que le dysfonctionnement métabolique précède le diabète avéré, représentant une sorte de « prédiabète inflammatoire ».

Dans des études plus larges, menées sur des milliers de patients, l'association entre l'indice HOMA-IR (indice utilisé pour estimer la résistance à l'insuline et la fonctionnalité des cellules β du pancréas) et le psoriasis s'est révélée évidente et indépendante d'autres facteurs de risque comme l'âge ou l'IMC (indice de masse corporelle). Dans une cohorte de la Women’s Health Initiative suivie pendant plus de vingt ans, les femmes ayant des valeurs basales de HOMA-IR plus élevées ont montré un risque accru de développer un psoriasis, suggérant que la résistance à l'insuline n'est pas seulement une conséquence, mais aussi un facteur prédisposant possible à la maladie (Chan et al., 2022) [8].

Ce lien a également été confirmé par des études transversales basées sur des populations représentatives. L'indice METS-IR, un nouveau paramètre qui estime la résistance à l'insuline en intégrant la glycémie, les triglycérides et l'IMC, s'est révélé étroitement associé au psoriasis : chaque augmentation unitaire de cet indice entraînait une augmentation de la prévalence de la maladie d'environ 1,7 %, avec un risque presque doublé pour les sujets du quartile le plus élevé (Liu et al., 2024) [9]. Des données analogues ont été obtenues avec l'indice TyG, basé sur le rapport entre triglycérides et glucose (paramètre aujourd'hui utilisé pour détecter l'insulinorésistance). Ces paramètres, simples à calculer, se sont révélés être d'excellents prédicteurs du risque psoriasique, confirmant que la répartition de la graisse abdominale et le métabolisme lipidique jouent un rôle crucial dans la pathogenèse de la maladie (Huang et al., 2023) [10].

Au niveau clinique et biochimique, de nombreuses recherches ont montré que les patients atteints de psoriasis présentent des taux plus élevés d'insuline à jeun, de fétuine-A (protéine produite principalement par le foie qui agit comme modulateur de l'insulinorésistance), de pentraxine-3 (protéine qui représente un marqueur important de l'inflammation systémique et vasculaire) et de protéine C-réactive (l'un des principaux marqueurs de l'inflammation systémique) par rapport aux sujets sains, et que ces valeurs augmentent proportionnellement à la gravité clinique de la maladie, mesurée avec l'indice PASI (indice clinique utilisé pour mesurer la gravité et l'étendue du psoriasis). L'association entre la fétuine-A, un inhibiteur connu de la signalisation insulinique, et la sévérité cutanée suggère un lien direct entre inflammation systémique et dysfonctionnement métabolique (Uysal et al., 2014) [11].

D'autres analyses cliniques ont mis en évidence que, même chez les sujets non obèses, le psoriasis s'accompagne d'une intolérance au glucose et d'une réduction marquée de la sensibilité insulinique, en particulier dans les formes tardives (type II), plus souvent associées à une maladie de longue durée (Ucak et al., 2006) [12]. Parallèlement, des études menées en Inde et dans d'autres pays émergents ont confirmé que l'insulinorésistance peut se manifester chez des patients atteints de psoriasis même en l'absence d'altérations glycémiques, se configurant comme une condition prédiabétique silencieuse où l'augmentation de l'IMC (indice utilisé pour évaluer le poids d'une personne par rapport à sa taille) et du tour de taille sont des facteurs déterminants (Dhara et al., 2015) [13].

L'impact systémique du psoriasis ne se limite pas au métabolisme glucidique. Il a été démontré que les patients psoriasiques présentent un dysfonctionnement endothélial précoce (altération du fonctionnement normal des vaisseaux sanguins) et une libération réduite d'oxyde nitrique vasculaire (molécule qui favorise la dilatation des vaisseaux sanguins), signes d'une altération athéroscléreuse initiale. En parallèle, l'augmentation de l'HOMA-IR et des taux de peptide C (indicateur de la production endogène d'insuline, c'est-à-dire de la quantité d'insuline que le corps produit lui-même) suggère que l'inflammation chronique psoriasique peut compromettre à la fois la sensibilité à l'insuline et la fonction vasculaire, favorisant ainsi la progression vers une condition pré-athéroscléreuse (Karadag et al., 2010) [14].

Cette relation s'étend également aux formes articulaires de la maladie : dans le rhumatisme psoriasique, en effet, la prévalence du syndrome métabolique et de l'insulinorésistance est significativement plus élevée que dans la population générale, et leur présence est associée de manière indépendante à une plus grande gravité de la maladie, à un indice de masse corporelle plus élevé et à une apparition plus tardive du psoriasis (Haroon et al., 2014) [15]. Toutes ces données convergent vers une seule interprétation : l'insulinorésistance est déjà présente chez les personnes atteintes de psoriasis, et précède donc le psoriasis, en provoquant son activation.

Dans cette optique, le psoriasis peut être considéré non seulement comme une maladie immunologique, mais aussi comme une forme d'inflammation métabolique chronique. Le contrôle de l'axe insulinique, par le biais de l'alimentation, de l'activité physique, de la réduction de la graisse viscérale et, si nécessaire, de l'utilisation de thérapies ciblées, devient donc une partie intégrante de la stratégie thérapeutique globale. Il ne s'agit pas seulement de soigner la peau, mais de rétablir un équilibre interne profond, ramenant l'ensemble du système immuno-métabolique vers une condition d'harmonie fonctionnelle.

mTOR comme nœud central

Le psoriasis représente l’un des modèles les plus emblématiques de maladie où l’inflammation et le métabolisme s’entremêlent. Au cœur de ce dialogue se trouve la voie de signalisation PI3K/AKT/mTOR, notre voie de l’insuline qui, comme nous l’avons précédemment abordé au cours du chapitre 4, traduit les signaux nutritionnels et hormonaux en réponses de croissance, de prolifération et de survie cellulaire.

Dans des conditions physiologiques, mTOR agit comme un régulateur de la disponibilité énergétique : lorsque les nutriments et l’insuline sont présents, le complexe mTORC1 stimule la synthèse protéique et la prolifération cellulaire, maintenant l’homéostasie tissulaire. Cependant, dans le psoriasis, ce mécanisme se transforme en un accélérateur pathologique, constamment sollicité en raison de l’excès d’insuline, de cytokines inflammatoires et de nutriments circulants (Mercurio et al., 2021) [16].

De nombreuses études ont confirmé que la voie PI3K/AKT/mTOR est hyperactive dans les cellules cutanées des patients psoriasiques. Dans les kératinocytes, l’activation anormale de mTORC1 favorise une glycolyse accélérée (processus métabolique fondamental par lequel le glucose est décomposé à l’intérieur des cellules), un comportement similaire à celui des cellules tumorales, et soutient une prolifération épidermique incontrôlée. Les kératinocytes, dans ce scénario, se comportent comme des cellules « nutritionnellement hyperstimulées », qui multiplient leur activité métabolique et perdent la capacité de se différencier correctement (Sarandi et al., 2023) [17].

C’est comme si, dans le psoriasis, la peau était convaincue de se trouver dans un état de croissance et de réparation continues, ignorant les signaux qui devraient bloquer le processus et rétablir la normalité.

Le rôle de mTOR ne se limite pas à la peau : il représente, comme expliqué au chapitre 6 concernant le système immunitaire, un pont moléculaire entre les altérations métaboliques et la réponse immunitaire. Les cellules T activées dans les lésions psoriasiques, en particulier les Th17, dépendent fortement de mTOR pour maintenir leur expansion et la production de cytokines pro-inflammatoires comme l’IL-17 et le TNF-α. Cela crée un cercle vicieux dans lequel mTOR stimule l’inflammation et l’inflammation, à son tour, alimente mTOR (Huang et al., 2014) [18].

En parallèle, la résistance à l’insuline typique des patients psoriasiques contribue davantage à ce déséquilibre. L’hyperinsulinémie persistante stimule la voie PI3K/AKT, qui à son tour active mTORC1 dans les kératinocytes et les lymphocytes, renforçant l’interconnexion entre métabolisme altéré et inflammation.

Des analyses histologiques menées sur des biopsies cutanées ont, en effet, confirmé une forte hyperactivation de mTOR et de la protéine ribosomique S6 (protéine impliquée dans les processus de synthèse protéique et régulée en aval de mTORC1/S6K) dans les kératinocytes psoriasiques, surtout dans les couches basales et suprabasales de l’épiderme. Ce schéma d’activation reflète fidèlement les processus de prolifération et de différenciation altérée qui caractérisent les plaques (Buerger et al., 2013) [19].

Une étude supplémentaire a démontré que l’activité de mTORC1 dans l’épiderme est indispensable au développement du phénotype psoriasiforme et que son inhibition, qu’elle soit pharmacologique ou génétique, réduit significativement l’épaisseur épidermique et l’infiltrat inflammatoire (Buerger, 2018) [22].

Cette hyperactivation ne concerne pas seulement la peau : les recherches les plus récentes ont mis en évidence que mTOR est également impliqué dans les manifestations systémiques du psoriasis, notamment l’arthrite psoriasique et le risque cardiovasculaire accru. Au niveau articulaire, la même cascade de signalisation favorise la prolifération des cellules synoviales (cellules qui tapissent la membrane synoviale, c’est-à-dire le tissu fin qui recouvre l’intérieur des articulations) et la production de médiateurs inflammatoires ; au niveau vasculaire, elle contribue au dysfonctionnement endothélial et à l’athérogenèse, reliant la maladie cutanée au risque cardiométabolique (Joo et al., 2024) [20].

La puissance régulatrice de mTOR découle de sa double structure fonctionnelle : le complexe mTORC1 contrôle la synthèse protéique et la croissance cellulaire, tandis que mTORC2 régule la survie et l’organisation cytosquelettique (disposition et régulation de la structure interne qui soutient la cellule). Dans le psoriasis, les deux complexes sont altérés : mTORC1 guide l’hyperprolifération épidermique, mTORC2 soutient la vitalité et la longévité des cellules inflammatoires (Raychaudhuri et al., 2014) [21].

Ces découvertes ont stimulé l’intérêt pour de nouvelles approches thérapeutiques ciblant mTOR. Les inhibiteurs classiques comme la rapamycine (sirolimus) ont démontré leur capacité à réduire la prolifération des kératinocytes et l’infiltration lymphocytaire, mais leur efficacité est limitée par les effets secondaires systémiques. Pour cette raison, des inhibiteurs doubles de mTORC1/mTORC2 et des molécules d’origine naturelle sont à l’étude, comme la delphinidine, un pigment végétal aux propriétés antioxydantes capable d’inhiber sélectivement PI3K et mTOR, réduisant de manière significative l’inflammation et l’hyperplasie épidermique dans des modèles murins (Buerger, 2018) [22].

Même d’un point de vue conceptuel, le rôle de mTOR dans le psoriasis a transformé notre compréhension de la maladie. Il ne s’agit plus seulement d’un dysfonctionnement immunitaire ou d’une simple réponse inflammatoire : le psoriasis apparaît comme une maladie immunométabolique où la peau, le système immunitaire et le métabolisme énergétique agissent en synergie.

Dans cette perspective, l’immunométabolisme psoriasique représente une nouvelle frontière thérapeutique : intervenir sur mTOR signifie, en effet, corriger non seulement la prolifération des kératinocytes mais aussi l’équilibre énergétique des cellules immunitaires, en rétablissant l’homéostasie dans un système chroniquement suractivé (Karagianni et al., 2022) [23].

En définitive, mTOR est la « centrale électrique » du psoriasis : il reçoit des signaux de l’insuline, des nutriments, des cytokines et des facteurs de croissance, et les transforme en un commandement unique de croissance et d’inflammation. Éteindre ou moduler cette centrale ne signifie pas seulement réduire les plaques, mais interrompre le cycle pathogénique à sa racine, en redonnant au système immunitaire et au métabolisme la possibilité de retrouver leur équilibre.

Inhibiteurs de mTOR

Récemment, la recherche thérapeutique sur le psoriasis s'est de plus en plus orientée vers l'objectif de moduler les mécanismes intracellulaires qui soutiennent l'inflammation et l'hyperprolifération cutanée, plutôt que de se limiter à supprimer les symptômes. Dans ce contexte, les inhibiteurs de mTOR ont suscité une grande attention pour leur capacité à agir au cœur du dysfonctionnement métabolique et immunitaire qui caractérise la maladie.

Le premier composé de cette classe, la rapamycine (ou sirolimus), est né comme un antibiotique naturel aux propriétés immunosuppressives, mais son action primaire consiste à inhiber la voie de signalisation mTOR, réduisant ainsi la prolifération cellulaire et la production de cytokines pro-inflammatoires. Des études menées sur des modèles animaux de psoriasis ont démontré que le traitement topique par la rapamycine est capable d'améliorer significativement les lésions cutanées induites par l'imiquimod (médicament utilisé pour simuler le psoriasis dans un modèle murin), en normalisant les marqueurs de différenciation épidermique et en réduisant l'activation de la voie mTOR, indice direct de l'activité de la voie (Bürger et al., 2017) [24].

Contrairement à l'administration systémique, l'approche topique permet de concentrer le médicament sur le site pathologique, limitant ainsi les effets secondaires systémiques, un aspect crucial pour le traitement chronique.

Ce concept a également été confirmé par des études cliniques chez l'homme : dans l'un des premiers essais randomisés contrôlés, le sirolimus topique a démontré une réduction significative du score clinique du psoriasis et une diminution des cellules CD4+ (lymphocytes CD4+ activés qui assurent activement leur fonction de défense) dans l'épiderme, signes d'une modulation immunitaire locale efficace, sans altérations hématologiques ni toxicité systémique significative (Ormerod et al., 2005) [25]. Ces résultats ont ouvert la voie à des formulations ciblées d'inhibiteurs de mTOR pour usage cutané, capables d'agir sélectivement sur les lésions sans compromettre l'équilibre systémique du patient.

Parallèlement, le sirolimus a montré des résultats prometteurs également en combinaison systémique avec d'autres immunosuppresseurs : dans une étude multicentrique européenne sur des patients atteints de psoriasis sévère, l'association de sirolimus avec de la ciclosporine (médicament immunosuppresseur qui inhibe sélectivement l'activation des lymphocytes T), à des doses inférieures à celles nécessaires pour obtenir un effet thérapeutique efficace, a entraîné une réduction du score PASI (indice qui mesure la gravité du psoriasis) comparable à celle de la ciclosporine à haute dose, mais avec un profil de sécurité nettement meilleur et une moindre néphrotoxicité (état dans lequel une substance, un médicament ou une toxine provoque des lésions aux reins) (Reitamo et al., 2001) [26].

Une contribution supplémentaire à la compréhension de cette stratégie thérapeutique provient des études sur les phytocomplexes naturels qui interfèrent avec la voie PI3K/AKT/mTOR. La formule herboriste chinoise Liangxue Jiedu (LXJDF), par exemple, a démontré qu'elle améliorait simultanément les lésions cutanées et la dyslipidémie dans des modèles murins de psoriasis, en réduisant le score PASI, en normalisant le profil lipidique et en inhibant l'activation de mTOR à la fois dans la peau et dans le foie. L'action combinée sur l'inflammation et le métabolisme confirme que le contrôle de mTOR peut représenter une clé d'intervention efficace dans les comorbidités psoriasiques (autres pathologies associées au psoriasis et présentes chez le même patient) (Xie et al., 2021) [27].

Outre les inhibiteurs directs de mTOR, certaines thérapies classiques du psoriasis se sont révélées capables d'agir indirectement sur la même voie : le méthotrexate, par exemple, historiquement considéré comme un antiprolifératif, exerce également un effet immunométabolique profond, en rétablissant la fonction des cellules T régulatrices (Treg) par l'activation de l'AMPK et l'inhibition conséquente de mTOR, réduisant ainsi la production d'IL-17 et d'IFN-γ (molécules du système immunitaire qui favorisent et régulent l'inflammation) et rétablissant l'équilibre entre Treg et Teff (Yan et al., 2018) [28].

Ce double mécanisme, antimitotique et immunorégulateur, explique l'efficacité durable du méthotrexate et son rôle encore central aujourd'hui dans les formes chroniques et systémiques du psoriasis.

En résumé, les inhibiteurs de mTOR et les thérapies qui modulent indirectement cette voie représentent une nouvelle frontière dans la prise en charge du psoriasis. Il ne s'agit plus seulement de bloquer l'inflammation, mais de ramener le système immuno-métabolique dans un état d'équilibre dynamique, en corrigeant la surexpression des signaux de croissance et d'inflammation.

Du sirolimus topique aux complexes phytothérapeutiques, jusqu'au méthotrexate, les stratégies d'inhibition de mTOR partagent un objectif commun : éteindre le moteur biochimique de la maladie, sans se limiter à en effacer les symptômes visibles. Dans cette perspective, mTOR n'est plus seulement une cible pharmacologique, mais une clé d'interprétation du psoriasis, un point de convergence entre métabolisme, immunité et prolifération cellulaire qui permet de comprendre la maladie dans sa globalité et d'imaginer un traitement enfin causal, et non plus seulement palliatif.

mTOR, HIF-1α et reprogrammation métabolique des cellules du système immunitaire

Dans le psoriasis, l’activation de mTOR peut contribuer au maintien de HIF-1α, même indépendamment de la seule réponse à l’hypoxie, en intégrant ce facteur de transcription dans un programme plus large de reprogrammation métabolique des kératinocytes. L’hyperactivation de la voie PI3K/AKT/mTOR, documentée dans l’épiderme psoriasique, favorise en effet des conditions cellulaires orientées vers la croissance et la synthèse protéique ; dans ce contexte, mTORC1 peut soutenir l’expression de HIF-1α, qui à son tour favorise l’expression d’enzymes et de transporteurs nécessaires à la glycolyse. Il en résulte un circuit dans lequel la disponibilité accrue d’intermédiaires métaboliques soutient la prolifération rapide des kératinocytes, tandis que HIF-1α contribue simultanément à la production de médiateurs impliqués dans l’inflammation et l’angiogenèse. L’axe mTOR–HIF-1α peut donc représenter l’un des points de convergence par lesquels les signaux inflammatoires et métaboliques participent au maintien du phénotype psoriasique.

Une démonstration particulièrement directe a été fournie par certains chercheurs, qui ont étudié le rôle de l’acide lysophosphatidique (LPA, molécule lipidique qui transmet des signaux aux cellules et en régule diverses activités) dans les kératinocytes. Le LPA activait séquentiellement AKT et mTOR, entraînant simultanément une augmentation de HIF-1α et de l’enzyme glycolytique PGAM1. L’inhibition de la signalisation LPA/LPAR1 réduisait l’activation de mTOR, HIF-1α, PGAM1 et la glycolyse. De plus, le silençage de HIF-1α empêchait l’augmentation de PGAM1 et de la glycolyse, identifiant expérimentalement une séquence AKT → mTOR → HIF-1α → PGAM1 → glycolyse → prolifération des kératinocytes (Kim et al., 2022) [29].

Le rôle pathologique de HIF-1α complète ce tableau : l’augmentation de ce facteur a été documentée dans les lésions psoriasiques, où il peut coordonner simultanément le métabolisme, la prolifération, l’inflammation et l’angiogenèse. Dans les kératinocytes, l’activité de HIF-1α favorise un programme adaptatif qui accroît la capacité glycolytique et soutient la production de médiateurs pro-angiogéniques, dont le VEGF. Sa persistance peut donc contribuer à la croissance de l’épiderme et à l’expansion caractéristique du réseau vasculaire présent dans les plaques psoriasiques. Ces données placent HIF-1α comme un effecteur métabolique important capable de transformer des signaux intracellulaires persistants en modifications fonctionnelles caractéristiques de la maladie (Torales-Cardeña et al., 2015) [30].

D’autres preuves expérimentales montrent que l’augmentation de la glycolyse ne constitue pas simplement une conséquence de l’hyperprolifération, mais peut contribuer directement au maintien du phénotype pathologique des kératinocytes. Des études sur la régulation métabolique du psoriasis ont identifié mTOR et HIF-1α comme des régulateurs importants de la glycolyse épidermique ; l’activité de mTOR soutient les enzymes glycolytiques nécessaires à la disponibilité énergétique et biosynthétique des cellules en prolifération. L’interférence pharmacologique avec ces programmes métaboliques réduit en revanche la prolifération et la réponse inflammatoire. De cette manière, l’hyperactivation de mTOR et l’activité de HIF-1α convergent vers le maintien d’une glycolyse élevée, caractéristique des kératinocytes psoriasiques (Wang et al., 2023) [31].

Dans l’ensemble, les preuves permettent de proposer un modèle dans lequel mTOR représente l’un des régulateurs en amont capables de soutenir HIF-1α dans le psoriasis. Les cytokines inflammatoires et d’autres signaux extracellulaires activent PI3K/AKT et mTOR ; mTOR, par son programme anabolique, favorise l’accumulation et l’activité de HIF-1α. Ce dernier augmente ensuite l’expression de composants de la glycolyse, permettant aux kératinocytes de maintenir les besoins énergétiques et biosynthétiques élevés nécessaires à leur prolifération. Parallèlement, HIF-1α soutient des médiateurs pro-inflammatoires et pro-angiogéniques, contribuant au maintien de la plaque psoriasique. Une séquence pathogénétique cohérente se dessine donc : signaux inflammatoires/métaboliques → PI3K/AKT → mTOR → HIF-1α → augmentation de la glycolyse → hyperprolifération des kératinocytes et maintien de l’inflammation psoriasique.

La vitamine D comme modulateur immuno-métabolique

Dans ce contexte, il convient de rappeler qu'au cours des dernières années, un intérêt scientifique marqué s'est porté sur une vitamine en particulier : la vitamine D. Celle-ci a dépassé les frontières du métabolisme osseux, révélant un rôle crucial en tant que modulateur immunitaire et régulateur de l'équilibre inflammatoire. En particulier, sa relation avec le psoriasis fait l'objet d'une attention croissante : de nombreuses recherches ont mis en évidence que les patients psoriasiques présentent des taux significativement plus bas de 25-hydroxyvitamine D [25(OH)D] par rapport à la population saine, et que cette carence tend à être corrélée à la sévérité et à la durée de la maladie (Lee et Song, 2018) [32].

La vitamine D agit comme une véritable hormone immuno-métabolique : en plus de réguler la prolifération des kératinocytes, elle guide leur différenciation et réduit la production de cytokines inflammatoires telles que l'IL-17 et le TNF-α. Chez les patients psoriasiques, une carence en vitamine D affaiblit ce contrôle, favorisant la croissance épidermique incontrôlée et l'infiltration des lymphocytes T activés dans la peau (Orgaz-Molina et al., 2012) [33].

Une méta-analyse de 2018 a quantifié cette relation sur plus d'un millier de participants, démontrant que les taux de 25(OH)D étaient significativement inférieurs chez les patients atteints de psoriasis par rapport aux témoins sains. De plus, une corrélation inverse est apparue entre la vitamine D et l'indice PASI, indiquant que plus la carence est marquée, plus la manifestation cutanée semble sévère. Les auteurs soulignent que, bien que la corrélation soit modérée, elle apparaît constante dans les échantillons de grande taille, rendant plausible un lien de causalité entre le déficit vitaminique et la gravité clinique (Lee et Song, 2018) [32].

D'un point de vue clinique, l'évidence de la carence vitaminique chez les patients psoriasiques s'accompagne souvent d'une augmentation des marqueurs inflammatoires systémiques comme la protéine C-réactive (CRP). Dans une étude espagnole, les sujets atteints de psoriasis et présentant de faibles taux de 25(OH)D affichaient des valeurs plus élevées de CRP et une incidence plus importante d'obésité, deux conditions qui contribuent au maintien de l'inflammation chronique (Orgaz-Molina et al., 2012) [33].

La vitamine D apparaît donc comme un modulateur central du triangle « peau–immunité–métabolisme », capable d'influencer à la fois la composante cutanée et la composante systémique de la pathologie.

Sur le plan thérapeutique, l'utilisation d'analogues topiques de la vitamine D a représenté un tournant dans la prise en charge dermatologique du psoriasis. Ces analogues synthétiques, comme le calcipotriol et le tacalcitol, ont démontré leur capacité à normaliser la croissance kératinocytaire et à réduire l'activation lymphocytaire, avec une efficacité clinique comparable aux corticoïdes de puissance moyenne (médicaments analogues aux hormones stéroïdiennes). L'association avec des corticoïdes topiques en potentialise d'ailleurs les effets tout en réduisant le risque d'atrophie cutanée (amincissement et affaiblissement de la peau) (Soleymani et al., 2015) [34].

Toutefois, le débat scientifique reste ouvert concernant la vitamine D orale : bien que son administration systémique ait été initialement négligée, des études récentes réévaluent son efficacité non seulement pour améliorer les lésions cutanées, mais aussi pour corriger une carence endémique fréquemment observée chez les patients psoriasiques. Selon certains chercheurs, la supplémentation orale, si elle est conduite avec des dosages adéquats et un suivi clinique, est bien tolérée et potentiellement utile tant pour améliorer le tableau dermatologique que pour réduire les risques cardiovasculaires associés à la maladie (Kamangar et al., 2013) [35].

Un résultat particulièrement significatif provient de l'étude pilote menée par Coimbra, dans laquelle des patients atteints de psoriasis et de vitiligo ont été traités pendant six mois avec de fortes doses quotidiennes de vitamine D3 (35 000 UI) sous un suivi clinique et diététique strict. Les sujets ont montré une nette amélioration des lésions cutanées, avec une réduction marquée du score PASI et une normalisation des taux sériques de vitamine D, sans événements indésirables significatifs. Ce résultat suggère que des dosages élevés et contrôlés pourraient représenter une stratégie thérapeutique efficace (Finamor et al., 2013) [36].

En résumé, le lien entre la vitamine D et le psoriasis peut être décrit comme une relation bidirectionnelle : la carence en vitamine D amplifie l'inflammation et la prolifération cutanée, tandis que le psoriasis lui-même, en réduisant l'efficacité de la synthèse endogène et en augmentant la consommation métabolique, aggrave la carence. Rétablir des taux optimaux de vitamine D, que ce soit par une supplémentation, une exposition solaire contrôlée ou un traitement topique, représente donc une stratégie fondamentale pour rééquilibrer le métabolisme cutané et le système immunitaire.

La vitamine D, en ce sens, n'agit pas comme un simple nutriment, mais comme une molécule signal qui harmonise l'interaction entre immunité et métabolisme ; en effet, comme nous l'avons vu dans le chapitre 6 consacré au système immunitaire, par la modulation de mTOR, elle réduit la production de médiateurs inflammatoires, limite la prolifération anormale des lymphocytes T effecteurs et stimule la production de lymphocytes T régulateurs, des processus centraux dans la pathogenèse de la maladie. Cet effet régulateur favorise un meilleur contrôle de la réponse immunitaire, prévenant l'agression auto-immune contre les tissus articulaires.

Un déficit en vitamine D laisse le système dépourvu de frein physiologique, tandis qu'une présence adéquate contribue à rétablir le calme biologique de la peau, la ramenant progressivement à un état d'équilibre et de santé.

Conclusions

Les preuves scientifiques analysées dans ce chapitre définissent le psoriasis comme une pathologie inflammatoire chronique systémique dans laquelle la peau, le système immunitaire et le métabolisme sont étroitement interconnectés. La maladie touche environ 2 à 3 % de la population mondiale et, au-delà des manifestations cutanées caractéristiques, elle est fréquemment associée à l'obésité, au syndrome métabolique, à l'insulinorésistance et à des complications cardiovasculaires, ce qui conforte son interprétation plus large en tant que trouble immunométabolique.

La première étape concerne le déséquilibre de la réponse immunitaire. Les recherches montrent une altération des lymphocytes T régulateurs, essentiels au maintien de la tolérance immunologique, accompagnée de l'expansion des cellules Th17 et de l'augmentation de médiateurs pro-inflammatoires tels que l'IL-17, l'IL-22 et le TNF-α. L'environnement inflammatoire peut également modifier la stabilité des Treg et réduire FOXP3, tandis que des interventions capables de restaurer leur fonction et leur nombre ont montré expérimentalement une réduction de l'inflammation psoriasique.

À cette altération immunitaire s'ajoute un dysfonctionnement significatif du métabolisme insulinique : chez les patients atteints de psoriasis, une hyperinsulinémie, une sensibilité réduite à l'insuline et une insulinorésistance ont été documentées, même en l'absence de diabète ou d'obésité, et avec une glycémie et une hémoglobine glyquée encore normales. Des indices élevés d'insulinorésistance sont par ailleurs associés à une prévalence et un risque accrus de psoriasis. Dans le modèle soutenu dans cet ouvrage, l'hyperinsulinémie chronique peut précéder et contribuer à l'insulinorésistance progressive, s'inscrivant ainsi précocement dans le terrain métabolique sur lequel se développe la maladie.

Le point de convergence entre ces altérations est identifié au niveau de mTOR. La voie PI3K/AKT/mTOR est hyperactivée dans la peau psoriasique, où mTORC1 soutient la prolifération et le métabolisme glycolytique des kératinocytes et contribue à l'activité des cellules Th17. L'hyperinsulinémie persistante peut représenter un stimulus supplémentaire pour PI3K/AKT/mTOR, reliant ainsi métabolisme insulinique, prolifération épidermique et inflammation. De manière cohérente, l'inhibition pharmacologique de mTOR par la rapamycine/sirolimus a montré sa capacité à réduire la prolifération kératinocytaire, l'infiltration lymphocytaire et les manifestations cutanées, tandis que le méthotrexate peut contribuer au rééquilibre Treg/Teff par l'activation de l'AMPK et l'inhibition de mTOR.

Une étape supplémentaire concerne HIF-1α : les preuves expérimentales montrent une séquence dans laquelle l'activation de PI3K/AKT et mTOR soutient HIF-1α, qui augmente les enzymes et les transporteurs glycolytiques et favorise le métabolisme nécessaire à l'hyperprolifération des kératinocytes. Se dessine ainsi l'axe PI3K/AKT → mTOR → HIF-1α → augmentation de la glycolyse → prolifération kératinocytaire et maintien de l'inflammation, reliant directement signalisation métabolique et phénotype psoriasique.

Enfin, la vitamine D apparaît comme un modulateur immunométabolique important. Chez les patients psoriasiques, des taux inférieurs de vitamine D sont fréquemment associés à une plus grande sévérité de la maladie. La vitamine peut réguler la prolifération et la différenciation des kératinocytes, limiter les médiateurs inflammatoires et soutenir l'équilibre immunitaire, tandis que les analogues topiques ont démontré leur efficacité clinique.

Dans l'ensemble, un fil conducteur cohérent émerge donc : altération métabolique et insulinique → activation de PI3K/AKT/mTOR → HIF-1α et reprogrammation glycolytique → hyperprolifération des kératinocytes et déséquilibre immunitaire → maintien de l'inflammation psoriasique. Le psoriasis apparaît ainsi comme l'expression visible d'une altération immunométabolique systémique plus complexe.

Références

[1] The Defect in Regulatory T Cells in Psoriasis and Therapeutic Approaches

Kanda et al., 2021

J Clin Med. 2021 Aug 29;10(17):3880.

[2] Changes in the Immune Profile and Chromatin Accessibility of Peripheral Regulatory T Cells in Psoriasis Patients Before and After Treatment With Biologics

Zhang et al., 2025

Exp Dermatol. 2025 Apr;34(4):e70079.

[3] Alleviating psoriatic skin inflammation through augmentation of Treg cells via CTLA-4 signaling peptide

Lee et al., 2023

Front Immunol. 2023 Sep 25:14:1233514.

[4] Induction of Regulatory T Cells and Correction of Cytokine Disbalance by Short-Chain Fatty Acids: Implications for Psoriasis Therapy

Schwarz et al., 2021

J Invest Dermatol. 2021 Jan;141(1):95-104.e2.

[5] The vitamin D3 analog, maxacalcitol, reduces psoriasiform skin inflammation by inducing regulatory T cells and downregulating IL-23 and IL-17 production

Hau et al., 2018

J Dermatol Sci. 2018 Nov;92(2):117-126.

[6] Insulin resistance in psoriasis

Brenelli et al., 1995

Braz J Med Biol Res. 1995 Mar;28(3):297-301.

[7] Patients with psoriasis are insulin resistant

Gyldenløve et al., 2015

J Am Acad Dermatol. 2015 Apr;72(4):599-605.

[8] Association between baseline insulin resistance and psoriasis incidence: the Women's Health Initiative

Chan et al., 2022

Arch Dermatol Res. 2022 Nov;314(9):869-880.

[9] Association of METS-IR index with psoriasis in US adults: a cross-sectional study

Liu et al., 2024

Sci Rep. 2024 Oct 30;14(1):26123.

[10] Positive association between different triglyceride glucose index-related indicators and psoriasis: evidence from NHANES

Huang et al., 2023

Front Immunol. 2023 Dec 20:14:1325557.

[11] The levels of serum pentraxin3, CRP, fetuin-A, and insulin in patients with psoriasis

Uysal et al., 2014

Eur Rev Med Pharmacol Sci. 2014 Nov;18(22):3453-8.

[12] Comparison of various insulin sensitivity indices in psoriatic patients and their relationship with type of psoriasis

Ucak et al., 2006

J Eur Acad Dermatol Venereol. 2006 May;20(5):517-22.

[13] Clinico-Biochemical Correlation Between Psoriasis and Insulin Resistance

Dhara et al., 2015

Indian J Clin Biochem. 2015 Jan;30(1):99–103.

[14] Is psoriasis a pre-atherosclerotic disease? Increased insulin resistance and impaired endothelial function in patients with psoriasis

Karadag et al., 2010

Int J Dermatol. 2010 Jun;49(6):642-6.

[15] High prevalence of metabolic syndrome and of insulin resistance in psoriatic arthritis is associated with the severity of underlying disease

Haroon et al., 2014

J Rheumatol. 2014 Jul;41(7):1357-65.

[16] Recent Updates on the Involvement of PI3K/AKT/mTOR Molecular Cascade in the Pathogenesis of Hyperproliferative Skin Disorders

Mercurio et al., 2021

Front Med (Lausanne). 2021 Apr 30:8:665647.

[17] Psoriasis immunometabolism: progress on metabolic biomarkers and targeted therapy

Sarandi et al., 2023

Front Mol Biosci. 2023 Jun 19:10:1201912.

[18] Phosphoinositide-3 kinase/protein kinase-B/mammalian target of rapamycin pathway in psoriasis pathogenesis. A potential therapeutic target?

Huang et al., 2014

Acta Derm Venereol. 2014 Jul;94(4):371-9.

[19] Mammalian target of rapamycin and its downstream signalling components are activated in psoriatic skin

Buerger et al., 2013

Br J Dermatol. 2013 Jul;169(1):156-9.

[20] Pivotal Role of mTOR in Non-Skin Manifestations of Psoriasis

Joo et al., 2024

Int J Mol Sci. 2024 Jun 20;25(12):6778.

[21] mTOR Signaling Cascade in Psoriatic Disease: Double Kinase mTOR Inhibitor a Novel Therapeutic Target

Raychaudhuri et al., 2014

Indian J Dermatol. 2014 Jan;59(1):67-70.

[22] Epidermal mTORC1 Signaling Contributes to the Pathogenesis of Psoriasis and Could Serve as a Therapeutic Target

Buerger, 2018

Front Immunol. 2018 Nov 30:9:2786.

[23] Predominant Role of mTOR Signaling in Skin Diseases with Therapeutic Potential

Karagianni et al., 2022

Int J Mol Sci. 2022 Feb 1;23(3):1693.

[24] Blocking mTOR Signalling with Rapamycin Ameliorates Imiquimod-induced Psoriasis in Mice

Bürger et al., 2017

Acta Derm Venereol. 2017 Oct 2;97(9):1087-1094.

[25] Treatment of psoriasis with topical sirolimus: preclinical development and a randomized, double-blind trial

Ormerod et al., 2005

Br J Dermatol. 2005 Apr;152(4):758-64.

[26] Efficacy of sirolimus (rapamycin) administered concomitantly with a subtherapeutic dose of cyclosporin in the treatment of severe psoriasis: a randomized controlled trial

Reitamo et al., 2001

Br J Dermatol. 2001 Sep;145(3):438-45.

[27] Liangxue Jiedu Formula Improves Psoriasis and Dyslipidemia Comorbidity via PI3K/Akt/mTOR Pathway

Xie et al., 2021

Front Pharmacol. 2021 Mar 3:12:591608.

[28] Methotrexate restores the function of peripheral blood regulatory T cells in psoriasis vulgaris via the CD73/AMPK/mTOR pathway

Yan et al., 2018

Br J Dermatol. 2018 Oct;179(4):896-905.

[29] LPA/LPAR1 Signaling Induces PGAM1 Expression via AKT/mTOR/HIF-1α Pathway and Increases Aerobic Glycolysis, Contributing to Keratinocyte Proliferation

Kim et al., 2022

Life Sciences, vol. 311, pt. B, 2022, article 121201.

[30] Cross Talk between Proliferative, Angiogenic, and Cellular Mechanisms Orchestred by HIF-1α in Psoriasis

Torales-Cardeña et al., 2015

Mediators of Inflammation, vol. 2015, 2015, article 607363.

[31] Deciphering the Mechanism of PSORI-CM02 in Suppressing Keratinocyte Proliferation through the mTOR/HK2/Glycolysis Axis

Wang et al., 2023

Frontiers in Pharmacology, vol. 14, 2023, article 1152347.

[32] Association between circulating 25-hydroxyvitamin D levels and psoriasis, and correlation with disease severity: a meta-analysis

Lee e Song, 2018

Clin Exp Dermatol. 2018 Jul;43(5):529-535.

[33] Deficiency of serum concentration of 25-hydroxyvitamin D in psoriatic patients: a case-control study

Orgaz-Molina et al., 2012

J Am Acad Dermatol. 2012 Nov;67(5):931-8.

[34] The role of vitamin D in psoriasis: a review

Soleymani et al., 2015

Int J Dermatol. 2015 Apr;54(4):383-92.

[35] Oral vitamin D, still a viable treatment option for psoriasis

Kamangar et al., 2013

J Dermatolog Treat. 2013 Aug;24(4):261-7.

[36] A pilot study assessing the effect of prolonged administration of high daily doses of vitamin D on the clinical course of vitiligo and psoriasis

Finamor et al., 2013

Dermatoendocrinol. 2013 Jan 1;5(1):222-34.