
Scientific Book

Relations sociales et réponses biologiques à la solitude

Les relations sociales constituent une composante importante de la santé psychophysique, avec des implications possibles sur la régulation du stress, l'activité neuroendocrinienne et les processus inflammatoires. L'isolement social, la solitude et la qualité des rapports interpersonnels sont associés à différents résultats de santé, par le biais de mécanismes biologiques et comportementaux complexes. Dans le livre « La scelta di Vivere in Salute o in Malattia », le Dr A. Colonnese et R. Panzironi approfondissent le lien entre socialité, équilibre psychophysique et fonctionnement de l'organisme.

Citer cet article
Colonnese, A. & Panzironi, R. (2026). Relations sociales et réponses biologiques à la solitude. Le choix de vivre en santé ou en maladie. https://lifesciencehub.info/fr/la-scelta-di-vivere-in-salute-o-in-malattia/relations-sociales-et-reponses-biologiques-a-la-solitude
Le choix de vivre en santé ou en maladie · ISBN 979-12-82692-04-5

DOI lsh.fr.libro.21

  • Publication 05/11/2026
  • Mise à jour 05/11/2026
  • ISOLEMENT SOCIAL
  • SOLITUDE
  • STRESS CHRONIQUE
  • CORTISOL
  • REDD1
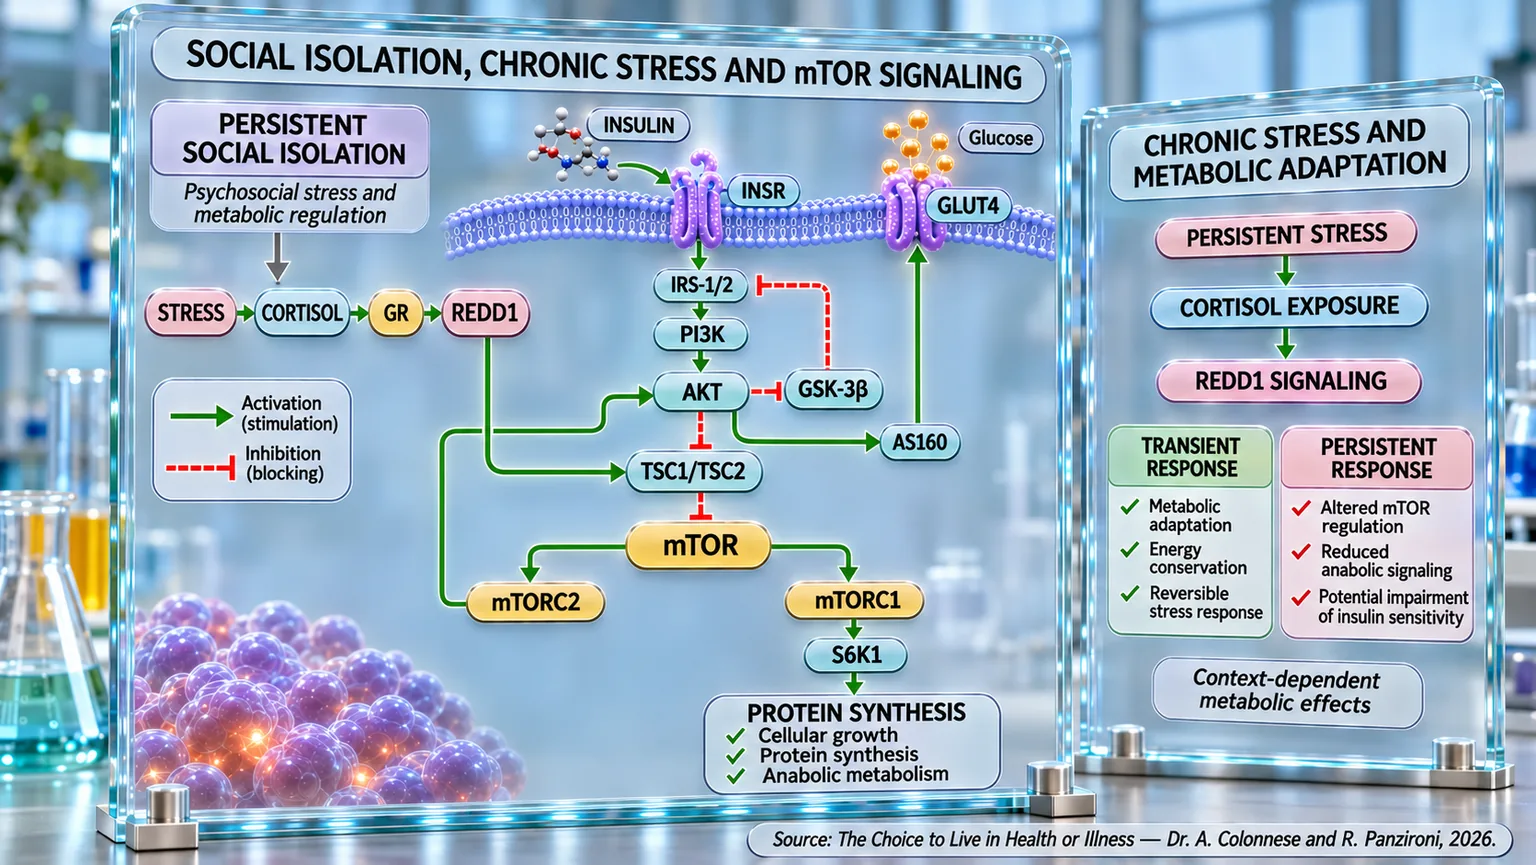
Infographie moléculaire avec membrane cellulaire, récepteur à l'insuline, GLUT4 et diagrammes des voies REDD1, AKT et mTOR sous stress chronique.
Le schéma relie l'isolement social persistant, le stress et le cortisol à la signalisation REDD1/mTOR, en les associant à la voie insulinique INSR–IRS-1/2–PI3K–AKT et au transport du glucose par GLUT4. Il distingue également la réponse transitoire de la réponse persistante, en mettant en évidence l'adaptation métabolique, l'altération de la régulation anabolique et la possible réduction de la sensibilité à l'insuline.

ABSTRACT

La sociabilité constitue une dimension biologique de la santé, associée à la survie, au comportement et à la régulation métabolique. Dans le livre "La scelta di Vivere in Salute o in Malattia", le Dr A. Colonnese et R. Panzironi examinent les relations entre l'isolement social, le stress chronique et la signalisation insulinique. Des études épidémiologiques associent la solitude et l'isolement persistants à une mortalité accrue et à un risque cardiovasculaire plus élevé, sans pour autant démontrer un rapport de causalité univoque.

La pertinence des relations trouve un contexte évolutif dans la coopération, le partage des ressources et l'apprentissage social au sein des communautés humaines. Durant l'enfance et l'adolescence, l'isolement a été associé à l'inflammation, à l'obésité et à des altérations cardiométaboliques ultérieures. À l'âge adulte, la déconnexion sociale s'accompagne fréquemment d'une qualité alimentaire inférieure, d'une activité physique moindre, d'une plus grande propension au tabagisme et d'une observance thérapeutique réduite. Ces comportements peuvent contribuer aux associations observées entre un faible soutien social, l'insulinorésistance et les altérations glycémiques.

Au-delà des comportements, des modèles expérimentaux suggèrent des effets de l'isolement sur la sensibilité insulinique centrale et périphérique, sur le stress oxydatif et sur la transmission du signal insulinique. Un lien possible implique l'axe hypothalamo-hypophyso-surrénalien : la solitude persistante peut modifier la régulation circadienne du cortisol. Par l'intermédiaire du récepteur des glucocorticoïdes, le cortisol induit REDD1, qui agit sur TSC1/TSC2 en réduisant l'activité de mTOR. Cette réponse peut favoriser temporairement l'adaptation énergétique, tandis que sa persistance pourrait compromettre le métabolisme cellulaire.

La modulation prolongée de mTOR peut affecter mTORC2 et l'activation d'AKT, interférant avec la séquence AKT-AS160-GLUT4 et la captation du glucose ; les preuves soulignent également des effets possibles sur la fonction des cellules β pancréatiques. Dans l'ensemble, il émerge un réseau d'associations épidémiologiques et de mécanismes expérimentaux reliant les relations sociales, la réponse au stress et l'homéostasie métabolique. Comprendre leurs interactions peut orienter de futures recherches, tout en évitant de considérer la voie cortisol-REDD1-mTOR comme une explication exclusive des effets sanitaires de la solitude. Il reste essentiel de distinguer les effets du stress transitoire des conséquences d'une exposition persistante.

La socialité comme nouveau facteur de risque

La sociabilité représente l’un des piliers les plus profonds et souvent sous-estimés de la santé humaine. L’être humain, par nature, est une espèce sociale : depuis ses origines, sa survie a dépendu de sa capacité à créer des liens, à coopérer et à vivre au sein d’une communauté. Les relations ne sont donc pas un simple complément de la vie quotidienne, mais une composante structurelle de notre biologie. Lorsque cet équilibre relationnel fait défaut, il ne se génère pas seulement un malaise émotionnel, mais s’active une véritable cascade de modifications physiologiques susceptibles de compromettre la santé à long terme.

Ces dernières années, la littérature scientifique a commencé à reconnaître la déconnexion sociale, entendue comme un isolement objectif ou comme une expérience subjective de solitude, comme un véritable facteur de risque, au même titre que ceux traditionnellement pris en compte dans le domaine clinique. Dans ce contexte, la sociabilité cesse d’être un élément accessoire pour devenir un déterminant central de l’état de santé.

Les preuves épidémiologiques sont particulièrement claires. Une vaste méta-analyse menée sur plus de 300 000 individus a démontré que les personnes ayant des relations sociales plus solides présentent une probabilité de survie supérieure de 50 % par rapport à celles plus isolées (Holt-Lunstad et al., 2010) [1]. Cette donnée prend une signification encore plus importante si on la compare à d’autres facteurs de risque : l’impact des relations sociales sur la mortalité est en effet comparable à celui du tabagisme, de l’obésité et de la sédentarité, suggérant que la dimension relationnelle est un déterminant biologique de première importance.

Cette observation est confirmée par des études à grande échelle qui ont analysé directement le rôle de l’isolement social dans la mortalité. Dans un échantillon représentatif de la population adulte, l’isolement s’est révélé être un prédicteur indépendant de mortalité, avec un impact similaire à celui du tabagisme et supérieur à celui de l’hypertension (Pantell et al., 2013) [2]. En d’autres termes, le manque de relations sociales peut influencer la survie autant que certains des facteurs de risque cliniques les plus connus, soulignant que la santé n’est pas déterminée exclusivement par des paramètres biologiques, mais aussi par la qualité des connexions humaines.

Un aspect particulièrement intéressant concerne la nature multidimensionnelle de la sociabilité. Ce n’est pas seulement le nombre de relations qui compte, mais aussi leur qualité et la perception subjective de connexion. Deux personnes peuvent avoir le même nombre de contacts sociaux, mais vivre des expériences complètement différentes : l’une peut se sentir soutenue et intégrée, l’autre profondément seule. C’est précisément cette discordance entre les relations souhaitées et les relations réelles qui définit la solitude, une condition qui, si elle persiste, peut avoir des effets encore plus marqués sur la santé.

La distinction entre solitude situationnelle et solitude chronique aide à mieux comprendre ce phénomène. La première est temporaire, liée à des événements spécifiques de la vie ; la seconde est persistante et représente une condition plus stable et enracinée. Les preuves montrent que les deux augmentent le risque de mortalité, mais avec des intensités différentes : la solitude situationnelle est associée à une augmentation du risque supérieure à 50 %, tandis que la solitude chronique peut l’augmenter jusqu’à 83 % (Shiovitz-Ezra et Ayalon, 2010) [3]. Cela suggère que la durée et la persistance de la déconnexion sociale jouent un rôle crucial dans la détermination de l’impact sur la santé.

Ce qui rend ce thème encore plus pertinent, c’est le fait que la déconnexion sociale n’agit pas seulement au niveau psychologique ou comportemental, mais implique directement les systèmes biologiques de l’organisme. Des études récentes ont démontré que l’isolement social est capable d’altérer profondément l’homéostasie cellulaire, en activant un réseau complexe de mécanismes neuroendocriniens, immunitaires et métaboliques (Qaisiya et al., 2025) [4]. En conditions d’isolement, l’organisme entre dans un état de stress chronique, caractérisé par une hyperactivation de l’axe hypothalamo-hypophyso-surrénalien et par une augmentation persistante des niveaux de cortisol. Cet équilibre hormonal favorise des altérations métaboliques telles que l’hyperglycémie, l’insulinorésistance et la redistribution du tissu adipeux, éléments clés dans le développement du syndrome métabolique.

Parallèlement, on observe une augmentation de l’état inflammatoire chronique. L’organisme, comme s’il percevait une menace constante, maintient le système immunitaire actif, produisant des cytokines pro-inflammatoires qui, à long terme, contribuent au développement de pathologies cardiovasculaires et métaboliques. À cela s’ajoutent des phénomènes de stress oxydatif, de dysfonctionnement mitochondrial et d’altérations des processus d’autophagie, autant d’éléments qui compromettent la capacité des cellules à maintenir leur équilibre interne.

Dans cette perspective, la solitude peut être interprétée comme un véritable syndrome immunométabolique, caractérisé par un réseau d’altérations impliquant simultanément le système nerveux, le système immunitaire et le métabolisme (Pourriyahi et al., 2021) [5]. Il ne s’agit donc pas seulement d’une condition psychologique, mais d’un état biologique complexe qui modifie le fonctionnement de l’organisme tout entier.

Un élément de réflexion supplémentaire concerne le contexte social contemporain. Les changements culturels, l’augmentation de l’individualisme, la numérisation des relations et l’impact d’événements mondiaux comme la pandémie ont contribué à rendre la déconnexion sociale de plus en plus répandue. Aujourd’hui, une part significative de la population fait l’expérience de formes d’isolement ou de solitude, faisant de ce phénomène une véritable urgence de santé publique. Les preuves suggèrent que l’impact de la déconnexion sociale sur la mortalité est comparable à celui de la consommation d’environ quinze cigarettes par jour, une donnée qui rend immédiatement évidente sa pertinence clinique (Na et al., 2023) [6].

Sur le plan cardiovasculaire également, les implications sont importantes. La solitude et l’isolement social sont associés à une augmentation significative du risque de cardiopathie coronarienne et d’accident vasculaire cérébral (AVC), indépendamment des autres facteurs de risque traditionnels (Holt-Lunstad et Smith, 2016) [7]. Cela confirme que la dimension relationnelle agit comme un déterminant autonome de la santé, capable d’influencer directement les principaux systèmes physiologiques.

Dans l’ensemble, un tableau clair émerge : la sociabilité n’est pas un simple élément de bien-être psychologique, mais un véritable facteur biologique qui module la santé et la survie. Les relations sociales fonctionnent comme un système de régulation, capable d’atténuer le stress, de favoriser des comportements sains et de maintenir l’équilibre physiologique. Au contraire, leur absence expose l’organisme à une condition de vulnérabilité systémique, dans laquelle différents mécanismes pathologiques tendent à s’activer et à se renforcer mutuellement.

Comprendre la sociabilité en ces termes signifie opérer un changement de paradigme : ne plus la considérer comme un aspect secondaire de la vie, mais la reconnaître comme l’un des déterminants centraux de la santé. Dans cette perspective, promouvoir des relations sociales de qualité n’est pas seulement un objectif social ou psychologique, mais une véritable stratégie préventive, capable d’influencer concrètement le destin biologique de l’individu.

La sociabilité dans le passé et le cerveau social

Pour vraiment comprendre à quel point la sociabilité est ancrée dans notre biologie, il est nécessaire de faire un pas en arrière et d'observer l'évolution du cerveau humain. Ce qui ressort clairement, c'est que notre système nerveux ne s'est pas développé simplement pour résoudre des problèmes techniques ou environnementaux, mais surtout pour gérer des relations. En d'autres termes, le cerveau humain est, avant tout, un cerveau social.

L'hypothèse du cerveau social représente l'un des modèles les plus solides en biologie évolutive pour expliquer l'expansion du cerveau chez les primates et chez l'homme. Selon cette perspective, l'augmentation de la taille du néocortex n'a pas été principalement guidée par des besoins liés à l'environnement physique, mais par les exigences complexes de la vie en groupe (Dunbar, 2024) [8]. Vivre dans une communauté stable implique en effet une série de défis cognitifs : reconnaître différents individus, se souvenir des relations, interpréter des intentions, prévoir des comportements et maintenir des équilibres sociaux souvent délicats. Tout cela nécessite une capacité de traitement extrêmement sophistiquée.

Cette relation entre cerveau et sociabilité apparaît de manière encore plus évidente en observant la taille des groupes humains. Des études comparatives ont démontré qu'il existe une corrélation extrêmement robuste entre la taille du néocortex et le nombre de relations sociales qu'un individu est capable de gérer. Chez l'homme, cette limite se situe autour d'environ 150 individus, une valeur connue sous le nom de « nombre de Dunbar » (Dunbar, 2024) [8]. Cette donnée n'est pas fortuite : elle représente le point d'équilibre entre les capacités cognitives disponibles et le coût énergétique nécessaire pour maintenir des relations stables.

Si nous imaginons l'esprit comme une sorte de « gestionnaire de relations », nous pouvons mieux comprendre ce concept. Chaque relation nécessite du temps, de l'attention, de la mémoire et de l'énergie émotionnelle. Il n'est donc pas possible de maintenir un nombre infini de liens significatifs : le cerveau impose une limite naturelle, qui se reflète dans la structure des réseaux sociaux humains, organisés en cercles concentriques d'intensité différente.

L'importance de la sociabilité dans le développement du cerveau n'est pas l'apanage de l'être humain, mais elle ressort clairement aussi en comparant différentes espèces. Des études comparatives entre vertébrés montrent que, chez les primates, la taille du cerveau est étroitement liée non seulement au nombre d'individus dans le groupe, mais surtout à la qualité et à la stabilité des relations sociales (Shultz et Dunbar, 2007) [9]. Maintenir des liens durables, coopérer, négocier et résoudre des conflits représente un défi cognitif beaucoup plus complexe que la simple survie individuelle.

Un élément particulièrement intéressant est que l'évolution de la sociabilité semble être passée par des phases progressives. Chez de nombreuses espèces, l'augmentation des capacités cognitives est initialement liée à la gestion du lien de couple, qui nécessite un suivi réciproque, une coordination et de la confiance. Chez les primates, ce système s'est ensuite étendu à des groupes plus larges, donnant naissance à des structures sociales de plus en plus complexes (Shultz et Dunbar, 2007) [9]. Ce passage représente l'un des moments clés de l'évolution du cerveau social.

Chez l'homme, ce processus a atteint un niveau d'intégration sans précédent. Notre espèce ne se limite pas à vivre en groupe, mais construit de véritables réseaux sociaux hautement coordonnés, basés sur la coopération, la communication et le partage des connaissances. Ce concept a été décrit comme une « niche socio-cognitive », un système dans lequel les capacités cognitives et les structures sociales se renforcent mutuellement (Whiten et Erdal, 2012) [10]. Dans cette perspective, le cerveau humain n'est pas simplement un outil individuel, mais fait partie d'un système collectif, dans lequel chaque individu contribue au fonctionnement du groupe.

La théorie de l'esprit, c'est-à-dire la capacité de comprendre les pensées, les émotions et les intentions des autres, représente l'un des piliers de ce système. Elle permet de prévoir le comportement d'autrui, de coordonner des actions et de construire des relations basées sur la confiance. À côté de cette capacité, le langage permet de transmettre des informations de manière précise, tandis que la culture permet d'accumuler et de partager des connaissances au fil du temps (Whiten et Erdal, 2012) [10]. Ces éléments, associés à la coopération et à l'égalitarisme, forment un système intégré qui a guidé l'évolution de l'espèce humaine.

Au niveau neurobiologique, ces fonctions sociales sont soutenues par un réseau de structures cérébrales spécifiques. Parmi celles-ci, le cortex préfrontal, l'amygdale et la jonction temporo-pariétale jouent un rôle central dans les processus de mentalisation et dans la gestion des relations. Ces zones permettent d'interpréter les signaux sociaux, d'évaluer les intentions d'autrui et d'adapter son propre comportement de manière flexible (Dunbar, 2024) [8].

Une donnée particulièrement significative ressort des études de neuro-imagerie (techniques utilisées pour visualiser et étudier le cerveau) : la taille et la structure de ces zones cérébrales sont directement corrélées à la complexité du réseau social d'un individu. En particulier, il a été observé que les personnes ayant des réseaux sociaux plus larges et plus intégrés présentent un volume plus important de matière grise dans des régions clés du cerveau social, comme le cortex orbitofrontal et le cortex préfrontal dorsomédian. Cela suggère que la capacité de construire et de maintenir des relations n'est pas seulement une compétence apprise, mais reflète une véritable organisation structurelle du cerveau (Kwak et al., 2018) [11].

Un aspect intéressant de ces résultats est que ce n'est pas seulement le nombre de relations qu'une personne perçoit avoir qui compte, mais aussi à quel point elle est reconnue par les autres comme un nœud central du réseau social. Être « vu » par les autres comme un point de référence relationnel est en effet associé à un plus grand développement des zones cérébrales impliquées dans la compréhension sociale. Cela renforce l'idée que la sociabilité est un phénomène profondément interactif, qui émerge de la rencontre entre individus et non de la seule perception subjective (Kwak et al., 2018) [11].

Dans l'ensemble, le cerveau humain apparaît donc façonné par la nécessité de vivre en relation. Chaque interaction, chaque lien, chaque dynamique sociale contribue à façonner nos structures cognitives et biologiques. La sociabilité n'est pas un ajout à notre nature, mais l'une de ses composantes fondamentales. Comprendre cet aspect signifie reconnaître que l'être humain n'est pas conçu pour l'isolement : au contraire, il est construit pour se connecter.

Le comportement social chez les chasseurs-cueilleurs

Si le cerveau humain a évolué pour gérer les relations, le comportement social représente son expression concrète dans le monde réel. Il ne s'agit pas simplement de « vivre ensemble », mais d'un ensemble de dynamiques extrêmement sophistiquées qui ont permis à notre espèce de survivre, de s'adapter et de prospérer dans des contextes souvent imprévisibles. En observant les sociétés humaines les plus proches de celles de nos ancêtres, il apparaît clairement que la sociabilité n'était pas une option, mais une nécessité biologique.

L'un des aspects les plus surprenants concerne la manière dont les êtres humains apprennent dès les premières années de leur vie. Dans les sociétés de chasseurs-cueilleurs, l'apprentissage n'est pas confiné à des moments formels ou structurés, mais se produit continuellement par l'interaction sociale. Les enfants, dès les premiers mois de leur vie, commencent à intérioriser des comportements, des valeurs et des compétences en observant les autres, en les imitant et en participant activement à la vie du groupe (Hewlett et al., 2011) [12]. Ce processus est extrêmement précoce et rapide : au cours des premières années de vie, bon nombre des compétences fondamentales à la survie sont acquises.

Ce qui rend ce système particulièrement efficace est sa nature distribuée. L'apprentissage ne provient pas seulement des parents, mais d'un réseau social entier incluant les pairs, d'autres adultes et les membres de la communauté. Cette transmission culturelle multiniveau — verticale, horizontale et oblique — permet une diffusion rapide et flexible des informations. Dans ce contexte, la confiance et l'autonomie jouent un rôle central : les enfants ne sont pas de simples destinataires passifs, mais participent activement, explorent et apprennent par le jeu et l'expérience directe (Hewlett et al., 2011) [12].

Outre l'apprentissage, un autre pilier du comportement social humain est représenté par la coopération. Contrairement à beaucoup d'autres espèces, les êtres humains coopèrent à grande échelle, même avec des individus sans lien de parenté. Cet aspect ressort de manière particulièrement évidente lors de l'analyse de la structure sociale des populations de chasseurs-cueilleurs : des études menées sur différentes communautés montrent que les groupes sont composés majoritairement d'individus non apparentés, avec une faible corrélation génétique entre les membres (Hill et al., 2011) [13]. Cette donnée est fondamentale, car elle indique que la coopération humaine ne peut être expliquée exclusivement par la logique de la parenté, mais qu'elle repose sur des réseaux sociaux plus larges et plus complexes.

Ces réseaux se caractérisent par une flexibilité remarquable. Les individus se déplacent entre les groupes, forment de nouvelles connexions et maintiennent des liens distribués sur plusieurs niveaux. Cette structure favorise l'échange d'informations, la transmission culturelle et l'innovation, créant un système dynamique dans lequel le groupe fonctionne comme un organisme collectif. Dans ce contexte, la sociabilité devient le moyen par lequel la connaissance est construite et transmise (Hill et al., 2011) [13].

Un exemple concret de cette interdépendance émerge en observant les dynamiques de partage de la nourriture. Dans les sociétés ancestrales, l'accès aux ressources n'était pas garanti : la chasse et la cueillette étaient des activités caractérisées par une forte variabilité et une grande incertitude. Dans ce scénario, le partage de la nourriture représentait une stratégie fondamentale pour réduire le risque individuel et garantir la survie du groupe. Des modèles récents montrent que la distribution des ressources tend à s'organiser en réseaux modulaires, où les individus et les familles s'agrègent autour de nœuds centraux, créant des systèmes coopératifs efficaces (Plana et al., 2023) [14]. Ce type d'organisation n'est pas aléatoire, mais émerge comme une solution optimale dans des contextes de rareté et d'imprévisibilité.

Le partage n'est donc pas seulement un acte altruiste, mais une stratégie adaptative. Grâce à lui, le risque de famine est réparti entre les membres du groupe, transformant une vulnérabilité individuelle en une résilience collective. En d'autres termes, le groupe devient un filet de sécurité.

Cette logique se reflète également dans la structure multiniveau des sociétés humaines. Des études menées sur des populations contemporaines de chasseurs-cueilleurs montrent que l'organisation sociale s'articule en différents niveaux : la famille, les petits groupes de partage et des campements plus larges (Dyble et al., 2016) [15]. Chaque niveau remplit une fonction spécifique. Au sein de la famille, on observe une coopération basée sur la division des rôles ; dans les groupes de partage, un soutien mutuel entre parents émerge ; au niveau de la communauté plus large, la coopération avec des individus sans lien de parenté permet de faire face à la variabilité des ressources.

Cette structure multiniveau représente l'une des caractéristiques distinctives de la sociabilité humaine. Elle permet d'équilibrer les relations étroites et les liens plus larges, garantissant à la fois stabilité et flexibilité. D'un côté, les relations les plus intimes offrent un soutien émotionnel et une sécurité ; de l'autre, les réseaux plus étendus augmentent les opportunités d'échange, d'apprentissage et de coopération.

Dans l'ensemble, le comportement social humain apparaît comme un système hautement intégré, où l'apprentissage, la coopération et le partage s'entremêlent continuellement. Chaque individu n'agit pas de manière isolée, mais au sein d'un réseau de relations qui influencent profondément ses possibilités de survie et de développement.

Cette perspective permet de comprendre un point fondamental : la sociabilité n'est pas simplement un avantage, mais une condition nécessaire au fonctionnement de l'espèce. Par le passé, être isolé signifiait être exposé à un risque élevé, non seulement d'un point de vue émotionnel, mais surtout en termes de survie. La connexion avec les autres représentait le principal outil d'adaptation à l'environnement.

Comprendre ces dynamiques évolutives aide à interpréter plus profondément le rôle de la sociabilité, même dans le contexte moderne. Ce qui peut aujourd'hui sembler être un besoin psychologique puise en réalité ses racines dans des mécanismes biologiques et comportementaux construits au fil de milliers d'années. L'être humain, en définitive, n'est pas conçu pour vivre seul, mais pour exister au sein d'un réseau de relations.

Une confirmation venue du passé : la sociabilité chez les chasseurs-cueilleurs

Pour comprendre pleinement le rôle de la socialité dans l'histoire humaine, il est nécessaire d'observer de près le contexte dans lequel notre espèce a vécu pendant la majeure partie de son existence : celui des chasseurs-cueilleurs. Pendant plus de 95 % de l'histoire évolutive, les êtres humains n'ont pas vécu dans des villes, ni dans des sociétés structurées telles que nous les connaissons aujourd'hui, mais dans des systèmes sociaux dynamiques, flexibles et profondément interconnectés. C'est dans cet environnement que se sont développés les mécanismes biologiques et comportementaux qui guident encore aujourd'hui notre façon d'entrer en relation.

Contrairement à l'image traditionnelle de petits groupes isolés, les preuves les plus récentes montrent que les sociétés de chasseurs-cueilleurs étaient insérées dans des réseaux sociaux beaucoup plus vastes et articulés. Les groupes locaux, souvent de petite taille, ne représentaient qu'une partie visible d'une structure sociale plus étendue, composée de relations réparties sur de vastes territoires et maintenues au fil du temps par des échanges, la mobilité et des liens symboliques. Dans ce contexte, la socialité n'était pas confinée au groupe immédiat, mais s'étendait bien au-delà, créant un réseau continu de connexions entre individus et communautés.

Cette organisation réticulaire apparaît clairement en analysant la composition des groupes. Les données ethnographiques indiquent que les unités locales n'étaient pas composées principalement de parents proches, mais d'individus issus de contextes différents, souvent non consanguins (Bird et al., 2019) [16]. Cela implique que la cohésion sociale ne reposait pas exclusivement sur la génétique, mais sur des systèmes de relations construites, maintenues et activées au fil du temps. La véritable « richesse » n'était pas représentée par l'accumulation matérielle, mais par la capacité à construire et à maintenir des liens sociaux : une véritable richesse relationnelle.

Un autre élément fondamental concerne l'extraordinaire variabilité de ces sociétés. Pendant longtemps, on a cru que les chasseurs-cueilleurs vivaient en petits groupes nomades et rigidement égalitaires. Cependant, les preuves archéologiques et ethnographiques montrent un tableau beaucoup plus complexe. Certaines populations étaient hautement mobiles, d'autres plus sédentaires ; certaines montraient une distribution équitable des ressources, d'autres des formes de hiérarchie et d'organisation plus structurées (Singh et Glowacki, 2022) [17]. Cette diversité suggère que la socialité humaine ne suit pas un modèle unique, mais est le résultat d'une extraordinaire capacité d'adaptation aux conditions environnementales.

Cette flexibilité représente l'un des éléments clés de l'évolution humaine. Les êtres humains ne se sont pas adaptés à un seul type d'organisation sociale, mais ont développé la capacité de modifier leurs structures relationnelles en fonction du contexte. Dans des environnements riches et prévisibles, des formes de sédentarité et des regroupements plus larges pouvaient émerger ; dans des contextes plus difficiles, la mobilité et des organisations plus fluides prévalaient (Singh et Glowacki, 2022) [17]. Dans les deux cas, la socialité restait le facteur central permettant de gérer les ressources, les risques et les opportunités.

Un aspect particulièrement fascinant concerne l'extension géographique des réseaux sociaux. Des analyses archéologiques basées sur les isotopes de strontium ont démontré que, déjà il y a plus de 30 000 ans, il existait des systèmes d'échange reliant des groupes distants de centaines de kilomètres (Stewart et al., 2020) [18]. Des objets symboliques, comme des perles en coquille d'œuf d'autruche, étaient transportés et échangés sur de longues distances, servant de véritables « marqueurs sociaux » et d'outils de connexion entre les groupes.

Ces réseaux n'avaient pas seulement une fonction culturelle, mais représentaient une stratégie de survie. Relier des groupes situés dans des environnements écologiquement différents permettait de réduire le risque lié à la variabilité des ressources. En cas de pénurie locale, le réseau social offrait un accès à des territoires et des ressources alternatives, augmentant la résilience globale du système. En d'autres termes, la socialité fonctionnait comme une forme d'assurance biologique contre l'incertitude environnementale (Stewart et al., 2020) [18].

Ce modèle met en évidence un principe fondamental : par le passé, survivre signifiait être connecté. L'individu isolé était exposé à des risques élevés, tandis que l'individu inséré dans un réseau social vaste et actif avait davantage de chances de s'adapter et de prospérer. La coopération à grande échelle, la mobilité et la capacité à maintenir des relations même à distance représentaient des avantages évolutifs décisifs.

Dans l'ensemble, l'image qui émerge est celle d'une espèce profondément interdépendante, où la socialité n'était pas un élément accessoire, mais la structure porteuse de l'organisation biologique et comportementale. Les chasseurs-cueilleurs ne vivaient pas simplement en groupes : ils vivaient au sein de réseaux.

Comprendre cette réalité signifie redéfinir le concept même de nature humaine. L'être humain n'est pas conçu pour l'autosuffisance, mais pour l'interdépendance. La capacité à construire, maintenir et activer des relations ne représente pas seulement un avantage évolutif, mais l'un des traits distinctifs de notre espèce.

La vie sociale chez les jeunes

Si la sociabilité représente une composante structurelle de la biologie humaine, il existe une phase de la vie où cette dimension devient particulièrement critique : l’enfance et l’adolescence. C’est précisément durant ces années que le cerveau, le système endocrinien et le système immunitaire sont encore en phase de développement et sont donc extrêmement sensibles à l’environnement social. Dans ce contexte, la qualité des relations n’influence pas seulement le bien-être psychologique, mais contribue à façonner de manière profonde et durable la physiologie de l’individu.

Les preuves longitudinales (observation de l’évolution d’un phénomène au fil du temps) montrent clairement que l’isolement social précoce n’est pas un phénomène transitoire sans conséquences, mais un facteur de risque dont les effets s’étendent dans le temps. Les enfants qui occupent des positions marginales ou isolées au sein de leurs groupes de pairs présentent, des décennies plus tard, un risque significativement plus élevé de développer des problèmes de santé, en particulier d’ordre cardiovasculaire (Caspi et al., 2006) [19]. Cette donnée est particulièrement pertinente car l’association persiste même après avoir contrôlé des variables telles que le statut socio-économique, le quotient intellectuel ou les comportements à risque, ce qui suggère un effet direct et indépendant de la dimension sociale.

Plus significatif encore, cet effet suit une logique cumulative. L’exposition prolongée à l’isolement, répartie sur plusieurs phases de la vie, est associée à un risque plus que doublé de développer des problèmes de santé à l’âge adulte. Cela suggère que le corps « enregistre » les expériences sociales au fil du temps, accumulant une charge biologique qui peut se manifester même de nombreuses années plus tard (Caspi et al., 2006) [19].

L’un des principaux mécanismes par lesquels ce phénomène se réalise est l’inflammation chronique de bas grade. Des études longitudinales démontrent que les enfants socialement isolés présentent, à l’âge adulte, des niveaux plus élevés de protéine C-réactive, un biomarqueur clé de l’inflammation systémique (Lacey et al., 2014) [20]. Cette donnée est particulièrement importante car l’inflammation représente l’un des principaux facteurs pathogéniques à l’origine de maladies telles que le diabète de type 2, les pathologies cardiovasculaires et les troubles dépressifs.

Le concept qui émerge est celui d’« incorporation biologique » : les expériences sociales précoces sont progressivement intégrées dans les systèmes physiologiques de l’organisme, modifiant leur fonctionnement à long terme. En d’autres termes, ce qui se passe sur le plan relationnel durant l’enfance ne reste pas confiné à la dimension psychologique, mais se traduit par des changements concrets au niveau biologique.

Cette vulnérabilité ne s’éteint pas avec l’enfance, mais se poursuit durant l’adolescence, une phase caractérisée par de profondes transformations neurobiologiques et sociales. Durant cette période, la solitude émerge comme un puissant prédicteur d’altérations métaboliques futures. Des données récentes montrent que les adolescents qui font l’expérience de niveaux élevés de solitude présentent un risque significativement plus élevé de développer une obésité à l’âge adulte, avec des augmentations notables de l’indice de masse corporelle (Rangul et al., 2025) [21]. Ce lien peut être médié par divers facteurs, notamment des comportements alimentaires dysfonctionnels, une réduction de l’activité physique et une activation chronique des systèmes de stress.

Parallèlement, même chez les jeunes adultes apparemment en bonne santé, la solitude est associée à des signes précoces de compromission cardiovasculaire. En particulier, une relation significative a été observée entre la solitude et l’augmentation de la rigidité artérielle, un indicateur subclinique de risque cardiovasculaire (Vasan et al., 2024) [22]. Cette donnée suggère que les effets de la déconnexion sociale peuvent commencer à se manifester bien avant l’apparition de pathologies cliniquement évidentes.

La dimension métabolique apparaît elle aussi fortement influencée par les facteurs sociaux. Une vaste analyse menée sur 14 217 jeunes adultes âgés de 18 à 35 ans a mis en évidence une association étroite entre solitude, stress, soutien social, cohésion sociale et présence de prédiabète ou de diabète de type 2. Dans la population étudiée, à mesure que la solitude augmentait, la probabilité de prédiabète ou de diabète de type 2 progressait également : par rapport aux niveaux les plus bas, le troisième quartile de solitude était associé à une augmentation des probabilités de 42 %, tandis que dans le quartile le plus élevé, l’augmentation atteignait 78 %. Des niveaux plus élevés de stress et de discrimination, associés à un moindre soutien social et à une cohésion sociale réduite au sein du quartier, étaient également liés à une condition métabolique plus défavorable. Un élément particulièrement pertinent est que ces facteurs ne semblent pas agir isolément, mais tendent à s’organiser en véritables « profils sociaux ». L’analyse des classes latentes a en effet identifié trois profils distincts, montrant que celui caractérisé par les expériences sociales les plus défavorables présentait des probabilités de prédiabète ou de diabète de type 2 plus que doublées (OR=2,32) par rapport au profil de référence (Harrison et al., 2025) [23].

Enfin, il est important de souligner que l’impact de l’isolement social est transversal à tous les âges, mais s’avère particulièrement marqué durant les phases les plus précoces de la vie. Des études de population montrent que les adolescents et les jeunes adultes représentent l’un des groupes les plus vulnérables, avec des associations particulièrement fortes entre isolement social et conditions de santé négatives, notamment la dépression, les comportements non sains et la multimorbidité (Hämmig, 2019) [24]. Cette donnée met en lumière une criticité souvent sous-estimée : les jeunes, bien qu’étant perçus comme une population à faible risque, peuvent en réalité être profondément influencés par la qualité de leurs relations sociales.

Dans l’ensemble, un tableau clair et cohérent émerge : la sociabilité durant l’enfance et l’adolescence n’est pas un simple facteur de bien-être, mais un déterminant biologique fondamental. Les expériences relationnelles précoces contribuent à façonner les systèmes physiologiques de l’organisme, influençant le risque de développer des pathologies chroniques au cours de la vie.

Comprendre cela signifie reconnaître que la prévention ne commence pas à l’âge adulte, mais bien avant. Investir dans la qualité des relations sociales durant les premières années de la vie n’est pas seulement une intervention éducative ou psychologique, mais une véritable stratégie de prévention métabolique, cardiovasculaire et systémique.

Isolement social et solitude : incidence sur la mortalité

Lorsque l'on analyse le rôle de la socialité dans la santé humaine, l'un des aspects les plus pertinents et, en même temps, les plus marquants concerne sa relation directe avec la mortalité. Il ne s'agit plus seulement de comprendre si les relations influencent le bien-être ou le risque de maladie, mais d'observer comment leur présence ou leur absence peut influer concrètement sur la probabilité même de survie.

Les preuves épidémiologiques les plus solides montrent que l'isolement social représente un prédicteur important de la mortalité toutes causes confondues. Une vaste cohorte prospective, comprenant 580 182 adultes inscrits dans la Cancer Prevention Study II, a mis en évidence une association significative entre l'isolement social croissant et le risque de décès. En comparant les individus les plus isolés avec ceux les moins isolés, le risque de mortalité toutes causes confondues s'avérait plus que doublé chez les hommes noirs (HR=2,34) et les femmes noires (HR=2,13), tandis qu'il augmentait de 60 % chez les hommes blancs et de 84 % chez les femmes blanches ; l'association avec la mortalité toutes causes confondues apparaissait donc dans tous les groupes analysés, sans différences statistiquement significatives entre les hommes et les femmes. Le lien ne concernait pas seulement la mortalité globale : l'isolement social était également associé à une plus grande mortalité cardiovasculaire dans chaque sous-groupe. Dans l'ensemble, ces résultats renforcent l'hypothèse selon laquelle la dimension relationnelle représente un déterminant important de la santé et de la longévité, capable d'exercer son influence dans des populations différentes par le sexe et l'appartenance ethnique (Alcaraz et al., 2019) [25].

Un aspect particulièrement significatif est que cette augmentation du risque ne concerne pas seulement la mortalité générale, mais s'étend à des causes spécifiques, en particulier cardiovasculaires. Des études prospectives ont mis en évidence que les individus socialement isolés présentent un risque presque doublé de mortalité cardiovasculaire, ainsi qu'une augmentation de l'incidence d'événements tels que l'accident vasculaire cérébral (Kawachi et al., 1996) [26]. Cette donnée suggère que la socialité n'agit pas seulement au niveau comportemental, mais intervient directement dans les mécanismes physiopathologiques qui régulent la fonction cardiovasculaire.

La force de cette association apparaît avec encore plus de clarté lorsque l'on analyse des populations cliniques. Chez les patients atteints de maladie coronarienne, l'isolement social est associé à une augmentation significative du risque de décès, tant pour des causes cardiaques que pour toutes causes confondues, avec des valeurs plus que doublées par rapport aux sujets non isolés (Brummett et al., 2001) [27]. Ce résultat est particulièrement pertinent car il persiste même après avoir contrôlé la gravité de la maladie et d'autres facteurs de risque, indiquant que la dimension sociale influe directement sur le pronostic clinique.

Un élément clé qui ressort de ces études est que ce n'est pas seulement la présence de relations qui compte, mais aussi leur qualité. Les patients socialement isolés ne perçoivent pas nécessairement une réduction du nombre de contacts, mais plutôt une moindre qualité du soutien social reçu. Cela suggère que le bénéfice de la socialité ne découle pas simplement de la quantité d'interactions, mais de leur capacité à fournir un soutien émotionnel, de la sécurité et une régulation du stress.

Même au niveau de la population générale, les données confirment une relation claire et cohérente entre l'isolement social et la mortalité. Des études de cohorte menées dans des contextes différents montrent que les sujets les plus isolés présentent une augmentation du risque de décès comprise entre 40 % et 70 %, avec un gradient continu : plus le niveau d'isolement est élevé, plus le risque est grand (Laugesen et al., 2018) [28]. Cette tendance suggère un effet dose-réponse, où la réduction progressive des relations sociales se traduit par une augmentation proportionnelle de la vulnérabilité biologique.

Un élément supplémentaire de grand intérêt concerne la dimension temporelle. Ce n'est pas seulement la présence d'un isolement social ou d'une solitude qui s'associe aux résultats de santé, mais aussi leur persistance dans le temps. Une étude prospective menée sur 18 258 participants de la UK Biobank, âgés de 38 à 73 ans, a distingué quatre conditions différentes : absence, exposition transitoire, apparition au fil du temps et exposition persistante. Au cours d'un suivi médian de 8 ans, l'isolement social persistant, par rapport à son absence, a été associé à une augmentation de 42 % de la mortalité toutes causes confondues et de 53 % de la mortalité cardiovasculaire. Une tendance analogue a été observée pour la solitude persistante, associée respectivement à des augmentations de 28 % et 52 %. L'analyse ne s'est pas limitée aux événements cliniques : dans un sous-groupe de 5 188 participants, soumis à une imagerie par résonance magnétique cardiovasculaire, la persistance et l'accumulation de ces conditions sociales étaient également associées à une moins bonne fonctionnalité cardiaque. Ces résultats suggèrent donc que la durée de l'exposition représente une composante importante du rapport entre relations sociales et santé : des conditions occasionnelles ou transitoires ne semblent pas équivalentes à une situation d'isolement ou de solitude maintenue au fil des années (Chen et al., 2024) [29].

Ce concept est davantage renforcé par des études à long terme sur des populations générales, qui mettent en évidence que la solitude persistante est associée à une augmentation de la mortalité allant jusqu'à 57 %, tandis que l'isolement social entraîne une augmentation significative, bien que légèrement inférieure (Crowe et al., 2021) [30]. La différence entre ces deux dimensions suggère que l'expérience subjective de déconnexion puisse avoir un impact encore plus profond que le simple manque objectif de relations.

Même dans les contextes les plus avancés du point de vue socio-économique, où les systèmes de protection sociale garantissent des niveaux élevés de soins de santé, la relation entre isolement social et mortalité reste significative. Cette donnée est particulièrement importante car elle indique que la dimension relationnelle opère à travers des mécanismes biologiques et comportementaux qui ne peuvent pas être complètement compensés par des facteurs externes (Laugesen et al., 2018) [28].

Enfin, il est pertinent d'observer que l'impact de l'isolement social sur la mortalité ne concerne pas exclusivement les tranches d'âge avancées, mais apparaît également chez les adultes plus jeunes. L'étude de Tromsø, menée en Norvège sur 17 796 participants âgés de 25 à 69 ans et avec un suivi étendu jusqu'en 2023, a mis en évidence une association significative entre isolement social, solitude et mortalité toutes causes confondues. Au cours de l'observation, 3 729 décès ont été enregistrés ; les femmes les plus isolées présentaient un risque de mortalité supérieur de 37 % par rapport aux moins isolées, tandis que chez les hommes, l'augmentation atteignait 41 %. Une donnée particulièrement intéressante émerge en considérant l'âge : chez les participants qui avaient moins de 50 ans au début de l'étude, l'association s'avérait encore plus marquée, avec une augmentation du risque de 55 % chez les femmes et de 76 % chez les hommes. La solitude montrait également une association indépendante avec la mortalité, avec un risque supérieur de 51 % chez les femmes et de 46 % chez les hommes. L'étude met en outre en évidence la possible persistance dans le temps de ces conditions : une part importante des participants les plus isolés continuait de l'être lors des relevés ultérieurs (Løvsletten et Brenn, 2024) [31].

Dans l'ensemble, un tableau extrêmement clair émerge : la socialité n'est pas seulement un élément de bien-être, mais un déterminant direct de la survie. Les relations sociales agissent comme un système de régulation biologique, capable d'influencer le fonctionnement du système cardiovasculaire, immunitaire et neuroendocrinien. Leur absence, au contraire, expose l'organisme à une condition de vulnérabilité systémique, qui, avec le temps, peut se traduire par une augmentation concrète du risque de décès.

Comprendre cette relation signifie reconnaître que la santé ne peut pas être interprétée exclusivement en termes individuels. L'être humain est biologiquement conçu pour vivre en relation, et la qualité de ces relations représente l'un des facteurs les plus puissants pour déterminer non seulement comment nous vivons, mais aussi combien de temps nous vivons.

Vie sociale et réduction des risques

Si l'isolement social constitue un puissant facteur de risque de mortalité, l'autre facette de la médaille est représentée par le rôle protecteur des relations sociales. Comprendre cet aspect signifie déplacer le regard d'une logique purement négative, ce qui augmente les risques, vers une perspective active et constructive : ce qui les réduit. En ce sens, la sociabilité n'est pas seulement un facteur à surveiller lorsqu'elle fait défaut, mais une ressource biologique capable de moduler positivement la survie.

Les preuves longitudinales montrent clairement que les individus insérés dans des réseaux sociaux plus larges et structurés présentent une probabilité de survie plus élevée au fil du temps. Dans une cohorte de personnes âgées suivies pendant dix ans, la présence de relations sociales solides, en particulier des amitiés actives et fréquentes, est associée à une réduction significative du risque de décès, d'environ 22 % par rapport aux sujets les plus isolés (Giles et al., 2005) [32]. Cette donnée est particulièrement pertinente car elle émerge même après avoir pris en compte des variables telles que l'état de santé, les conditions fonctionnelles et les modes de vie, suggérant un effet direct des relations sociales sur la longévité.

Un aspect intéressant concerne la typologie des relations. Toutes les connexions sociales ne produisent pas le même effet. Les relations amicales, par exemple, semblent exercer un impact plus marqué que les liens familiaux. Ce phénomène peut être interprété en considérant la nature de ces rapports : les amitiés sont généralement basées sur le choix, la réciprocité et le partage, des éléments qui favorisent un soutien émotionnel authentique et une plus grande participation active à la vie sociale. À l'inverse, les liens familiaux, bien que fondamentaux, peuvent être influencés par des obligations ou des dynamiques plus complexes qui ne se traduisent pas toujours par un bénéfice direct pour la santé (Giles et al., 2005) [32].

Parallèlement, d'autres études soulignent que la protection associée à la sociabilité ne dépend pas exclusivement du nombre de relations, mais aussi de la structure du réseau social et du rôle que l'individu occupe en son sein. Une étude menée sur 1 174 personnes âgées résidant à Leganés, en Espagne, suivies pendant six ans, a montré qu'avoir une personne de confiance était associé à une réduction d'environ 25 % du risque de mortalité, indépendamment de diverses caractéristiques sociodémographiques et sanitaires (Rodriguez-Laso et al., 2007) [33]. La donnée ne semble cependant pas simplement attribuable au soutien émotionnel reçu : ce dernier, considéré séparément, n'était en effet pas associé à la survie. Ce qui émergeait avec plus de force, c'étaient plutôt les aspects structurels et participatifs des relations sociales. Le manque de participation sociale était associé à un risque de mortalité supérieur de 50 %, tandis que le maintien de rôles significatifs dans la vie des personnes proches était associé à une meilleure survie. Cela introduit une dimension particulièrement importante : le bénéfice des relations ne semble pas découler uniquement du fait de recevoir du soutien, mais aussi de se sentir impliqué, utile et participant à la vie des autres (Rodriguez-Laso et al., 2007) [33].

Un aspect particulièrement pertinent est que ces effets protecteurs persistent même après avoir pris en compte des facteurs cliniques et fonctionnels. Cela signifie que la sociabilité n'agit pas simplement comme un indicateur indirect de bonne santé, mais représente un déterminant indépendant de la survie. Même en présence de comorbidités ou de conditions de fragilité, maintenir des relations sociales actives continue d'offrir un avantage significatif.

Dans l'ensemble, un concept clé émerge : la sociabilité fonctionne comme un véritable « facteur protecteur systémique ». Les relations sociales agissent sur plusieurs niveaux simultanément : elles modulent le stress, influencent les comportements, soutiennent l'observance des traitements et contribuent au maintien de l'équilibre psychophysique. Cet effet intégré se traduit, à long terme, par une réduction concrète du risque de mortalité.

La vie sociale et autres facteurs de risque : une alimentation inadaptée

Si la sociabilité représente un déterminant direct de la santé et de la survie, l'un des aspects les plus pertinents concerne sa capacité à influencer d'autres facteurs de risque, en particulier ceux liés au mode de vie. Parmi ceux-ci, l'alimentation occupe une place centrale. Ce qui ressort avec une clarté croissante de la littérature, c'est que la qualité de l'alimentation ne dépend pas exclusivement de choix individuels ou de connaissances nutritionnelles, mais est profondément conditionnée par le contexte social dans lequel l'individu évolue.

Les preuves à grande échelle montrent que l'isolement social est systématiquement associé à des comportements alimentaires moins sains. Dans une analyse menée auprès de plus de 67 000 adultes européens, les individus socialement isolés présentent une probabilité significativement plus élevée de suivre un régime alimentaire inadéquat, caractérisé notamment par une consommation réduite de fruits et légumes (Delerue Matos et al., 2021) [34]. Cette donnée n'est pas isolée, mais apparaît de manière cohérente dans de nombreux contextes géographiques, suggérant un modèle stable et reproductible.

La relation entre sociabilité et alimentation semble encore plus évidente lorsque l'on analyse la qualité nutritionnelle du régime alimentaire. Les études indiquent que l'isolement social est associé à une augmentation significative du risque de carences en micronutriments essentiels, notamment le magnésium, le potassium, la vitamine B6, les folates et la vitamine C. Il s'agit de nutriments fondamentaux pour le bon fonctionnement du système immunitaire, cardiovasculaire et métabolique. Leur carence représente donc un mécanisme possible par lequel l'isolement social contribue au développement de pathologies chroniques (Steptoe et al., 2024) [35].

Un élément particulièrement intéressant est que cette association concerne principalement la dimension objective de la sociabilité, à savoir l'isolement, plutôt que la perception subjective de la solitude. En d'autres termes, ce n'est pas seulement le fait de se sentir seul qui influence l'alimentation, mais surtout le fait de vivre dans une condition de faible intégration sociale (Steptoe et al., 2024) [35]. Cela suggère que des facteurs concrets, tels que le manque de soutien pratique ou de contextes partagés, jouent un rôle déterminant.

À l'appui de cette interprétation, les études montrent que les individus socialement isolés ont une probabilité moindre de maintenir des comportements alimentaires sains dans le temps, notamment une consommation adéquate de fruits et légumes (Kobayashi & Steptoe, 2018) [36]. Cette donnée souligne comment la sociabilité n'influence pas seulement des choix épisodiques, mais contribue à structurer des habitudes alimentaires stables sur le long terme.

La relation entre isolement et alimentation ne se limite pas à la qualité nutritionnelle, mais implique également les modalités selon lesquelles la nourriture est consommée. Une revue systématique de la littérature souligne que la solitude et l'isolement sont associés à une réduction de la qualité globale de l'alimentation, à une moindre consommation d'aliments frais et à un recours accru aux aliments à haute densité énergétique (Hanna et al., 2023) [37]. Dans ce contexte, le repas perd sa dimension sociale et devient un acte fonctionnel ou, dans certains cas, un mécanisme de compensation émotionnelle.

Le concept de commensalité, c'est-à-dire le fait de manger ensemble, apparaît comme un élément clé pour comprendre ce phénomène. Le repas partagé ne représente pas seulement un moment nutritionnel, mais une expérience relationnelle qui structure le comportement alimentaire. Son absence peut se traduire par une moindre régularité des repas, une variété alimentaire réduite et une motivation moindre à préparer des repas équilibrés (Hanna et al., 2023) [37].

Un élément supplémentaire à prendre en compte est que l'isolement social est fréquemment associé à d'autres comportements malsains, créant un effet cumulatif. Des études sur des populations générales montrent que les individus isolés présentent simultanément une probabilité plus élevée d'alimentation malsaine, d'inactivité physique et d'autres facteurs de risque (Hämmig, 2019) [24]. Cela suggère que la sociabilité n'agit pas sur un seul comportement, mais influence l'ensemble du mode de vie.

D'un point de vue physiologique et comportemental, plusieurs mécanismes peuvent expliquer ces associations. Premièrement, le manque d'intégration sociale réduit l'exposition aux normes et modèles comportementaux sains, limitant le « contrôle social » qui guide souvent les choix quotidiens (Delerue Matos et al., 2021) [34]. Deuxièmement, l'absence de soutien pratique peut rendre plus difficile l'accès à une alimentation de qualité ou la préparation des repas. Enfin, la réduction des occasions de partage limite les opportunités de structurer des comportements alimentaires réguliers.

Dans l'ensemble, une vision intégrée émerge : l'alimentation n'est pas un comportement isolé, mais un phénomène profondément social. Les choix nutritionnels sont influencés par des relations, des contextes et des dynamiques d'interaction qui vont bien au-delà de la dimension individuelle.

Comprendre cette connexion signifie reconnaître qu'intervenir sur l'alimentation sans prendre en compte la sociabilité risque d'être partiel. Améliorer la qualité de l'alimentation ne signifie pas seulement fournir des indications nutritionnelles, mais aussi créer des conditions sociales favorables : relations, contextes partagés, soutien et intégration.

Dans cette perspective, la sociabilité devient un déterminant indirect mais puissant de l'alimentation, capable d'orienter les comportements quotidiens et, à travers eux, d'influencer profondément le risque métabolique et la santé sur le long terme.

La vie sociale et le tabagisme

Si l'alimentation représente l'un des principaux domaines dans lesquels la sociabilité exerce une influence indirecte mais profonde, le tabagisme constitue un exemple encore plus évident de la manière dont les comportements à risque peuvent être façonnés par le contexte relationnel. Contrairement au régime alimentaire, souvent perçu comme un choix quotidien lié à la connaissance et à la disponibilité de la nourriture, la consommation de tabac s'inscrit dans une dimension plus complexe, où des facteurs émotionnels, sociaux et neurobiologiques s'entremêlent étroitement.

Les données épidémiologiques montrent clairement que l'isolement social est associé à une probabilité accrue de fumer. Dans une population représentative de plus de 8 000 personnes âgées, les individus socialement isolés présentent une probabilité plus de deux fois supérieure d'être fumeurs, une augmentation qui dépasse cinq fois dans les cas d'isolement sévère (Gimm et al., 2023) [38]. Cette donnée suggère un effet dose-réponse particulièrement marqué : à mesure que l'isolement augmente, le risque d'adopter ce comportement augmente proportionnellement.

Ce lien ne se limite pas à la présence ou à l'absence du comportement, mais s'étend également à son intensité. Ces études indiquent que des niveaux plus élevés de solitude sont associés à une augmentation significative du nombre de cigarettes fumées quotidiennement (Yang et al., 2022) [39]. En d'autres termes, non seulement les personnes les plus isolées ont une plus grande probabilité d'être fumeuses, mais elles ont également tendance à fumer davantage, amplifiant ainsi davantage le risque.

Un aspect particulièrement intéressant concerne le rôle des comportements en tant que médiateurs entre l'isolement social et la mortalité. Chez les patients atteints de cardiopathie ischémique stable, le tabagisme apparaît comme l'un des principaux facteurs par lesquels une faible intégration sociale se traduit par une augmentation du risque de décès (Kreibig et al., 2014) [40]. Cette donnée est d'une grande pertinence car elle indique que la sociabilité n'agit pas seulement directement sur la physiologie, mais aussi indirectement, en modulant des comportements qui ont un impact concret sur la survie.

Pour comprendre cette relation, il est utile de considérer les mécanismes sous-jacents. L'un des plus pertinents est représenté par la fonction du tabagisme en tant que stratégie de coping (comportement ou pensée utilisé pour gérer le stress et s'adapter aux difficultés). Dans des conditions d'isolement, caractérisées par un stress, un ennui et un malaise émotionnel accrus, la consommation de nicotine peut devenir un outil d'autorégulation, utilisé pour moduler des états internes négatifs (Gimm et al., 2023) [38]. Cela explique pourquoi l'isolement est souvent associé à des niveaux plus élevés d'anxiété et de dépression, qui favorisent à leur tour le maintien du comportement.

À cela s'ajoute un second mécanisme lié à la réduction du contrôle social. En présence de relations actives, les comportements individuels sont souvent influencés, de manière plus ou moins explicite, par des normes partagées, des attentes et les retours des autres. L'absence de ce système de régulation peut faciliter l'adoption et le maintien de comportements à risque, comme le tabagisme (Gimm et al., 2023) [38]. En d'autres termes, lorsque le contexte social fait défaut, l'un des principaux freins comportementaux disparaît également.

Un élément supplémentaire concerne la possible bidirectionnalité de la relation. Le tabagisme, en effet, peut à son tour contribuer à l'isolement social, que ce soit pour des raisons liées à la stigmatisation ou en raison de la réduction progressive des interactions dans des contextes où la consommation de tabac est limitée ou socialement découragée. Cela crée un cercle vicieux dans lequel l'isolement et le tabagisme se renforcent mutuellement, rendant plus difficile l'interruption du comportement (Gimm et al., 2023) [38].

À un niveau plus profond, des études expérimentales suggèrent également une base neurobiologique à cette association. Des modèles animaux montrent que l'isolement social est capable d'altérer les systèmes de récompense, augmentant la sensibilité aux stimuli associés à la nicotine et facilitant la rechute (Mastrogiovanni et al., 2021) [41]. Dans ces conditions, ce n'est pas tant la substance en soi qui change, mais la manière dont le cerveau répond aux stimuli qui la rappellent, rendant le comportement plus automatique et difficile à contrôler.

Cette vulnérabilité accrue apparaît également clairement dans des contextes réels. Durant les périodes d'isolement forcé, comme le confinement lié à la pandémie de SARS-CoV-2, une part significative de fumeurs a augmenté sa consommation de cigarettes, avec des augmentations moyennes notables (Ferrante et al., 2020) [42]. Cette donnée confirme que la réduction des interactions sociales peut se traduire rapidement par une détérioration des comportements de santé.

Dans l'ensemble, le tableau qui émerge est cohérent et multidimensionnel. La sociabilité agit comme un facteur régulateur du comportement : lorsqu'elle est présente, elle contribue à limiter l'adoption de comportements à risque ; lorsqu'elle fait défaut, elle laisse place à des dynamiques qui favorisent l'instauration et le maintien de la dépendance.

Comprendre cette relation signifie reconnaître que le tabagisme n'est pas simplement un choix individuel ou une dépendance isolée, mais un comportement profondément influencé par le contexte social. Intervenir exclusivement sur le comportement individuel, sans considérer la dimension relationnelle, risque donc d'être insuffisant.

Dans cette perspective, la sociabilité devient un élément clé également dans les stratégies de prévention et de sevrage tabagique. Renforcer les réseaux sociaux, promouvoir l'intégration et réduire l'isolement ne représente pas seulement une intervention sur le bien-être psychologique, mais un levier concret pour modifier des comportements qui influent directement sur la santé et la survie.

La vie sociale et le manque d'observance thérapeutique

Un autre domaine, souvent moins visible mais tout aussi crucial, concerne l'observance thérapeutique. Dans ce cas, le problème ne réside pas tant dans l'adoption d'un comportement nuisible que dans le défaut d'exécution d'un comportement protecteur. Pourtant, les conséquences peuvent être tout aussi significatives, surtout chez les sujets atteints de pathologies chroniques.

Les preuves montrent de manière cohérente que l'isolement social est associé à une réduction significative de l'observance thérapeutique. Au sein de larges populations de personnes âgées souffrant de maladies chroniques, les individus socialement isolés présentent une probabilité plus élevée de ne pas suivre correctement les prescriptions médicamenteuses, compromettant ainsi l'efficacité des traitements (Lu et al., 2020) [43]. Cette donnée est particulièrement pertinente car elle touche à une dimension centrale de la médecine moderne : la capacité de transformer une thérapie prescrite en un bénéfice réel pour le patient.

La relation entre socialité et observance n'est cependant pas directe et linéaire, mais médiée par une série de facteurs psychosociaux. Parmi ceux-ci, le soutien social émerge comme un élément clé. Des études basées sur des modèles de médiation démontrent que l'isolement social réduit la disponibilité du soutien émotionnel, informatif et pratique, et que cette réduction représente le principal mécanisme par lequel survient le défaut d'observance (Lu et al., 2020) [43]. En d'autres termes, ce n'est pas simplement l'isolement en soi qui détermine le problème, mais ce qui vient à manquer lorsque les relations se réduisent.

Cette dynamique a également été confirmée par plusieurs études, qui montrent comment l'isolement social augmente la solitude au fil du temps et réduit progressivement le soutien social, avec un effet cumulatif négatif sur l'observance thérapeutique (Yu et al., 2024) [44]. Cette tendance suggère que le problème n'est pas statique, mais évolue dans le temps, devenant de plus en plus prégnant à mesure que l'isolement progresse.

Aux côtés du soutien social, la solitude représente un autre facteur critique. Contrairement à l'isolement, qui décrit une condition objective, la solitude reflète une perception subjective de déconnexion. Des études récentes indiquent que des niveaux élevés de solitude sont associés à une réduction de l'observance à long terme, avec des effets qui deviennent évidents surtout après des mois ou des années (Fan et al., 2024) [45]. Cela suggère que la dimension émotionnelle de la socialité peut influencer de manière progressive la motivation et la capacité à suivre une thérapie.

Un élément particulièrement intéressant concerne le rôle de l'auto-efficacité, c'est-à-dire la perception d'être capable de gérer correctement son propre traitement. Des études sur des patients hypertendus montrent que la solitude est associée à une réduction de l'auto-efficacité, tandis que le soutien social l'accroît (Hacihasanoglu Asilar et al., 2020) [46]. Cette donnée est fondamentale car l'observance thérapeutique ne dépend pas seulement de la compréhension des indications médicales, mais aussi de la confiance du patient dans ses propres capacités à les appliquer dans la vie quotidienne.

Dans ce contexte, le soutien social joue une fonction multiple. D'une part, il fournit une aide pratique, des rappels, une assistance dans la gestion des médicaments, un accompagnement aux visites médicales. D'autre part, il offre un soutien émotionnel qui réduit le stress et augmente la motivation. Cette double fonction fait des réseaux sociaux l'un des déterminants les plus importants de l'observance thérapeutique (Improta et al., 2026) [47].

Un aspect supplémentaire à considérer est que le défaut d'observance n'est pas un phénomène isolé, mais s'inscrit souvent dans un cadre plus large de comportements de santé défavorables. Comme observé précédemment pour le tabagisme et l'alimentation, l'isolement social tend ici aussi à générer un effet cumulatif, où différents facteurs de risque se renforcent mutuellement. Cela rend la prise en charge clinique particulièrement complexe, surtout chez les patients souffrant de multimorbidité.

Dans l'ensemble, un concept clé émerge : la thérapie médicamenteuse n'est pas un acte purement individuel, mais un comportement profondément influencé par le contexte social. Suivre une thérapie nécessite de l'organisation, de la motivation, du soutien et de la continuité, autant de dimensions facilitées ou entravées par la qualité des relations.

Comprendre cette relation signifie redéfinir le concept même d'observance. Il ne s'agit pas simplement de « prendre correctement ses médicaments », mais d'être inséré dans un système qui rend ce comportement possible dans la durée. En l'absence d'un tel système, même la meilleure thérapie risque de perdre son efficacité. Dans cette perspective, la socialité devient une composante intégrante du parcours thérapeutique. Intervenir sur l'observance signifie donc non seulement éduquer le patient, mais aussi renforcer ses réseaux relationnels, réduire l'isolement et promouvoir un contexte dans lequel le soin peut être réellement soutenu.

La vie sociale et la réduction de l'activité physique

Si l’alimentation, le tabagisme et l’observance thérapeutique représentent des domaines où la vie sociale module des comportements complexes, l’activité physique constitue probablement l’expression la plus immédiate et la plus visible de cette influence. Le mouvement, en effet, n’est pas seulement une fonction biologique, mais un comportement profondément intégré au contexte social : il naît souvent d’occasions d’interaction, de partage et de participation. Lorsque ces dimensions viennent à manquer, le niveau d’activité a également tendance à diminuer de manière significative.

Les preuves montrent de manière cohérente que l’isolement social est associé à une diminution de l’activité physique et à une augmentation de la sédentarité. Des études basées sur des mesures objectives par accéléromètres mettent en évidence que les individus socialement isolés présentent des niveaux significativement inférieurs d’activité physique totale et passent plus de temps dans des conditions de sédentarité, indépendamment de facteurs tels que l’âge, l’état de santé ou les conditions socio-économiques (Schrempft et al., 2019) [48]. Cette donnée est particulièrement pertinente car elle indique un effet direct de la vie sociale sur le comportement moteur, non médié exclusivement par des conditions cliniques ou des limitations fonctionnelles.

Un aspect intéressant concerne la distinction entre isolement social et solitude. Alors que le premier, entendu comme une condition objective de réseau relationnel réduit, montre une association claire avec la réduction de l’activité physique, la solitude ressentie ne présente pas toujours la même relation (Schrempft et al., 2019) [48]. Cela suggère que la présence concrète de relations et de contextes sociaux représente un stimulus direct au mouvement, indépendamment de la perception subjective.

Toutefois, lorsque l’on analyse la dimension longitudinale, le rôle de la solitude en tant que facteur prédictif émerge également. Des études prospectives démontrent que les individus qui connaissent des niveaux plus élevés de solitude ont une probabilité significativement plus faible de pratiquer une activité physique dans les années qui suivent et une plus grande tendance à devenir sédentaires (Hawkley et al., 2009) [49]. Cette donnée souligne comment la dimension émotionnelle de la déconnexion sociale peut influencer progressivement le comportement, en réduisant la motivation et la capacité à maintenir un mode de vie actif.

À côté de ces données, le rôle protecteur du bien-être social émerge avec force. Des niveaux plus élevés de soutien social et de participation active à la vie communautaire sont associés à une réduction significative du temps passé en activité sédentaire et à une augmentation des niveaux d’activité physique, même légère (Chen et al., 2021) [51]. Cet effet est particulièrement évident dans les tranches d’âge les plus avancées, suggérant qu’avec l’avancée en âge, la vie sociale devient un facteur de plus en plus déterminant pour maintenir un mode de vie actif.

Cette relation émerge de manière transversale également chez les populations plus jeunes. Des études menées sur des étudiants universitaires montrent que des niveaux élevés de solitude sont associés à une plus grande probabilité d’inactivité physique et à une plus grande présence de comportements sédentaires (Jiang et al., 2024) [50]. Cela suggère que l’influence de la vie sociale sur l’activité physique ne se limite pas au grand âge, mais se distribue tout au long du cycle de vie.

Pour comprendre ces résultats, il est utile de considérer les mécanismes sous-jacents. D’un côté, la vie sociale crée des opportunités concrètes de mouvement : sortir, se rencontrer, participer à des activités de groupe implique inévitablement une augmentation de l’activité physique. De l’autre, elle agit au niveau motivationnel et émotionnel. La présence de relations favorise le partage d’objectifs, le soutien mutuel et la continuité des comportements dans le temps.

Un élément particulièrement pertinent concerne le rôle de la régulation émotionnelle. Des études à l’appui indiquent que la solitude peut réduire la capacité à moduler les états émotionnels, rendant plus difficile le maintien de comportements sains comme l’activité physique (Hawkley et al., 2009) [49]. Dans ce contexte, le mouvement perd sa dimension de gratification et devient plus difficile à soutenir dans la durée.

Dans l’ensemble, un tableau cohérent émerge : la vie sociale non seulement facilite l’activité physique, mais en représente l’un des principaux déterminants. Son absence, au contraire, favorise l’inactivité et la sédentarité, deux conditions étroitement associées à une augmentation du risque métabolique, cardiovasculaire et systémique. Comprendre cette relation signifie reconnaître que promouvoir l’activité physique ne peut se limiter à des indications individuelles ou à des programmes structurés. Il est nécessaire d’intervenir également sur le contexte social, en créant des conditions qui favorisent la participation, l’intégration et le partage.

Dans cette perspective, le mouvement n’est pas seulement un comportement biologique, mais un phénomène social. Et, en tant que tel, il dépend en grande partie de la qualité des relations qui entourent l’individu.

La solitude et le métabolisme de l'insuline

Si, dans les paragraphes précédents, la sociabilité est apparue comme un déterminant des comportements de santé, dans le cas du métabolisme insulinique, le niveau de profondeur change radicalement. Ici, il ne s'agit plus seulement de choix ou d'habitudes, mais de véritables mécanismes biologiques qui relient directement la dimension relationnelle au fonctionnement cellulaire. La solitude et l'isolement social, en effet, ne se limitent pas à influencer indirectement le risque métabolique, mais semblent agir directement sur les processus qui régulent la glycémie et la sensibilité à l'insuline.

Les preuves épidémiologiques les plus larges montrent que la dimension sociale représente un déterminant indépendant de l'insulinorésistance. Dans une cohorte de plus de 117 000 individus, un faible soutien social est significativement associé à une augmentation du risque d'insulinorésistance, avec des valeurs presque triplées par rapport aux sujets ayant des réseaux sociaux plus solides (Riutord-Sbert et al., 2025) [52]. Cette donnée est particulièrement pertinente car elle émerge même après avoir contrôlé les facteurs traditionnels tels que l'alimentation, l'activité physique et le tabagisme, suggérant un effet direct de la sociabilité sur le métabolisme glucidique.

Cette association s'inscrit dans un cadre plus large de dérégulation métabolique. Les études indiquent que des niveaux plus élevés et stables d'intégration sociale sont associés à une réduction significative du risque d'altérations métaboliques, notamment l'obésité abdominale, l'hypertension et les dysfonctions glycémiques (Yang et al., 2013) [53]. À l'inverse, la réduction des relations sociales se traduit par une augmentation de la charge métabolique globale, soulignant comment la sociabilité agit comme un véritable régulateur systémique.

Un élément particulièrement important concerne la dimension subjective de la solitude. Des études à ce sujet montrent que la solitude est associée à une aggravation progressive de plusieurs biomarqueurs métaboliques, dont l'hémoglobine glyquée, l'indice de masse corporelle et la charge métabolique globale (Shiovitz-Ezra et Parag, 2019) [54]. En termes pratiques, cela signifie que les individus isolés ont une probabilité jusqu'à 70 % plus élevée de développer des conditions métaboliques défavorables au fil du temps.

Cet effet devient encore plus évident lorsque la solitude est associée à d'autres facteurs psychologiques, comme la dépression. Dans ces conditions, le risque métabolique augmente de manière significative, contribuant au développement de multimorbidités (de la Torre-Luque et al., 2021) [55]. Cela suggère que la solitude n'agit pas de manière isolée, mais s'insère dans un réseau de facteurs psychosociaux qui amplifient le risque biologique.

D'un point de vue physiologique, l'un des premiers signaux de cette altération concerne la glycémie. Des études longitudinales montrent que l'augmentation du stress et de l'isolement social est associée à une augmentation progressive de la glycémie à jeun, indépendamment de facteurs tels que l'âge et l'indice de masse corporelle (Fang et al., 2024) [56]. Cette donnée est particulièrement significative car la glycémie à jeun représente l'un des premiers indicateurs de dysfonction métabolique.

À un niveau encore plus profond, des études expérimentales permettent d'observer directement les mécanismes biologiques impliqués. Des modèles animaux démontrent que l'isolement social est capable de compromettre la sensibilité à l'insuline tant au niveau central que périphérique, même en l'absence d'altérations évidentes de la glycémie (Bove et al., 2022) [57]. Dans ces modèles, l'isolement induit une augmentation de l'indice HOMA, indicateur d'une insulinorésistance précoce, accompagnée d'altérations de la signalisation insulinique dans des tissus clés comme le cerveau et le foie.

Un élément central de ce processus est représenté par le stress oxydatif. L'isolement social entraîne une augmentation des espèces réactives de l'oxygène et un déséquilibre dans les systèmes antioxydants, avec pour conséquence des dommages au niveau hépatique et une altération des voies de signalisation insulinique (Bove et al., 2022) [57]. Ce mécanisme suggère que le stress psychosocial peut se traduire par une altération concrète de la fonction cellulaire, anticipant le développement de pathologies métaboliques.

Dans l'ensemble, il émerge un modèle intégré dans lequel la solitude et l'isolement social agissent par le biais de plusieurs voies simultanées. D'un côté, ils influencent les comportements de santé, comme l'alimentation et l'activité physique ; de l'autre, ils activent directement des systèmes biologiques liés au stress, à l'inflammation et au métabolisme énergétique.

Comprendre cette relation signifie reconnaître que l'insuline n'est pas régulée exclusivement par des facteurs nutritionnels ou génétiques, mais aussi par des variables relationnelles. La qualité des connexions sociales devient ainsi partie intégrante de la régulation métabolique.

Dans cette perspective, la solitude peut être interprétée comme un facteur de stress chronique capable d'altérer progressivement l'équilibre physiologique, tandis que la sociabilité représente un facteur protecteur capable de maintenir la stabilité des systèmes biologiques.

Le message qui émerge est clair : le métabolisme n'est pas un système isolé, mais profondément interconnecté avec l'environnement social. Et, parmi tous les facteurs qui l'influencent, les relations humaines représentent l'un des plus puissants et, en même temps, l'un des plus sous-estimés.

La solitude et le cortisol

Si la relation entre solitude et insuline souligne comment les facteurs sociaux peuvent influencer directement le métabolisme, le lien avec le cortisol représente le passage physiologique qui rend cette connexion possible. Le cortisol est, en effet, l’hormone clé de la réponse au stress et constitue l’un des principaux médiateurs par lesquels les expériences psychosociales sont traduites en signaux biologiques.

D’un point de vue physiologique, tout converge vers un système central : l’axe hypothalamo-hypophyso-surrénalien (HPA). Cet axe régule la production de cortisol et s’active chaque fois que l’organisme perçoit une menace. Chez les espèces sociales, dont l’être humain, l’isolement et la solitude représentent précisément ce type de signal : une condition interprétée par le cerveau comme potentiellement dangereuse pour la survie (Hawkley et al., 2012) [58]. En réponse, l’organisme active une cascade neuroendocrinienne qui conduit à l’augmentation des glucocorticoïdes.

À court terme, cette réponse a une valeur adaptative : elle mobilise l’énergie, module l’inflammation et prépare l’organisme à affronter le stress. Cependant, lorsque la solitude devient chronique, ce système perd sa fonction régulatrice et subit une véritable dérégulation. On observe des altérations des rythmes circadiens du cortisol (variation journalière du cortisol selon le cycle veille-sommeil), avec des modifications de la réponse au réveil et de la pente diurne (Hawkley et al., 2012) [58].

Les preuves chez l’homme confirment ce modèle. Des études sur de jeunes adultes montrent que des niveaux plus élevés de solitude sont associés à une production totale de cortisol plus importante au cours de la journée et à une altération de son rythme circadien (Lai et al., 2019) [59]. De manière analogue, d’autres travaux mettent en évidence une combinaison de réponse au réveil atténuée et d’augmentation de la sécrétion globale, suggérant une condition de stress chronique avec perte de la régulation physiologique de l’axe HPA (Lai et al., 2018) [60].

Ce schéma émerge dès les phases les plus précoces de la vie. Durant la transition vers l’âge adulte, une augmentation de la solitude est associée à une modification de la pente diurne du cortisol, indicative d’une réponse au stress moins efficace (Drake et al., 2016) [61]. Il est intéressant de noter que, dans ce contexte, des facteurs psychologiques comme la capacité de coping (faire face) peuvent atténuer ces altérations, suggérant que la réponse biologique au stress n’est pas rigide, mais modulable.

Parallèlement, des études sur des adultes d’âge moyen montrent que la solitude est associée à une plus grande réactivité du cortisol au stress, en particulier lors de la phase de réveil (Steptoe et al., 2004) [62]. Cette donnée indique une condition d’hyperactivation du système de réponse au stress, qui, avec le temps, peut contribuer au développement de pathologies chroniques.

Un élément particulièrement pertinent concerne l’interaction entre solitude et stress quotidien. Les preuves montrent que la solitude n’agit pas seulement comme un facteur indépendant, mais amplifie la réponse physiologique aux événements stressants. Chez les sujets plus isolés, les difficultés quotidiennes s’associent à des augmentations plus marquées du cortisol, soulignant une plus grande vulnérabilité biologique (Lai et al., 2019) [59]. En d’autres termes, la solitude rend l’organisme plus sensible au stress.

À long terme, cette hyperactivation chronique se traduit par une augmentation de ce que l’on appelle la charge allostatique, c’est-à-dire l’usure progressive des systèmes biologiques due à l’exposition prolongée au stress. La solitude est en effet associée à une activation persistante de l’axe HPA, à des niveaux élevés de cortisol et à une sensibilité réduite aux glucocorticoïdes, entraînant une compromission des mécanismes de rétroaction (Warren, 2025) [63]. Cet état de dérégulation représente l’un des principaux ponts entre stress psychosocial et maladie.

À côté de la quantité de relations, le rôle de leur qualité émerge également. Des études sur les personnes âgées montrent que ce n’est pas tant le nombre de contacts sociaux qui influence le cortisol, mais la capacité à cultiver activement les relations. Les individus les plus impliqués dans le maintien de leurs liens présentent un profil circadien plus efficace, caractérisé par des niveaux plus bas de cortisol et un déclin diurne plus marqué (Lai et al., 2012) [64]. Cela suggère que la socialité n’est pas seulement présence, mais participation active.

Dans l’ensemble, un modèle clair et cohérent émerge. La solitude active l’axe du stress, augmentant la production de cortisol ; lorsque cette condition persiste, le système perd sa capacité d’autorégulation, générant un état d’hyperactivation chronique. Cet état, à son tour, influence d’autres systèmes physiologiques, notamment les systèmes immunitaire et métabolique.

Comprendre ce mécanisme est fondamental car le cortisol représente l’un des principaux points de connexion entre l’esprit et le corps. C’est par cette hormone que des expériences apparemment « immatérielles », comme la qualité des relations, deviennent des signaux biologiques concrets.

Dans cette perspective, la solitude ne peut plus être considérée seulement comme une condition émotionnelle, mais comme un facteur de stress chronique capable d’altérer profondément l’équilibre physiologique. À l’inverse, la socialité agit comme un régulateur naturel du système du stress, contribuant à maintenir la stabilité de l’organisme. Le résultat est une vision intégrée dans laquelle les relations humaines ne représentent pas un élément accessoire de la vie, mais l’un des principaux modulateurs des systèmes biologiques qui déterminent la santé et la maladie.

Le cortisol et REDD1

Le stress chronique et l’excès de cortisol n’affectent pas seulement l’esprit, ils altèrent directement le métabolisme. Par l’intermédiaire de médiateurs comme REDD1, le signal de stress interfère avec la voie de l’insuline, réduisant progressivement la sensibilité cellulaire à cette hormone. C’est ici que la réponse biologique au stress peut se transformer en insulinorésistance, en altérations glycémiques et en dysfonctionnements métaboliques chroniques.

Comprendre le lien entre le cortisol et REDD1 signifie donc pénétrer au cœur du mécanisme par lequel le stress chronique modifie le métabolisme, la croissance cellulaire et, en fin de compte, l’état de santé de l’organisme.

D’un point de vue moléculaire, l’étape clé est représentée par l’activation du récepteur des glucocorticoïdes. Lorsque le cortisol augmente, comme c’est le cas dans des conditions de stress chronique ou de solitude, il se lie à ce récepteur et active sa fonction transcriptionnelle, induisant l’expression de gènes spécifiques sensibles au stress. Parmi ceux-ci, REDD1 apparaît comme l’un des plus pertinents (Koyanagi et Arimura, 2020) [65].

REDD1, comme nous l’avons déjà vu au chapitre 4 consacré à la voie de l’insuline, est une protéine hautement conservée qui est rapidement induite en réponse à diverses formes de stress, notamment l’hypoxie, les dommages à l’ADN et, surtout, l’exposition aux glucocorticoïdes (Canal et al., 2014) [66]. Cet élément est fondamental car il place REDD1 comme un véritable capteur cellulaire du stress : chaque fois que le système perçoit une menace prolongée, son expression augmente.

Les preuves expérimentales démontrent directement ce lien. L’exposition à des glucocorticoïdes synthétiques, comme la dexaméthasone, entraîne une augmentation rapide et significative de l’expression de REDD1 dans divers tissus, notamment le muscle squelettique et les cellules immunitaires (Wang et al., 2006) [67]. Cette augmentation n’est pas un phénomène secondaire, mais représente une étape clé par laquelle les glucocorticoïdes exercent leurs effets cataboliques (effets qui favorisent la dégradation des réserves de l’organisme).

Le rôle fonctionnel de REDD1 apparaît clairement lorsque l’on analyse sa cible principale : la voie mTOR. Cette voie représente l’un des systèmes centraux de régulation de la croissance cellulaire, de la synthèse protéique et du métabolisme énergétique. Dans des conditions physiologiques, mTOR favorise la construction et le maintien des tissus ; au contraire, lorsqu’elle est inhibée, l’organisme entre dans un mode d’économie d’énergie et de catabolisme.

REDD1 agit exactement à ce niveau. Une fois induit par les glucocorticoïdes, il inhibe la signalisation mTOR par l’activation du complexe de la sclérose tubéreuse TSC1/TSC2 et l’inactivation conséquente d’un activateur direct de mTOR. Cela conduit à une réduction de la phosphorylation des principales cibles de mTOR et donc à une diminution de la synthèse protéique (Wang et al., 2006) [67].

Ce mécanisme a également été confirmé par des études indépendantes, qui identifient REDD1 comme un puissant régulateur négatif de la voie mTOR en réponse au stress cellulaire (Corradetti et al., 2005) [68]. En d’autres termes, REDD1 représente le point où le signal de stress se traduit par une modification concrète du métabolisme cellulaire.

Les implications de ce processus sont profondes. Dans des conditions de stress aigu, l’inhibition temporaire de mTOR peut avoir une signification adaptative : elle réduit la consommation énergétique et favorise des processus de survie, comme l’autophagie, qui permet à la cellule d’éliminer les composants endommagés et de recycler les ressources (Molitoris et al., 2011) [69]. Dans ce contexte, REDD1 joue un rôle protecteur.

Cependant, lorsque l’activation du système devient chronique, comme c’est le cas en présence de stress persistant ou de solitude prolongée, cet équilibre se rompt. L’expression continue de REDD1 maintient mTOR dans un état d’inhibition persistante, favorisant les processus cataboliques au détriment des processus anaboliques. Cela se traduit par une perte de masse musculaire, une réduction de la synthèse protéique et des altérations métaboliques plus larges.

Des modèles expérimentaux confirment ce scénario. Dans des conditions de stress chronique, caractérisées par des niveaux élevés de cortisol, on observe une augmentation de l’expression de REDD1 associée à une activation des voies cataboliques et à une suppression de la signalisation IGF-1/AKT/mTOR (Batsukh et al., 2023) [70]. Ce déséquilibre représente l’un des mécanismes principaux par lesquels le stress chronique contribue à la détérioration de la fonction musculaire et métabolique.

Un élément supplémentaire émerge de l’analyse du système nerveux central. Des études expérimentales démontrent que l’hypercortisolisme chronique est associé à une augmentation de l’expression de REDD1 dans le cerveau, accompagnée d’une réduction de la signalisation AKT-mTOR et d’une augmentation de la protéolyse (processus de dégradation des protéines) (Nipu et al., 2022) [71]. Cela suggère que les effets du stress ne se limitent pas aux tissus périphériques, mais impliquent également directement la régulation énergétique centrale.

Dans l’ensemble, un modèle intégré et cohérent émerge. Le cortisol, produit en réponse à la solitude et au stress chronique, active le récepteur des glucocorticoïdes et induit l’expression de REDD1. Ce dernier, à son tour, inhibe la voie mTOR, déplaçant l’équilibre cellulaire d’un état anabolique vers un état catabolique.

Cette étape représente l’un des points les plus critiques de la physiologie du stress, car elle relie directement une expérience psychosociale, comme la solitude, à une modification structurelle du métabolisme cellulaire énergétique. Il ne s’agit plus d’une influence indirecte, mais d’une véritable voie biologique.

Dans cette perspective, REDD1 peut être considéré comme un « traducteur moléculaire » du stress : il transforme des signaux environnementaux et relationnels en modifications concrètes de la fonction cellulaire. Lorsque ce système est activé de manière aiguë, il favorise l’adaptation ; lorsqu’il devient chronique, il contribue au dysfonctionnement et à la maladie.

Le résultat final est une vision profondément intégrée de la physiologie humaine, dans laquelle l’esprit, les relations et la biologie cellulaire ne sont pas des éléments séparés, mais les parties d’un système unique et interconnecté.

REDD1 et mTOR

Si REDD1 représente le point de traduction moléculaire du stress, sa relation avec mTOR constitue l'un des nœuds centraux par lesquels ce signal se transforme en une modification concrète du métabolisme cellulaire. Pour comprendre ce passage, il est nécessaire de partir d'un principe fondamental : mTOR, comme nous l'avons déjà vu dans le chapitre 4 consacré à la voie de l'insuline, n'est pas simplement une protéine, mais un véritable régulateur de la croissance, de la synthèse protéique et de l'équilibre énergétique de la cellule. Lorsque mTOR est actif, la cellule croît, synthétise des protéines et consomme de l'énergie ; lorsqu'il est inhibé, le système passe en mode économie, ralentissant les processus anaboliques.

Dans ce contexte, REDD1 s'insère comme l'un des principaux régulateurs négatifs de mTOR, agissant comme un véritable interrupteur moléculaire sensible au stress. De nombreuses preuves démontrent que l'induction de REDD1 conduit à une suppression directe de l'activité de mTORC1, avec pour conséquence une réduction de la phosphorylation de ses principales cibles, fondamentales pour la synthèse protéique (Brugarolas et al., 2004) [72].

Le mécanisme par lequel cela se produit est extrêmement raffiné. REDD1 n'agit pas directement sur mTOR, mais module un système régulateur en amont, représenté par le complexe TSC1/TSC2. Dans des conditions physiologiques, les signaux de croissance activent AKT, qui inhibe TSC2, permettant à mTOR de rester actif. Cependant, lorsque REDD1 est induit, cet équilibre s'inverse : la protéine réactive le complexe TSC1/TSC2 et détermine ainsi l'inhibition de mTOR (DeYoung et al., 2008) [73].

Ce passage représente un véritable point de contrôle métabolique. REDD1 fonctionne comme un capteur qui intercepte les signaux de stress, d'hypoxie, de dommages cellulaires, de glucocorticoïdes et les convertit en une réponse adaptative : éteindre mTOR pour réduire la consommation énergétique et favoriser la survie cellulaire (Kim et al., 2023) [74]. En d'autres termes, lorsque les ressources deviennent limitées ou que l'environnement devient hostile, la cellule interrompt les processus de croissance pour préserver l'énergie.

Les preuves expérimentales confirment directement cette relation. Dans des cellules de myélome multiple résistantes, l'induction de REDD1 est associée à une déphosphorylation rapide de S6K (enzyme activée principalement par mTORC1 qui contribue à réguler la synthèse des protéines et la croissance cellulaire) et à une réduction de la taille cellulaire, signes typiques de la suppression de la voie mTORC1 (Decaux et al., 2010) [75]. Cette donnée démontre que l'activation de REDD1 n'est pas un phénomène théorique, mais se traduit par des modifications concrètes de la physiologie cellulaire.

Un aspect particulièrement intéressant est que ce mécanisme peut revêtir une double signification biologique. Dans des conditions aiguës, l'inhibition de mTOR médiée par REDD1 représente une réponse protectrice : elle réduit la consommation énergétique, active l'autophagie et permet à la cellule de s'adapter au stress. Cela est évident, par exemple, dans les contextes d'hypoxie, où la suppression de mTOR permet à la cellule de survivre dans des conditions de faible disponibilité en oxygène (DeYoung et al., 2008) [73].

Cependant, lorsque ce système reste actif de manière chronique, le tableau change radicalement. L'inhibition persistante de mTOR conduit à une réduction prolongée de la synthèse protéique, à une augmentation de l'autophagie et à une prévalence des processus cataboliques. Cela peut se traduire par une perte de masse musculaire, une dysfonction métabolique et une altération de la capacité régénératrice des tissus.

Les implications de ce mécanisme apparaissent clairement aussi dans des contextes pathologiques. Des études sur des modèles de fibrose hépatique montrent que la surexpression de REDD1 atténue l'activation de la voie PI3K/AKT/mTOR, réduisant la prolifération cellulaire et le dépôt de matrice extracellulaire (Li et al., 2025) [76]. Dans ce cas, l'inhibition de mTOR joue un rôle protecteur, limitant la progression de la maladie.

À l'inverse, dans d'autres contextes, comme les dommages pulmonaires induits par le tabagisme, l'activation de REDD1 et l'inhibition de mTOR qui en résulte contribuent à l'augmentation du stress oxydatif, à l'inflammation et à l'apoptose cellulaire (Yoshida et al., 2010) [77]. Cela souligne un concept fondamental : le rapport entre REDD1 et mTOR n'est pas intrinsèquement « bon » ou « mauvais », mais dépend du contexte et de la durée de l'activation.

Dans l'ensemble, un modèle extrêmement cohérent émerge. REDD1 représente un capteur du stress qui, par l'activation du complexe TSC1/TSC2, inhibe mTOR et fait passer la cellule d'un état anabolique à un état catabolique. Ce passage permet une adaptation rapide aux conditions adverses, mais, s'il est maintenu dans le temps, il peut contribuer à la dysfonction et à la maladie.

Comprendre cet équilibre est fondamental car mTOR représente l'un des principaux régulateurs de la longévité cellulaire et du métabolisme systémique. Sa modulation par REDD1 constitue donc l'un des points de connexion les plus profonds entre l'environnement, le stress et la biologie cellulaire.

Dans cette perspective, la relation REDD1–mTOR n'est pas simplement une voie biochimique, mais un véritable système d'adaptation évolutive : un mécanisme qui permet à l'organisme de survivre au stress, mais qui, s'il est activé de manière chronique, peut devenir l'un des principaux moteurs de la dysfonction métabolique.

Inhibition de mTOR et insulinorésistance

Si le rapport entre REDD1 et mTOR représente le point de jonction entre le stress et la régulation cellulaire, c'est précisément dans l'inhibition de mTOR qui en découle que se manifeste l'un des effets métaboliques les plus significatifs : le développement de l'insulinorésistance. Cette étape boucle la boucle physiologique entamée avec la solitude et le stress, montrant comment un signal initialement psychosocial peut se traduire par une dysfonction métabolique systémique.

Les preuves expérimentales démontrent clairement que l'inhibition de mTOR, qu'elle soit aiguë ou chronique, compromet profondément la sensibilité à l'insuline. Des études in vivo montrent que le blocage pharmacologique de la kinase mTOR induit rapidement une insulinorésistance systémique, accompagnée d'une intolérance au glucose et d'une altération de l'utilisation des substrats énergétiques (Kleinert et al., 2014) [78]. Cette donnée est particulièrement significative car elle souligne que la fonction de mTOR n'est pas accessoire, mais centrale dans la régulation du métabolisme glucidique.

Un élément clé de ce processus est représenté par le rôle différentiel des deux complexes mTORC1 et mTORC2. Si mTORC1 est principalement impliqué dans la croissance cellulaire et la synthèse protéique, mTORC2 joue un rôle essentiel dans la régulation de la signalisation insulinique. L'inhibition de mTORC2 entraîne une réduction de la phosphorylation d'AKT, l'un des principaux médiateurs de l'action de l'insuline, déterminant ainsi une capacité réduite des cellules à répondre au stimulus insulinique (Lamming et al., 2012) [79].

Cette distinction est fondamentale pour comprendre la nature de l'insulinorésistance induite par l'inhibition de mTOR. Il ne s'agit pas simplement d'une réduction de la sensibilité périphérique, mais d'une altération directe de la cascade de signalisation insulinique. En l'absence d'une activation correcte d'AKT, des processus essentiels tels que la translocation des transporteurs GLUT4 et l'absorption du glucose dans les tissus périphériques sont compromis.

Les preuves au niveau tissulaire confirment ce mécanisme. Dans le muscle squelettique, principal site de captation du glucose, l'inhibition chronique de mTOR entraîne une réduction significative de l'absorption glucidique, associée à une altération de la voie AKT-AS160 et à une diminution de l'expression et de la translocation de GLUT4 (Deblon et al., 2012) [80]. Cela se traduit par une capacité réduite du muscle à utiliser le glucose, contribuant directement à l'insulinorésistance systémique.

Un tableau analogue émerge également dans le tissu adipeux humain. Des études sur des adipocytes matures démontrent que la rapamycine (un médicament agissant comme inhibiteur de mTOR) réduit significativement l'absorption de glucose, aussi bien dans des conditions basales qu'après stimulation insulinique, par le biais d'une réduction de la phosphorylation d'AKT et d'autres médiateurs clés de la signalisation insulinique (Pereira et al., 2012) [81]. Cette donnée est particulièrement pertinente car elle confirme que l'effet n'est pas limité aux modèles animaux, mais se manifeste également dans les tissus humains.

Outre les altérations périphériques, une implication de la fonction pancréatique apparaît également. L'inhibition chronique de mTORC1 par la rapamycine entraîne une réduction de la masse des cellules β pancréatiques, une diminution du contenu en insuline et une altération de la sécrétion insulinique (Yang et al., 2012) [82]. Dans ce cas, l'insulinorésistance s'associe à une disponibilité réduite en insuline, créant une condition métabolique particulièrement défavorable.

Cet ensemble de preuves clarifie un concept fondamental : l'inhibition de mTOR n'agit pas sur un seul niveau, mais implique simultanément plusieurs compartiments physiologiques. D'un côté, elle réduit la capacité des tissus périphériques à répondre à l'insuline ; de l'autre, elle compromet la production même de l'hormone. Le résultat est une dysfonction intégrée de l'homéostasie glucidique.

Un aspect particulièrement intéressant concerne la dimension temporelle de ces effets. L'inhibition aiguë de mTOR peut entraîner des altérations rapides mais réversibles de la sensibilité à l'insuline, tandis que l'inhibition chronique conduit à des modifications structurelles plus profondes, comme la réduction de la masse des cellules β et la réorganisation des voies métaboliques (Yang et al., 2012) [82]. Cela suggère que la durée de l'exposition représente un élément critique dans la transition de l'adaptation à la dysfonction.

Dans l'ensemble, un modèle cohérent et multiniveau émerge. L'inhibition de mTOR, initialement activée comme réponse adaptative au stress, peut avec le temps se transformer en un facteur pathogénique, contribuant au développement de l'insulinorésistance et des altérations glycémiques.

Dans cette perspective, la voie cortisol/REDD1/mTOR/insulinorésistance représente l'une des connexions les plus profondes entre l'environnement, le stress et le métabolisme. Ce qui commence comme une réponse protectrice, visant à réduire l'activité anabolique dans des conditions défavorables, peut, s'il est prolongé dans le temps, compromettre l'équilibre métabolique.

Le résultat final est une vision intégrée dans laquelle la régulation de l'insuline ne dépend pas exclusivement des nutriments ou des gènes, mais aussi de signaux cellulaires modulés par le stress et la qualité des relations. En ce sens, l'insulinorésistance n'est pas seulement une condition métabolique, mais l'expression finale d'un système complexe où la biologie et l'environnement sont profondément interconnectés.

Conclusions

Dans l'ensemble, les preuves analysées montrent que la sociabilité ne représente pas seulement une dimension psychologique de l'existence, mais une composante profondément ancrée dans la biologie humaine. Les études épidémiologiques associent des relations sociales solides à une meilleure survie, tandis que l'isolement et la solitude, surtout lorsqu'ils sont persistants, s'accompagnent d'une augmentation de la mortalité et du risque cardiovasculaire.

Cette relation trouve une explication évolutive dans l'organisation même du cerveau humain : la vie dans des groupes complexes a favorisé le développement de capacités cognitives dédiées à la coopération, à la communication et à la gestion des relations. Les observations sur les sociétés de chasseurs-cueilleurs renforcent cette perspective, en montrant comment le partage des ressources, l'apprentissage social et les réseaux étendus ont représenté des outils fondamentaux d'adaptation et de survie.

La vulnérabilité à la déconnexion émerge dès les premières phases de la vie : l'isolement durant l'enfance et l'adolescence a été associé, dans les études rapportées, à une inflammation accrue, à un risque cardiovasculaire, à l'obésité et à des altérations métaboliques dans les années suivantes. Les relations sociales semblent donc laisser une véritable empreinte biologique au fil du temps. Les effets deviennent encore plus évidents en observant les comportements quotidiens.

L'isolement est associé à une qualité alimentaire inférieure, à un risque accru de carences nutritionnelles, à une augmentation du tabagisme, à une moindre observance des traitements et à une réduction de l'activité physique. La sociabilité peut donc influencer indirectement la santé en modulant de nombreux facteurs de risque simultanément.

L'étape suivante nous mène cependant au-delà du comportement, directement vers le métabolisme. Les preuves rapportées lient un faible soutien social et la solitude à un risque accru d'insulinorésistance, à des altérations de la glycémie et à une dégradation de plusieurs indicateurs métaboliques. Les modèles expérimentaux suggèrent en outre des altérations de la sensibilité insulinique centrale et périphérique, accompagnées d'un stress oxydatif et de modifications de la signalisation insulinique. C'est à ce stade qu'apparaît le possible pont biologique avec le stress.

La solitude persistante peut altérer l'axe hypothalamo-hypophyso-surrénalien et la régulation circadienne du cortisol, transformant une réponse initialement adaptative en une condition de stress chronique. Le cortisol, par l'intermédiaire du récepteur des glucocorticoïdes, induit alors l'expression de REDD1, une protéine sensible au stress capable d'intervenir directement sur la régulation métabolique cellulaire. REDD1, via TSC1/TSC2, réduit en effet l'activité de mTOR, déplaçant temporairement la cellule de l'anabolisme vers un mode d'économie d'énergie et d'adaptation.

Si elle est transitoire, cette réponse peut s'avérer fonctionnelle pour la survie ; si elle est persistante, elle peut en revanche favoriser le catabolisme, la réduction de la synthèse protéique et des altérations métaboliques. Les preuves sur l'inhibition prolongée de mTOR complètent le parcours : la compromission de mTORC2 peut réduire l'activation d'AKT, interférer avec la voie AKT-AS160-GLUT4 et diminuer la captation du glucose, tandis que l'inhibition chronique peut également affecter la fonction des cellules β pancréatiques.

Un parcours intégré émerge ainsi : déconnexion sociale → stress chronique → cortisol → REDD1 → TSC1/TSC2 → altération de mTOR → compromission de la signalisation insulinique. La sociabilité intègre donc les mécanismes métaboliques non pas comme un élément accessoire, mais comme l'un des facteurs environnementaux capables de dialoguer, par le biais du stress, avec les mécanismes cellulaires qui régulent le métabolisme, l'adaptation et la santé.

Références

[1] Social Relationships and Mortality Risk: A Meta-analytic Review

Holt-Lunstad et al., 2010

PLoS Med. 2010;7(7):e1000316.

[2] Social Isolation: A Predictor of Mortality Comparable to Traditional Clinical Risk Factors

Pantell et al., 2013

Am J Public Health. 2013;103(11):2056–2062.

[3] Situational Versus Chronic Loneliness as Risk Factors for All-Cause Mortality

Shiovitz-Ezra e Ayalon, 2010

Int Psychogeriatr. 2010;22(3):455–462.

[4] Social Isolation: An Integrated Molecular Network Disrupting Cellular Homeostasis

Qaisiya et al., 2025

Front Neurosci. 2025;19:1693696.

[5] Loneliness: An Immunometabolic Syndrome

Pourriyahi et al., 2021

Int J Environ Res Public Health. 2021;18(22):12162.

[6] Social Disconnection as a Global Behavioral Epidemic: A Call to Action

Na et al., 2023

JAMA Psychiatry. 2023;80(2):101–102.

[7] Loneliness and Social Isolation as Risk Factors for Cardiovascular Disease

Holt-Lunstad e Smith, 2016

Heart. 2016;102(13):987–989.

[8] The social brain hypothesis: thirty years on

Dunbar, 2024

Ann Hum Biol. 2024;51(1):2359920.

[9] The evolution of the social brain: anthropoid primates contrasted with other vertebrates

Shultz e Dunbar, 2007

Proc Biol Sci. 2007;274(1624):2429– 2436.

[10] The human socio-cognitive niche and its evolutionary origins

Whiten e Erdal, 2012

Philos Trans R Soc Lond B Biol Sci. 2012;367(1599):2119–2129.

[11] Social brain volume is associated with in-degree social network size among older adults

Kwak et al., 2018

Proc Biol Sci. 2018;285(1871):20172708.

[12] Social Learning among Congo Basin Hunter– Gatherers

Hewlett et al., 2011

Philos Trans R Soc Lond B Biol Sci. 2011;366(1567):1168–1178.

[13] Co-residence patterns in hunter–gatherer societies show unique human social structure

Hill et al., 2011

Science. 2011;331(6022):1286–1289.

[14] The modularity of food-sharing networks minimizes individual and group starvation risk in hunter–gatherer societies

Plana et al., 2023

PLoS One. 2023;18(5):e0272733.

[15] Networks of food sharing reveal the functional significance of multilevel sociality in two hunter– gatherer groups

Dyble et al., 2016

Curr Biol. 2016;26(15):2017–2021.

[16] Variability in the organization and size of hunter–gatherer groups: hunter–gatherers do not live in small-scale societies

Bird et al., 2019

Journal of Human Evolution. 2019;131:96–108.

[17] Human social organization in the late Pleistocene: beyond the nomadic-egalitarian model

Singh e Glowacki, 2022

Evolution and Human Behavior. 2022;43(5):418–431.

[18] Strontium isotopes in ostrich eggshell beads reveal persistent social networks across southern Africa during the late Quaternary

Stewart et al., 2020

Proc Natl Acad Sci U S A. 2020;117(12):6453–6462.

[19] Socially isolated children 20 years later: risk of cardiovascular disease

Caspi et al., 2006

Arch Pediatr Adolesc Med. 2006;160(8):805–811.

[20] Social isolation in childhood and inflammation in adulthood: evidence from a national birth cohort

Lacey et al., 2014

Psychoneuroendocrinology. 2014;50:85–94.

[21] Adolescent loneliness as a predictor of adult obesity: a longitudinal study from the HUNT cohort

Rangul et al., 2025

BMC Public Health. 2025;25(1):2751.

[22] Loneliness is associated with early cardiovascular dysfunction in young adults

Vasan et al., 2024

Scientific Reports. 2024;14:14221.

[23] Loneliness, discrimination, stress and risk of type 2 diabetes in young adults

Harrison et al., 2025

Am J Prev Med. 2025;68(2):217–226.

[24] Health risks associated with social isolation in different age groups

Hämmig, 2019

PLoS One. 2019;14(7):e0219663.

[25] Social isolation and mortality in US black and white men and women

Alcaraz et al., 2019

Am J Epidemiol. 2019;188(1):102–109.

[26] A prospective study of social networks in relation to total mortality and cardiovascular disease in men

Kawachi et al., 1996

J Epidemiol Community Health. 1996;50(3):245–251.

[27] Characteristics of socially isolated patients with coronary artery disease who are at high risk of mortality

Brummett et al., 2001

Psychosom Med. 2001;63(2):267–272.

[28] Social isolation and all-cause mortality: a population-based cohort study in Denmark

Laugesen et al., 2018

Sci Rep. 2018;8:4731.

[29] Changes in social isolation and loneliness in relation to cardiovascular events and mortality

Chen et al., 2024

J Epidemiol Glob Health. 2024;14(3):962–973.

[30] Associations of loneliness and social isolation with healthy life expectancy and lifespan

Crowe et al., 2021

J Gerontol A Biol Sci Med Sci. 2021;76(11):1997–2006.

[31] Social isolation and loneliness and their association with all-cause mortality: the Tromsø study 1994–2023

Løvsletten e Brenn, 2024

Prev Med Rep. 2024;48:102930.

[32] The effect of social networks on 10-year survival in very old Australians: the Australian longitudinal study of ageing

Giles et al., 2005

J Epidemiol Community Health. 2005;59(7):574–579.

[33] Social relationships and mortality in elderly people: a cohort study in southern Europe

Rodriguez-Laso et al., 2007

BMC Geriatr. 2007;7:19.

[34] Social isolation, physical inactivity and inadequate diet among European middle-aged and older adults

Delerue Matos et al., 2021

BMC Public Health. 2021;21:924.

[35] Social isolation, loneliness and low micronutrient intake in older adults

Steptoe et al., 2024

Age Ageing. 2024;53(10):afae223.

[36] Social isolation, loneliness and health behaviours in older adults: a longitudinal cohort study

Kobayashi e Steptoe, 2018

Ann Behav Med. 2018;52(7):582–593.

[37] The association between loneliness or social isolation and diet and eating behaviours: a scoping review

Hanna et al., 2023

Appetite. 2023;191:107051.

[38] Social isolation and smoking among older adults

Gimm et al., 2023

J Appl Gerontol. 2023;42(11):2261–2267.

[39] The influence of loneliness on smoking and physical activity among community-dwelling older adults

Yang et al., 2022

Am J Health Promot. 2022;36(6):959–966.

[40] Social integration and mortality in patients with coronary heart disease: the Heart and Soul Study

Kreibig et al., 2014

Psychosom Med. 2014;76(8):659–668.

[41] Social isolation increases cue-induced sucrose and nicotine seeking and this effect is reversed by social housing

Mastrogiovanni et al., 2021

Sci Rep. 2021;11(1):2422.

[42] Did social isolation during the SARS-CoV-2 epidemic have an impact on citizens’ lifestyles?

Ferrante et al., 2020

Epidemiol Prev. 2020;44(5-6 Suppl 2):353–362.

[43] How social isolation and loneliness effect medication adherence among elderly with chronic diseases: An integrated theory and validated cross-sectional study

Lu et al., 2020

Arch Gerontol Geriatr. 2020;90:104154.

[44] Association between social isolation and medication adherence in older adults with chronic diseases: serial mediation of social support and loneliness

Yu et al., 2024

Ann Behav Med. 2024;58(10):670–678.

[45] Loneliness, perceived social support and their changes predict medication adherence over 12 months in patients with coronary heart disease

Fan et al., 2024

Br J Health Psychol. 2024;29(3):814–832.

[46] The effect of loneliness and perceived social support on self-efficacy in medication adherence in hypertensive patients

Hacihasanoglu Asilar et al., 2020

J Vasc Nurs. 2020;38(4):183–190.

[47] Effects of social isolation and loneliness on medication adherence in older adults: a systematic review

Improta et al., 2026

BMC Public Health. 2026;26:577.

[48] Social isolation, loneliness and objective physical activity in older men and women

Schrempft et al., 2019

BMC Public Health. 2019;19:74.

[49] Loneliness predicts reduced physical activity: cross-sectional and longitudinal analyses

Hawkley et al., 2009

Health Psychol. 2009;28(3):354–363.

[50] Loneliness is associated with unhealthy eating and physical inactivity among U.S. college students

Jiang et al., 2024

J Am Coll Health. 2024;72(8):2932–2937.

[51] Subjective and social well-being and their associations with sedentary behavior and physical activity in older adults

Chen et al., 2021

J Gerontol A Biol Sci Med Sci. 2021;76(10):1789–1795.

[52] Sociodemographic, lifestyle and social isolation correlates of TyG, METS-IR and SPISE-IR scores in a large working population

Riutord-Sbert et al., 2025

Med Sci (Basel). 2025;13(3):171.

[53] Social integration and metabolic function: evidence from a nationally representative longitudinal study of U.S. older adults

Yang et al., 2013

BMC Public Health. 2013;13:1210.

[54] Loneliness and subsequent changes in inflammatory and metabolic markers

Shiovitz-Ezra e Parag, 2019

Aging Ment Health. 2019;23(10):1358–1366.

[55] Metabolic dysregulation in older adults with depression and loneliness: the ATHLOS study

de la Torre-Luque et al., 2021

Psychoneuroendocrinology. 2021;123:104918.

[56] Psychological stress and fasting glucose among Chinese immigrants in the United States

Fang et al., 2024

Ann Behav Med. 2024;58(12):799–808.

[57] Social isolation triggers oxidative state and impairs insulin sensitivity in normoglycemic rats

Bove et al., 2022

Biomed Pharmacother. 2022;149:112820.

[58] Effects of social isolation on glucocorticoid regulation in social mammals

Hawkley et al., 2012

Horm Behav. 2012;62(3):314–323.

[59] Daily stress, loneliness, and diurnal cortisol rhythms in young adults

Lai et al., 2019

Horm Behav. 2019;115:104558.

[60] Loneliness and diurnal salivary cortisol in young adults

Lai et al., 2018

Int J Mol Sci. 2018;19(7):1944.

[61] Daily cortisol activity, loneliness, and coping efficacy in late adolescence: A longitudinal study of the transition to college

Drake et al., 2016

Int J Behav Dev. 2016;40(4):334–345.

[62] Loneliness and neuroendocrine, cardiovascular and inflammatory stress responses

Steptoe et al., 2004

Psychoneuroendocrinology. 2004;29(5):593–611.

[63] Loneliness as a determinant of allostatic load

Warren, 2025

Stress. 2025;28(1):2594067.

[64] Social network characteristics and salivary cortisol in healthy older people

Lai et al., 2012

ScientificWorldJournal. 2012;2012:929067.

[65] Comparative analysis of stress-inducible gene expression in murine immune cells

Koyanagi e Arimura, 2020

Immunol Invest. 2020;49(8):907–925.

[66] RTP801/REDD1: a stress management regulator that becomes a troublemaker in neurodegenerative disorders

Canal et al., 2014

Front Cell Neurosci. 2014;8:313.

[67] Dexamethasone represses mTOR signaling in muscle cells by inducing REDD1 expression

Wang et al., 2006

J Biol Chem. 2006;281(51):39128–39134.

[68] Stress-induced proteins RTP801 and RTP801L are negative regulators of mTOR signaling

Corradetti et al., 2005

J Biol Chem. 2005;280(11):9769–9772.

[69] Glucocorticoid-induced Dig2/RTP801/REDD1 mediates autophagy in lymphocytes

Molitoris et al., 2011

J Biol Chem. 2011;286(34):30181–30189.

[70] Rice Germ Attenuates Chronic Unpredictable Mild Stress-Induced Muscle Atrophy

Batsukh et al., 2023

Nutrients. 2023;15(12):2719.

[71] Glucocorticoid receptor activation reduces food intake independent of hyperglycemia in zebrafish

Nipu et al., 2022

Sci Rep. 2022;12:15677.

[72] Regulation of mTOR function in response to hypoxia by REDD1 and the TSC1/TSC2 tumor suppressor complex

Brugarolas et al., 2004

Genes Dev. 2004;18(23):2893–2904.

[73] Hypoxia regulates TSC1/2-mTOR signaling via REDD1-mediated 14-3-3 protein displacement

DeYoung et al., 2008

Genes Dev. 2008;22(2):239–251.

[74] The stress-responsive protein REDD1 and its physiological and pathological roles

Kim et al., 2023

Exp Mol Med. 2023;55(9):1933–1944.

[75] Inhibition of mTORC1 activity by REDD1 induction in multiple myeloma cells

Decaux et al., 2010

Cancer Sci. 2010;101(4):889–897.

[76] REDD1 attenuates cholestatic liver fibrosis via suppression of PI3K/AKT/mTOR signaling

Li et al., 2025

Front Med (Lausanne). 2025;12:1628260.

[77] RTP801 is a key mediator of cigarette smoke-induced lung injury via mTOR suppression

Yoshida et al., 2010

Nat Med. 2010;16(7):767–773.

[78] Acute inhibition of mTOR induces insulin resistance and alters substrate utilization in vivo

Kleinert et al., 2014

Mol Metab. 2014;3(6):630–641.

[79] Rapamycin-induced insulin resistance is mediated by mTORC2 loss and is separable from longevity

Lamming et al., 2012

Science. 2012;335(6076):1638–1643.

[80] Chronic mTOR inhibition by rapamycin induces muscle insulin resistance despite weight loss in rats

Deblon et al., 2012

Br J Pharmacol. 2012;165(7):2325–2340.

[81] Rapamycin impairs insulin signaling and glucose uptake in human adipocytes

Pereira et al., 2012

Mol Cell Endocrinol. 2012;355(1):96–105.

[82] Rapamycin induces glucose intolerance by reducing islet mass, insulin content, and insulin sensitivity

Yang et al., 2012

J Mol Med (Berl). 2012;90(5):575–585.