
Scientific Book

Relaciones sociales y respuestas biológicas a la soledad

Las relaciones sociales representan un componente importante de la salud psicofísica, con posibles implicaciones en la regulación del estrés, la actividad neuroendocrina y los procesos inflamatorios. El aislamiento social, la soledad y la calidad de las relaciones interpersonales están asociados a diferentes resultados de salud, a través de mecanismos biológicos y conductuales complejos. En el libro «La scelta di Vivere in Salute o in Malattia» (La elección de vivir en salud o en enfermedad), el Dr. A. Colonnese y R. Panzironi profundizan en el vínculo entre socialidad, equilibrio psicofísico y funcionamiento del organismo.

Citar este artículo
Colonnese, A. & Panzironi, R. (2026). Relaciones sociales y respuestas biológicas a la soledad. La elección de vivir en salud o en enfermedad. https://lifesciencehub.info/es/la-scelta-di-vivere-in-salute-o-in-malattia/relaciones-sociales-y-respuestas-biologicas-a-la-soledad
La elección de vivir en salud o en enfermedad · ISBN 979-12-82692-05-2

DOI lsh.es.libro.21

  • Publicación 05/11/2026
  • Actualización 05/11/2026
  • AISLAMIENTO SOCIAL
  • SOLEDAD
  • ESTRÉS CRÓNICO
  • CORTISOL
  • REDD1
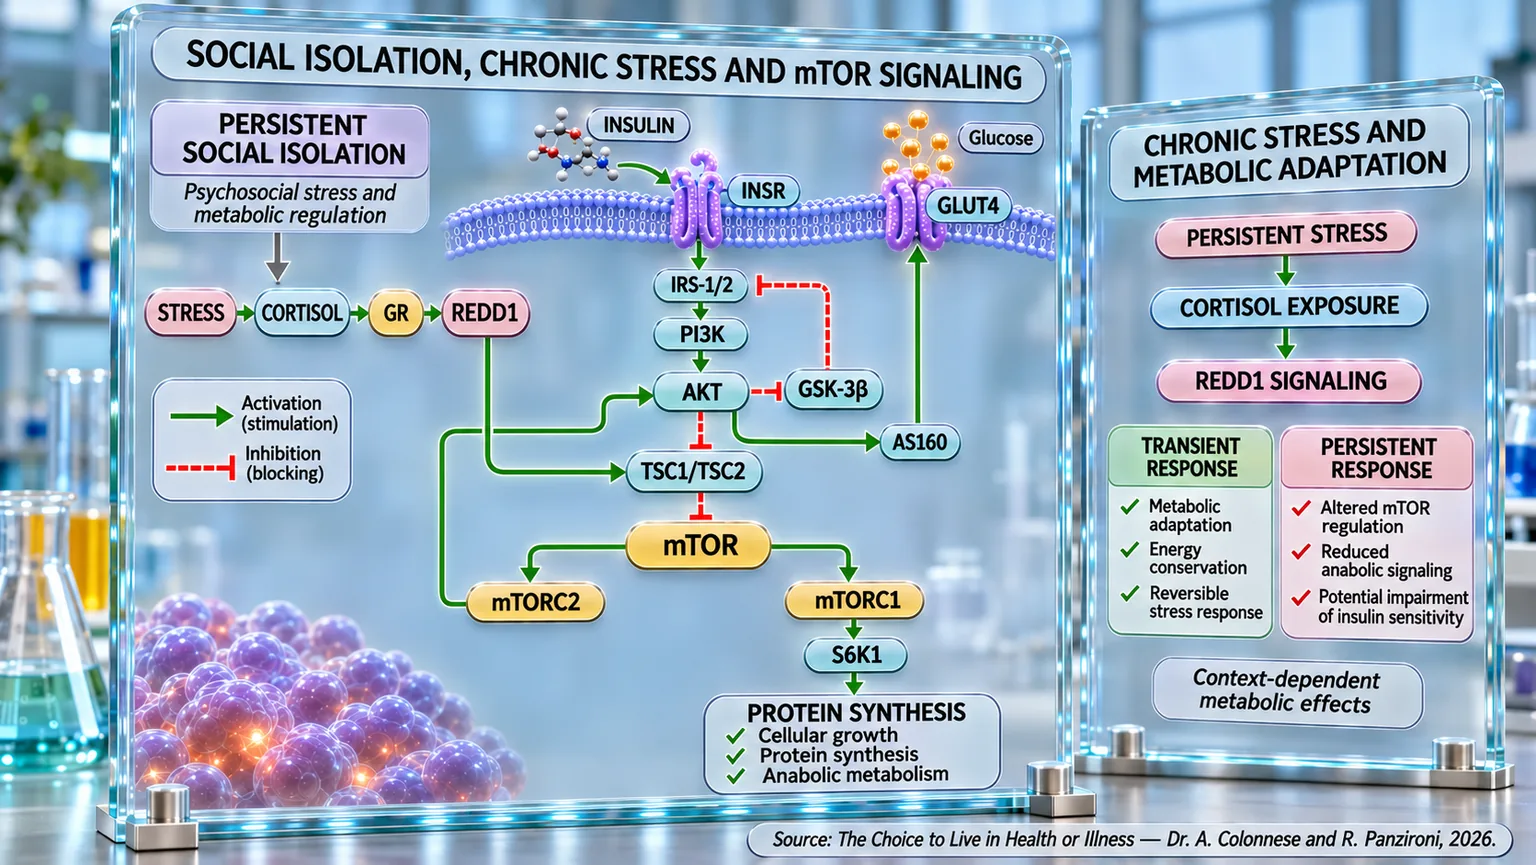
Infografía molecular con membrana celular, receptor de insulina, GLUT4 y diagramas de las vías REDD1, AKT y mTOR bajo estrés crónico.
El esquema conecta el aislamiento social persistente, el estrés y el cortisol con la señalización REDD1/mTOR, relacionándolos con la vía insulínica INSR–IRS-1/2–PI3K–AKT y el transporte de glucosa GLUT4. Asimismo, distingue entre la respuesta transitoria y la persistente, destacando la adaptación metabólica, la regulación anabólica alterada y la posible reducción de la sensibilidad a la insulina.

ABSTRACT

La sociabilidad constituye una dimensión biológica de la salud, asociada a la supervivencia, al comportamiento y a la regulación metabólica. En el libro "La scelta di Vivere in Salute o in Malattia", el Dr. A. Colonnese y R. Panzironi examinan las relaciones entre el aislamiento social, el estrés crónico y la señalización insulínica. Los estudios epidemiológicos asocian la soledad y el aislamiento persistentes con una mayor mortalidad y riesgo cardiovascular, sin demostrar una relación causal unívoca.

La relevancia de las relaciones encuentra un contexto evolutivo en la cooperación, en el intercambio de recursos y en el aprendizaje social de las comunidades humanas. Durante la infancia y la adolescencia, el aislamiento se ha asociado con inflamación, obesidad y alteraciones cardiometabólicas posteriores. En la edad adulta, la desconexión social se acompaña frecuentemente de una menor calidad alimentaria, menor actividad física, mayor propensión al tabaquismo y reducida adherencia terapéutica. Estos comportamientos pueden contribuir a las asociaciones observadas entre el escaso apoyo social, la resistencia a la insulina y las alteraciones glucémicas.

Además de los comportamientos, los modelos experimentales sugieren efectos del aislamiento sobre la sensibilidad insulínica central y periférica, sobre el estrés oxidativo y sobre la transmisión de la señal insulínica. Una posible conexión involucra el eje hipotálamo-hipófisis-suprarrenal: la soledad persistente puede modificar la regulación circadiana del cortisol. A través del receptor de los glucocorticoides, el cortisol induce REDD1, que actúa sobre TSC1/TSC2 reduciendo la actividad de mTOR. Esta respuesta puede favorecer temporalmente la adaptación energética, mientras que su persistencia podría comprometer el metabolismo celular.

La modulación prolongada de mTOR puede afectar a mTORC2 y a la activación de AKT, interfiriendo con la secuencia AKT-AS160-GLUT4 y la captación de glucosa; las evidencias señalan además posibles efectos sobre la función de las células β pancreáticas. En conjunto, emerge una red de asociaciones epidemiológicas y mecanismos experimentales que conecta las relaciones sociales, la respuesta al estrés y la homeostasis metabólica. Comprender sus interacciones puede orientar futuras investigaciones, evitando considerar la vía cortisol-REDD1-mTOR como una explicación exclusiva de los efectos sanitarios de la soledad. Resulta fundamental distinguir los efectos del estrés transitorio de las consecuencias de una exposición persistente.

La sociabilidad como nuevo factor de riesgo

La sociabilidad representa uno de los pilares más profundos y, a menudo, subestimados de la salud humana. El ser humano, por su propia naturaleza, es una especie social: desde sus orígenes, la supervivencia ha dependido de la capacidad de crear vínculos, cooperar y vivir dentro de una comunidad. Las relaciones no son, por tanto, un simple complemento de la vida cotidiana, sino un componente estructural de nuestra biología. Cuando este equilibrio relacional se rompe, no solo se genera un malestar emocional, sino que se activa una verdadera cascada de modificaciones fisiológicas que pueden comprometer la salud a largo plazo.

En los últimos años, la literatura científica ha comenzado a reconocer la desconexión social, entendida como el aislamiento objetivo o como la experiencia subjetiva de soledad, como un factor de riesgo real, al mismo nivel que los tradicionalmente considerados en el ámbito clínico. En este contexto, la sociabilidad deja de ser un elemento accesorio y se convierte en un determinante central del estado de salud.

Las evidencias epidemiológicas son particularmente claras. Un amplio metaanálisis realizado con más de 300.000 individuos demostró que las personas con relaciones sociales más sólidas presentan una probabilidad de supervivencia un 50% mayor en comparación con aquellas más aisladas (Holt-Lunstad et al., 2010) [1]. Este dato adquiere un significado aún más relevante si se compara con otros factores de riesgo: el impacto de las relaciones sociales en la mortalidad resulta, de hecho, comparable al del tabaquismo, la obesidad y el sedentarismo, lo que sugiere que la dimensión relacional es un determinante biológico de primera importancia.

Esta observación se ve confirmada además por estudios a gran escala que han analizado directamente el papel del aislamiento social en la mortalidad. En una muestra representativa de la población adulta, el aislamiento demostró ser un predictor independiente de mortalidad, con un impacto similar al del tabaquismo y superior al de la hipertensión (Pantell et al., 2013) [2]. En otras palabras, la falta de relaciones sociales puede influir en la supervivencia tanto como algunos de los factores de riesgo clínicos más conocidos, subrayando que la salud no está determinada exclusivamente por parámetros biológicos, sino también por la calidad de las conexiones humanas.

Un aspecto particularmente interesante se refiere a la naturaleza multidimensional de la sociabilidad. No cuenta solo el número de relaciones, sino también su calidad y la percepción subjetiva de conexión. Dos personas pueden tener el mismo número de contactos sociales, pero vivir experiencias completamente diferentes: una puede sentirse apoyada e integrada, y la otra, profundamente sola. Es precisamente esta discrepancia entre las relaciones deseadas y las relaciones reales lo que define la soledad, una condición que, si es persistente, puede tener efectos aún más marcados en la salud.

La distinción entre soledad situacional y soledad crónica ayuda a comprender mejor este fenómeno. La primera es temporal, vinculada a eventos específicos de la vida; la segunda es persistente y representa una condición más estable y arraigada. Las evidencias muestran que ambas aumentan el riesgo de mortalidad, pero con intensidades diferentes: la soledad situacional se asocia con un incremento del riesgo superior al 50%, mientras que la crónica puede llegar a aumentarlo hasta en un 83% (Shiovitz-Ezra y Ayalon, 2010) [3]. Esto sugiere que la duración y la persistencia de la desconexión social desempeñan un papel crucial en la determinación del impacto sobre la salud.

Lo que hace que este tema sea aún más relevante es el hecho de que la desconexión social no actúa solo a nivel psicológico o conductual, sino que involucra directamente a los sistemas biológicos del organismo. Estudios recientes han demostrado que el aislamiento social es capaz de alterar profundamente la homeostasis celular, activando una compleja red de mecanismos neuroendocrinos, inmunitarios y metabólicos (Qaisiya et al., 2025) [4]. En condiciones de aislamiento, el organismo entra en un estado de estrés crónico, caracterizado por una hiperactivación del eje hipotálamo-hipófisis-suprarrenal y por un aumento persistente de los niveles de cortisol. Este ajuste hormonal favorece alteraciones metabólicas como hiperglucemia, resistencia a la insulina y redistribución del tejido adiposo, elementos clave en el desarrollo del síndrome metabólico.

Paralelamente, se observa un aumento del estado inflamatorio crónico. El organismo, como si percibiera una amenaza constante, mantiene activo el sistema inmunitario, produciendo citocinas proinflamatorias que, a largo plazo, contribuyen al desarrollo de patologías cardiovasculares y metabólicas. A esto se añaden fenómenos de estrés oxidativo, disfunción mitocondrial y alteraciones de los procesos de autofagia, todos ellos elementos que comprometen la capacidad de las células para mantener su equilibrio interno.

Desde esta perspectiva, la soledad puede interpretarse como un verdadero síndrome inmunometabólico, caracterizado por una red de alteraciones que involucran simultáneamente al sistema nervioso, al sistema inmunitario y al metabolismo (Pourriyahi et al., 2021) [5]. No se trata, por tanto, solo de una condición psicológica, sino de un estado biológico complejo que modifica el funcionamiento de todo el organismo.

Un elemento adicional de reflexión se refiere al contexto social contemporáneo. Los cambios culturales, el aumento del individualismo, la digitalización de las relaciones y el impacto de eventos globales como la pandemia han contribuido a hacer que la desconexión social sea cada vez más frecuente. Hoy en día, una parte significativa de la población experimenta formas de aislamiento o soledad, lo que convierte a este fenómeno en una verdadera emergencia de salud pública. Las evidencias sugieren que el impacto de la desconexión social en la mortalidad es comparable al del consumo de unos quince cigarrillos al día, un dato que hace evidente de inmediato su relevancia clínica (Na et al., 2023) [6].

También en el plano cardiovascular, las implicaciones son relevantes. La soledad y el aislamiento social se asocian con un aumento significativo del riesgo de cardiopatía coronaria y ictus, independientemente de otros factores de riesgo tradicionales (Holt-Lunstad y Smith, 2016) [7]. Esto confirma que la dimensión relacional actúa como un determinante autónomo de la salud, capaz de influir directamente en los principales sistemas fisiológicos.

En conjunto, surge un panorama claro: la sociabilidad no es un simple elemento de bienestar psicológico, sino un verdadero factor biológico que modula la salud y la supervivencia. Las relaciones sociales funcionan como un sistema de regulación, capaz de atenuar el estrés, fomentar comportamientos saludables y mantener el equilibrio fisiológico. Por el contrario, su ausencia expone al organismo a una condición de vulnerabilidad sistémica, en la que diversos mecanismos patológicos tienden a activarse y reforzarse mutuamente.

Comprender la sociabilidad en estos términos significa realizar un cambio de paradigma: dejar de considerarla un aspecto secundario de la vida para reconocerla como uno de los determinantes centrales de la salud. Bajo esta perspectiva, promover relaciones sociales de calidad no es solo un objetivo social o psicológico, sino una verdadera estrategia preventiva, capaz de influir de forma concreta en el destino biológico del individuo.

La sociabilidad en el pasado y el cerebro social

Para comprender realmente hasta qué punto la sociabilidad está arraigada en nuestra biología, es necesario dar un paso atrás y observar la evolución del cerebro humano. Lo que emerge con claridad es que nuestro sistema nervioso no se desarrolló simplemente para resolver problemas técnicos o ambientales, sino sobre todo para gestionar relaciones. En otras palabras, el cerebro humano es, ante todo, un cerebro social.

La hipótesis del cerebro social representa uno de los modelos más sólidos en biología evolutiva para explicar la expansión del cerebro en los primates y en el ser humano. Según esta perspectiva, el aumento del tamaño de la neocorteza no fue impulsado principalmente por necesidades relacionadas con el entorno físico, sino por las complejas exigencias de la vida en grupo (Dunbar, 2024) [8]. Vivir en una comunidad estable implica, de hecho, una serie de desafíos cognitivos: reconocer a individuos diferentes, recordar las relaciones, interpretar intenciones, prever comportamientos y mantener equilibrios sociales a menudo delicados. Todo esto requiere una capacidad de procesamiento extremadamente sofisticada.

Esta relación entre cerebro y sociabilidad emerge de forma aún más evidente al observar el tamaño de los grupos humanos. Estudios comparativos han demostrado que existe una correlación extremadamente robusta entre el tamaño de la neocorteza y el número de relaciones sociales que un individuo es capaz de gestionar. En el ser humano, este límite se sitúa en torno a unos 150 individuos, un valor conocido como el “número de Dunbar” (Dunbar, 2024) [8]. Este dato no es casual: representa el punto de equilibrio entre las capacidades cognitivas disponibles y el coste energético necesario para mantener relaciones estables.

Si imaginamos la mente como una especie de “gestor de relaciones”, podemos comprender mejor este concepto. Cada relación requiere tiempo, atención, memoria y energía emocional. Por tanto, no es posible mantener un número infinito de vínculos significativos: el cerebro impone un límite natural, que se refleja en la estructura de las redes sociales humanas, organizadas en círculos concéntricos de distinta intensidad.

La importancia de la sociabilidad en el desarrollo del cerebro no es exclusiva del ser humano, sino que emerge claramente también al comparar diferentes especies. Los estudios comparativos entre vertebrados muestran que, en los primates, el tamaño del cerebro está estrechamente ligado no solo al número de individuos en el grupo, sino sobre todo a la calidad y estabilidad de las relaciones sociales (Shultz y Dunbar, 2007) [9]. Mantener vínculos duraderos, cooperar, negociar y resolver conflictos representa un desafío cognitivo mucho más complejo que la simple supervivencia individual.

Un elemento particularmente interesante es que la evolución de la sociabilidad parece haber pasado por fases progresivas. En muchas especies, el aumento de las capacidades cognitivas está inicialmente ligado a la gestión del vínculo de pareja, que requiere supervisión recíproca, coordinación y confianza. En los primates, este sistema se extendió después a grupos más amplios, dando origen a estructuras sociales cada vez más complejas (Shultz y Dunbar, 2007) [9]. Este paso representa uno de los momentos clave de la evolución del cerebro social.

En el ser humano, este proceso ha alcanzado un nivel de integración sin precedentes. Nuestra especie no se limita a vivir en grupo, sino que construye verdaderas redes sociales altamente coordinadas, basadas en la cooperación, la comunicación y el intercambio de conocimientos. Este concepto ha sido descrito como “nicho sociocognitivo”, un sistema en el que las capacidades cognitivas y las estructuras sociales se refuerzan mutuamente (Whiten y Erdal, 2012) [10]. Bajo esta perspectiva, el cerebro humano no es simplemente un instrumento individual, sino parte de un sistema colectivo, en el que cada individuo contribuye al funcionamiento del grupo.

La teoría de la mente, es decir, la capacidad de comprender los pensamientos, emociones e intenciones de los demás, representa uno de los pilares de este sistema. Permite prever el comportamiento ajeno, coordinar acciones y construir relaciones basadas en la confianza. Junto a esta capacidad, el lenguaje permite transmitir información de forma precisa, mientras que la cultura permite acumular y compartir conocimientos a lo largo del tiempo (Whiten y Erdal, 2012) [10]. Estos elementos, junto con la cooperación y el igualitarismo, forman un sistema integrado que ha guiado la evolución de la especie humana.

A nivel neurobiológico, estas funciones sociales están respaldadas por una red de estructuras cerebrales específicas. Entre ellas, la corteza prefrontal, la amígdala y la unión temporoparietal desempeñan un papel central en los procesos de mentalización y en la gestión de las relaciones. Estas áreas permiten interpretar señales sociales, evaluar las intenciones ajenas y adaptar el propio comportamiento de forma flexible (Dunbar, 2024) [8].

Un dato particularmente significativo surge de los estudios de neuroimagen (técnicas utilizadas para visualizar y estudiar el cerebro): el tamaño y la estructura de estas áreas cerebrales están directamente correlacionados con la complejidad de la red social de un individuo. En particular, se ha observado que las personas con redes sociales más amplias y más integradas presentan un mayor volumen de materia gris en regiones clave del cerebro social, como la corteza orbitofrontal y la corteza prefrontal dorsomedial. Esto sugiere que la capacidad de construir y mantener relaciones no es solo una competencia aprendida, sino que refleja una verdadera organización estructural del cerebro (Kwak et al., 2018) [11].

Un aspecto interesante de estos resultados es que no solo cuenta cuántas relaciones percibe tener una persona, sino también cuánto es reconocida por los demás como un nodo central de la red social. Ser “visto” por los demás como un punto de referencia relacional se asocia, de hecho, a un mayor desarrollo de las áreas cerebrales involucradas en la comprensión social. Esto refuerza la idea de que la sociabilidad es un fenómeno profundamente interactivo, que emerge del encuentro entre individuos y no solo de la percepción subjetiva (Kwak et al., 2018) [11].

En conjunto, el cerebro humano parece, por tanto, moldeado por la necesidad de vivir en relación. Cada interacción, cada vínculo, cada dinámica social contribuye a plasmar nuestras estructuras cognitivas y biológicas. La sociabilidad no es un añadido a nuestra naturaleza, sino uno de sus componentes fundamentales. Comprender este aspecto significa reconocer que el ser humano no está diseñado para el aislamiento: al contrario, está construido para conectar.

El comportamiento social en los cazadores-recolectores

Si el cerebro humano evolucionó para gestionar relaciones, el comportamiento social representa su expresión concreta en el mundo real. No se trata simplemente de "estar juntos", sino de un conjunto de dinámicas extremadamente sofisticadas que han permitido a nuestra especie sobrevivir, adaptarse y prosperar en contextos a menudo impredecibles. Al observar las sociedades humanas más cercanas a las ancestrales, emerge con claridad que la sociabilidad no era una opción, sino una necesidad biológica.

Uno de los aspectos más sorprendentes se refiere al modo en que los seres humanos aprenden desde los primeros años de vida. En las sociedades de cazadores-recolectores, el aprendizaje no se limita a momentos formales o estructurados, sino que ocurre continuamente a través de la interacción social. Los niños, ya en los primeros meses de vida, comienzan a interiorizar comportamientos, valores y competencias observando a los demás, imitándolos y participando activamente en la vida del grupo (Hewlett et al., 2011) [12]. Este proceso es extremadamente temprano y rápido: dentro de los primeros años de vida se adquieren muchas de las competencias fundamentales para la supervivencia.

Lo que hace que este sistema sea particularmente eficaz es su naturaleza distribuida. El aprendizaje no ocurre solo de los padres, sino de toda una red social que incluye a pares, otros adultos y miembros de la comunidad. Esta transmisión cultural multinivel, vertical, horizontal y oblicua, permite una difusión rápida y flexible de la información. En este contexto, la confianza y la autonomía desempeñan un papel central: los niños no son simples receptores pasivos, sino que participan activamente, exploran y aprenden a través del juego y la experiencia directa (Hewlett et al., 2011) [12].

Junto al aprendizaje, otro pilar del comportamiento social humano está representado por la cooperación. A diferencia de muchas otras especies, los seres humanos cooperan a gran escala incluso con individuos no emparentados. Este aspecto emerge de forma particularmente evidente al analizar la estructura social de las poblaciones de cazadores-recolectores: estudios realizados en diversas comunidades muestran que los grupos están compuestos predominantemente por individuos no consanguíneos, con una baja correlación genética entre los miembros (Hill et al., 2011) [13]. Este dato es fundamental, porque indica que la cooperación humana no puede explicarse exclusivamente por la lógica del parentesco, sino que se basa en redes sociales más amplias y complejas.

Estas redes se caracterizan por una notable flexibilidad. Los individuos se desplazan entre grupos, forman nuevas conexiones y mantienen vínculos distribuidos en varios niveles. Esta estructura favorece el intercambio de información, la transmisión cultural y la innovación, creando un sistema dinámico en el que el grupo funciona como un organismo colectivo. En este contexto, la sociabilidad se convierte en el medio a través del cual se construye y se transmite el conocimiento (Hill et al., 2011) [13].

Un ejemplo concreto de esta interdependencia emerge al observar las dinámicas de intercambio de alimentos. En las sociedades ancestrales, el acceso a los recursos no estaba garantizado: la caza y la recolección eran actividades caracterizadas por una elevada variabilidad e incertidumbre. En este escenario, el intercambio de alimentos representaba una estrategia fundamental para reducir el riesgo individual y garantizar la supervivencia del grupo. Modelos recientes muestran que la distribución de los recursos tiende a organizarse en redes modulares, en las que individuos y familias se agrupan en torno a nodos centrales, creando sistemas cooperativos eficientes (Plana et al., 2023) [14]. Este tipo de organización no es casual, sino que emerge como una solución óptima en contextos de escasez e imprevisibilidad.

El intercambio no es, por tanto, solo un acto altruista, sino una estrategia adaptativa. A través de él, el riesgo de hambre se distribuye entre los miembros del grupo, transformando una vulnerabilidad individual en una resiliencia colectiva. En otras palabras, el grupo se convierte en una red de seguridad.

Esta lógica se refleja también en la estructura multinivel de las sociedades humanas. Estudios realizados en poblaciones contemporáneas de cazadores-recolectores muestran que la organización social se articula en diferentes niveles: la familia, pequeños grupos de intercambio y campamentos más amplios (Dyble et al., 2016) [15]. Cada nivel desempeña una función específica. Dentro de la familia se observa una cooperación basada en la división de roles; en los grupos de intercambio emerge el apoyo recíproco entre parientes; a nivel de comunidad más amplia, la cooperación con individuos no emparentados permite afrontar la variabilidad de los recursos.

Esta estructura multinivel representa una de las características distintivas de la sociabilidad humana. Permite equilibrar relaciones estrechas y vínculos más amplios, garantizando tanto estabilidad como flexibilidad. Por un lado, las relaciones más íntimas ofrecen apoyo emocional y seguridad; por otro, las redes más extensas aumentan las oportunidades de intercambio, aprendizaje y cooperación.

En conjunto, el comportamiento social humano aparece como un sistema altamente integrado, en el que el aprendizaje, la cooperación y el intercambio se entrelazan continuamente. Cada individuo no actúa de forma aislada, sino dentro de una red de relaciones que influyen profundamente en sus posibilidades de supervivencia y desarrollo.

Esta perspectiva permite comprender un punto fundamental: la sociabilidad no es simplemente una ventaja, sino una condición necesaria para el funcionamiento de la especie. En el pasado, estar aislado significaba estar expuesto a un riesgo elevado, no solo desde el punto de vista emocional, sino sobre todo en términos de supervivencia. La conexión con los demás representaba el principal instrumento de adaptación al entorno.

Comprender estas dinámicas evolutivas ayuda a interpretar de forma más profunda el papel de la sociabilidad también en el contexto moderno. Lo que hoy puede parecer una necesidad psicológica, en realidad hunde sus raíces en mecanismos biológicos y conductuales construidos a lo largo de miles de años. El ser humano, en definitiva, no está diseñado para vivir solo, sino para existir dentro de una red de relaciones.

Una confirmación que viene del pasado: la sociabilidad en los cazadores-recolectores

Para comprender a fondo el papel de la sociabilidad en la historia humana, es necesario observar de cerca el contexto en el que nuestra especie vivió durante la mayor parte de su existencia: el de los cazadores-recolectores. Durante más del 95% de la historia evolutiva, los seres humanos no vivieron en ciudades, ni en sociedades estructuradas como las conocemos hoy, sino en sistemas sociales dinámicos, flexibles y profundamente interconectados. Es en este entorno donde se desarrollaron los mecanismos biológicos y conductuales que aún hoy guían nuestra forma de relacionarnos.

Contrariamente a la imagen tradicional de pequeños grupos aislados, las evidencias más recientes muestran que las sociedades de cazadores-recolectores estaban insertas en redes sociales mucho más amplias y articuladas. Los grupos locales, a menudo de dimensiones reducidas, representaban solo una parte visible de una estructura social más extensa, compuesta por relaciones distribuidas en territorios vastos y mantenidas a lo largo del tiempo mediante intercambios, movilidad y vínculos simbólicos. En este contexto, la sociabilidad no estaba confinada al grupo inmediato, sino que se extendía mucho más allá, creando una red continua de conexiones entre individuos y comunidades.

Esta organización reticular emerge claramente al analizar la composición de los grupos. Los datos etnográficos indican que las unidades locales no estaban compuestas predominantemente por parientes cercanos, sino por individuos provenientes de contextos diferentes, a menudo no consanguíneos (Bird et al., 2019) [16]. Esto implica que la cohesión social no se basaba exclusivamente en la genética, sino en sistemas de relaciones construidas, mantenidas y activadas a lo largo del tiempo. La verdadera "riqueza" no estaba representada por la acumulación material, sino por la capacidad de construir y mantener vínculos sociales: una verdadera riqueza relacional.

Otro elemento fundamental se refiere a la extraordinaria variabilidad de estas sociedades. Durante mucho tiempo se creyó que los cazadores-recolectores vivían en pequeños grupos nómadas y rígidamente igualitarios. Sin embargo, las evidencias arqueológicas y etnográficas muestran un panorama mucho más complejo. Algunas poblaciones eran altamente móviles, otras más sedentarias; algunas mostraban una distribución equitativa de los recursos, otras formas de jerarquía y organización más estructurada (Singh y Glowacki, 2022) [17]. Esta diversidad sugiere que la sociabilidad humana no sigue un único modelo, sino que es el resultado de una extraordinaria capacidad de adaptación a las condiciones ambientales.

Esta flexibilidad representa uno de los elementos clave de la evolución humana. Los seres humanos no se adaptaron a un único tipo de organización social, sino que desarrollaron la capacidad de modificar sus propias estructuras relacionales según el contexto. En entornos ricos y predecibles, podían surgir formas de sedentarismo y agregaciones más amplias; en contextos más difíciles, prevalecían la movilidad y organizaciones más fluidas (Singh y Glowacki, 2022) [17]. En ambos casos, la sociabilidad seguía siendo el factor central que permitía gestionar recursos, riesgos y oportunidades.

Un aspecto particularmente fascinante se refiere a la extensión geográfica de las redes sociales. Análisis arqueológicos basados en los isótopos de estroncio han demostrado que ya hace más de 30.000 años existían sistemas de intercambio que conectaban grupos distantes cientos de kilómetros (Stewart et al., 2020) [18]. Objetos simbólicos, como las cuentas de cáscara de huevo de avestruz, eran transportados e intercambiados a largas distancias, funcionando como verdaderos "marcadores sociales" y herramientas de conexión entre grupos.

Estas redes no solo tenían una función cultural, sino que representaban una estrategia de supervivencia. Conectar grupos situados en entornos ecológicamente diversos permitía reducir el riesgo vinculado a la variabilidad de los recursos. En caso de escasez local, la red social ofrecía acceso a territorios y recursos alternativos, aumentando la resiliencia general del sistema. En otras palabras, la sociabilidad funcionaba como una forma de seguro biológico contra la incertidumbre ambiental (Stewart et al., 2020) [18].

Este modelo destaca un principio fundamental: en el pasado, sobrevivir significaba estar conectado. El individuo aislado estaba expuesto a riesgos elevados, mientras que el individuo inserto en una red social amplia y activa tenía mayores probabilidades de adaptarse y prosperar. La cooperación a gran escala, la movilidad y la capacidad de mantener relaciones incluso a distancia representaban ventajas evolutivas decisivas.

En conjunto, la imagen que emerge es la de una especie profundamente interdependiente, en la que la sociabilidad no era un elemento accesorio, sino la estructura portante de la organización biológica y conductual. Los cazadores-recolectores no vivían simplemente en grupos: vivían dentro de redes.

Comprender esta realidad significa redefinir el concepto mismo de naturaleza humana. El ser humano no está diseñado para la autosuficiencia, sino para la interdependencia. La capacidad de construir, mantener y activar relaciones no representa solo una ventaja evolutiva, sino uno de los rasgos distintivos de nuestra especie.

La sociabilidad en los jóvenes

Si la sociabilidad representa un componente estructural de la biología humana, existe una etapa de la vida en la que esta dimensión se vuelve particularmente crítica: la infancia y la adolescencia. Es precisamente en estos años cuando el cerebro, el sistema endocrino y el sistema inmunitario aún se encuentran en fase de desarrollo y, por lo tanto, resultan extremadamente sensibles al entorno social. En este contexto, la calidad de las relaciones no solo influye en el bienestar psicológico, sino que contribuye a moldear de forma profunda y duradera la fisiología del individuo.

Las evidencias longitudinales (observación de cómo algo cambia a lo largo del tiempo) muestran con claridad que el aislamiento social temprano no es un fenómeno transitorio carente de consecuencias, sino un factor de riesgo con efectos que se prolongan en el tiempo. Los niños que ocupan posiciones marginales o aisladas en los grupos de pares presentan, décadas después, un riesgo significativamente mayor de desarrollar condiciones de salud desfavorables, en particular de naturaleza cardiovascular (Caspi et al., 2006) [19]. Este dato es especialmente relevante porque la asociación persiste incluso después de controlar variables como el nivel socioeconómico, el cociente intelectual o los comportamientos de riesgo, lo que sugiere un efecto directo e independiente de la dimensión social.

Aún más significativo es el hecho de que este efecto sigue una lógica acumulativa. La exposición prolongada al aislamiento, distribuida en varias etapas de la vida, se asocia a un riesgo más que duplicado de desarrollar problemas de salud en la edad adulta. Esto sugiere que el cuerpo “registra” las experiencias sociales a lo largo del tiempo, acumulando una carga biológica que puede manifestarse incluso muchos años después (Caspi et al., 2006) [19].

Uno de los mecanismos principales a través de los cuales se materializa este fenómeno es la inflamación crónica de bajo grado. Estudios longitudinales demuestran que los niños socialmente aislados presentan, en la edad adulta, niveles más elevados de proteína C reactiva, un biomarcador clave de la inflamación sistémica (Lacey et al., 2014) [20]. Este dato es particularmente importante porque la inflamación representa uno de los principales factores patogénicos que subyacen a enfermedades como la diabetes tipo 2, las patologías cardiovasculares y los trastornos depresivos.

El concepto que emerge es el de “incorporación biológica”: las experiencias sociales tempranas se integran progresivamente en los sistemas fisiológicos del organismo, modificando su funcionamiento a largo plazo. En otras palabras, lo que sucede en el plano relacional durante la infancia no permanece confinado a la dimensión psicológica, sino que se traduce en cambios concretos a nivel biológico.

Esta vulnerabilidad no se agota con la infancia, sino que continúa durante la adolescencia, una etapa caracterizada por profundas transformaciones neurobiológicas y sociales. En este periodo, la soledad emerge como un potente predictor de alteraciones metabólicas futuras. Datos recientes muestran que los adolescentes que experimentan niveles elevados de soledad presentan un riesgo significativamente mayor de desarrollar obesidad en la edad adulta, con incrementos relevantes del índice de masa corporal (Rangul et al., 2025) [21]. Este vínculo puede estar mediado por diversos factores, entre ellos comportamientos alimentarios disfuncionales, reducción de la actividad física y activación crónica de los sistemas de estrés.

Paralelamente, incluso en los adultos jóvenes aparentemente sanos, la soledad se asocia a signos precoces de compromiso cardiovascular. En particular, se ha observado una relación significativa entre la soledad y el aumento de la rigidez arterial, un indicador subclínico de riesgo cardiovascular (Vasan et al., 2024) [22]. Este dato sugiere que los efectos de la desconexión social pueden empezar a manifestarse mucho antes de la aparición de patologías clínicamente evidentes.

La dimensión metabólica también parece estar fuertemente influenciada por los factores sociales. Un amplio análisis realizado en 14 217 adultos jóvenes de entre 18 y 35 años ha evidenciado una estrecha asociación entre la soledad, el estrés, el apoyo social, la cohesión social y la presencia de prediabetes o diabetes tipo 2. En la población estudiada, a medida que aumentaba la soledad, crecía progresivamente también la probabilidad de prediabetes o diabetes tipo 2: en comparación con los niveles más bajos, el tercer cuartil de soledad se asoció a un aumento de las probabilidades del 42%, mientras que en el cuartil más elevado el aumento alcanzaba el 78%. Asimismo, niveles mayores de estrés y discriminación, junto con un menor apoyo social y una reducida cohesión social del vecindario, resultaban asociados a una condición metabólica más desfavorable. Un elemento particularmente relevante es que estos factores no parecen actuar de forma aislada, sino que tienden a organizarse en verdaderos “perfiles sociales”. El análisis de las clases latentes ha identificado, de hecho, tres perfiles distintos, mostrando que el caracterizado por las experiencias sociales más desfavorables presentaba probabilidades de prediabetes o diabetes tipo 2 más que dobles (OR=2,32) en comparación con el perfil de referencia (Harrison et al., 2025) [23].

Por último, es importante subrayar que el impacto del aislamiento social es transversal a todas las edades, pero resulta particularmente marcado precisamente en las fases más tempranas de la vida. Estudios de población muestran que los adolescentes y los adultos jóvenes representan uno de los grupos más vulnerables, con asociaciones particularmente fuertes entre el aislamiento social y las condiciones de salud negativas, incluyendo la depresión, los comportamientos poco saludables y la multimorbilidad (Hämmig, 2019) [24]. Este dato pone de relieve una criticidad a menudo subestimada: los jóvenes, a pesar de ser percibidos como una población de bajo riesgo, pueden en realidad estar profundamente influenciados por la calidad de sus relaciones sociales.

En conjunto, emerge un cuadro claro y coherente: la sociabilidad durante la infancia y la adolescencia no es un simple factor de bienestar, sino un determinante biológico fundamental. Las experiencias relacionales tempranas contribuyen a moldear los sistemas fisiológicos del organismo, influyendo en el riesgo de desarrollar patologías crónicas a lo largo de la vida.

Comprender esto significa reconocer que la prevención no comienza en la edad adulta, sino mucho antes. Invertir en la calidad de las relaciones sociales en los primeros años de vida no es solo una intervención educativa o psicológica, sino una verdadera estrategia de prevención metabólica, cardiovascular y sistémica.

Aislamiento social y soledad: incidencia en la mortalidad

Al analizar el papel de la sociabilidad en la salud humana, uno de los aspectos más relevantes y, al mismo tiempo, con mayor impacto, se refiere a su relación directa con la mortalidad. Ya no se trata solo de comprender si las relaciones influyen en el bienestar o en el riesgo de enfermedad, sino de observar cómo su presencia o ausencia puede incidir de manera concreta en la probabilidad misma de supervivencia.

Las evidencias epidemiológicas más sólidas muestran que el aislamiento social representa un importante predictor de mortalidad por todas las causas. Una vasta cohorte prospectiva, que incluyó a 580.182 adultos inscritos en el Cancer Prevention Study II, puso de manifiesto una asociación significativa entre el creciente aislamiento social y el riesgo de muerte. Al comparar a los individuos más aislados con los menos aislados, el riesgo de mortalidad por todas las causas resultaba más que duplicado en los hombres negros (HR=2,34) y en las mujeres negras (HR=2,13), mientras que aumentaba un 60% en los hombres blancos y un 84% en las mujeres blancas; la asociación con la mortalidad por todas las causas surgía, por tanto, en todos los grupos analizados, sin diferencias estadísticamente significativas entre hombres y mujeres. El vínculo no se limitaba a la mortalidad general: el aislamiento social también estaba asociado a una mayor mortalidad cardiovascular en cada subgrupo. En conjunto, estos resultados refuerzan la hipótesis de que la dimensión relacional representa un determinante relevante de la salud y la longevidad, capaz de ejercer su influencia en poblaciones diferentes por sexo y origen étnico (Alcaraz et al., 2019) [25].

Un aspecto particularmente significativo es que este aumento de riesgo no afecta solo a la mortalidad general, sino que se extiende a causas específicas, en particular las cardiovasculares. Estudios prospectivos han evidenciado que los individuos socialmente aislados presentan un riesgo casi duplicado de mortalidad cardiovascular, además de un incremento en la incidencia de eventos como el ictus (Kawachi et al., 1996) [26]. Este dato sugiere que la sociabilidad no actúa solo a nivel conductual, sino que interviene directamente en los mecanismos fisiopatológicos que regulan la función cardiovascular.

La fuerza de esta asociación emerge con aún mayor claridad cuando se analizan poblaciones clínicas. En los pacientes afectados por enfermedad coronaria, el aislamiento social se asocia a un aumento significativo del riesgo de muerte, tanto por causas cardíacas como por todas las causas, con valores más que duplicados respecto a los sujetos no aislados (Brummett et al., 2001) [27]. Este resultado es particularmente relevante porque persiste incluso después de controlar la gravedad de la enfermedad y otros factores de riesgo, lo que indica que la dimensión social influye directamente en el pronóstico clínico.

Un elemento clave que surge de estos estudios es que no cuenta solo la presencia de relaciones, sino también su calidad. Los pacientes socialmente aislados no necesariamente perciben una reducción en el número de contactos, sino más bien una menor calidad del apoyo social recibido. Esto sugiere que el beneficio de la sociabilidad no deriva simplemente de la cantidad de interacciones, sino de su capacidad para proporcionar apoyo emocional, seguridad y regulación del estrés.

También a nivel de población general, los datos confirman una relación clara y coherente entre aislamiento social y mortalidad. Estudios de cohorte realizados en contextos diferentes muestran que los sujetos más aislados presentan un aumento del riesgo de muerte comprendido entre el 40% y el 70%, con un gradiente continuo: cuanto mayor es el nivel de aislamiento, mayor es el riesgo (Laugesen et al., 2018) [28]. Esta tendencia sugiere un efecto dosis-respuesta, en el que la progresiva reducción de las relaciones sociales se traduce en un aumento proporcional de la vulnerabilidad biológica.

Un elemento adicional de gran interés se refiere a la dimensión temporal. No es solo la presencia de aislamiento social o soledad lo que se asocia a los resultados de salud, sino también su persistencia en el tiempo. Un estudio prospectivo realizado con 18.258 participantes del UK Biobank, de edades comprendidas entre 38 y 73 años, distinguió cuatro condiciones diferentes: ausencia, exposición transitoria, aparición en el tiempo y exposición persistente. Durante un seguimiento mediano de 8 años, el aislamiento social persistente, en comparación con su ausencia, resultó asociado a un aumento del 42% de la mortalidad por todas las causas y del 53% de la mortalidad cardiovascular. Una tendencia análoga se observó para la soledad persistente, asociada respectivamente a incrementos del 28% y del 52%. El análisis no se limitó a los eventos clínicos: en un subgrupo de 5.188 participantes, sometido a resonancia magnética cardiovascular, la persistencia y la acumulación de estas condiciones sociales resultaban asociadas también a una peor funcionalidad cardíaca. Estos resultados sugieren, por tanto, que la duración de la exposición representa un componente importante de la relación entre relaciones sociales y salud: las condiciones ocasionales o transitorias no parecen equivalentes a una situación de aislamiento o soledad mantenida durante años (Chen et al., 2024) [29].

Este concepto se ve reforzado aún más por estudios a largo plazo en poblaciones generales, que destacan cómo la soledad persistente está asociada a un aumento de la mortalidad de hasta el 57%, mientras que el aislamiento social conlleva un incremento significativo, aunque ligeramente inferior (Crowe et al., 2021) [30]. La diferencia entre estas dos dimensiones sugiere que la experiencia subjetiva de desconexión puede tener un impacto aún más profundo que la simple falta objetiva de relaciones.

Incluso en los contextos más avanzados desde el punto de vista socioeconómico, donde los sistemas de bienestar garantizan elevados niveles de asistencia sanitaria, la relación entre aislamiento social y mortalidad sigue siendo significativa. Este dato es particularmente importante porque indica que la dimensión relacional opera a través de mecanismos biológicos y conductuales que no pueden ser compensados completamente por factores externos (Laugesen et al., 2018) [28].

Por último, es relevante observar que el impacto del aislamiento social en la mortalidad no afecta exclusivamente a las franjas de edad avanzada, sino que emerge también en los adultos más jóvenes. El Estudio de Tromsø, realizado en Noruega con 17.796 participantes de edades comprendidas entre 25 y 69 años y con un seguimiento extendido hasta 2023, puso de manifiesto una asociación significativa entre aislamiento social, soledad y mortalidad por todas las causas. Durante el transcurso de la observación se registraron 3.729 fallecimientos; las mujeres más aisladas presentaban un riesgo de mortalidad superior en un 37% respecto a las menos aisladas, mientras que en los hombres el incremento alcanzaba el 41%. Un dato particularmente interesante emerge al considerar la edad: en los participantes que tenían menos de 50 años al inicio, la asociación resultaba aún más marcada, con un aumento del riesgo del 55% en las mujeres y del 76% en los hombres. También la soledad mostraba una asociación independiente con la mortalidad, con un riesgo superior del 51% en las mujeres y del 46% en los hombres. El estudio destaca, además, la posible persistencia en el tiempo de estas condiciones: una parte considerable de los participantes más aislados continuaba siéndolo también en las mediciones posteriores (Løvsletten y Brenn, 2024) [31].

En conjunto, emerge un panorama extremadamente claro: la sociabilidad no es solo un elemento de bienestar, sino un determinante directo de la supervivencia. Las relaciones sociales actúan como un sistema de regulación biológica, capaz de influir en el funcionamiento del sistema cardiovascular, inmunitario y neuroendocrino. Su ausencia, por el contrario, expone al organismo a una condición de vulnerabilidad sistémica que, con el tiempo, puede traducirse en un aumento concreto del riesgo de muerte.

Comprender esta relación significa reconocer que la salud no puede interpretarse exclusivamente en términos individuales. El ser humano está biológicamente diseñado para vivir en relación, y la calidad de estas relaciones representa uno de los factores más potentes para determinar no solo cómo vivimos, sino también cuánto tiempo vivimos.

Sociabilidad y disminución del riesgo

Si bien el aislamiento social se configura como un potente factor de riesgo para la mortalidad, la otra cara de la moneda está representada por el papel protector de las relaciones sociales. Comprender este aspecto significa desplazar la mirada de una lógica puramente negativa, lo que aumenta el riesgo, a una perspectiva activa y constructiva: lo que lo reduce. En este sentido, la sociabilidad no es solo un factor al que prestar atención cuando falta, sino un recurso biológico capaz de modular positivamente la supervivencia.

Las evidencias longitudinales muestran con claridad que los individuos insertos en redes sociales más amplias y estructuradas presentan una mayor probabilidad de supervivencia a lo largo del tiempo. En una cohorte de ancianos seguidos durante diez años, la presencia de relaciones sociales sólidas, en particular amistades activas y frecuentes, se asocia a una reducción significativa del riesgo de muerte, cercana al 22% en comparación con los sujetos más aislados (Giles et al., 2005) [32]. Este dato es particularmente relevante porque emerge incluso después de haber considerado variables como el estado de salud, las condiciones funcionales y los estilos de vida, lo que sugiere un efecto directo de las relaciones sociales sobre la longevidad.

Un aspecto interesante se refiere a la tipología de las relaciones. No todas las conexiones sociales producen el mismo efecto. Las relaciones de amistad, por ejemplo, parecen ejercer un impacto más marcado que los vínculos familiares. Este fenómeno puede interpretarse considerando la naturaleza de estas relaciones: las amistades se basan generalmente en la elección, la reciprocidad y el intercambio, elementos que favorecen un apoyo emocional auténtico y una mayor participación activa en la vida social. Por el contrario, los vínculos familiares, aunque fundamentales, pueden estar influidos por obligaciones o dinámicas más complejas que no siempre se traducen en un beneficio directo para la salud (Giles et al., 2005) [32].

Paralelamente, otros estudios destacan cómo la protección asociada a la sociabilidad no depende exclusivamente del número de relaciones, sino también de la estructura de la red social y del papel que el individuo ocupa en su interior. Un estudio realizado con 1.174 ancianos residentes en Leganés, España, seguidos durante seis años, mostró que tener a una persona de confianza estaba asociado a una reducción de cerca del 25% del riesgo de mortalidad, independientemente de diversas características sociodemográficas y sanitarias (Rodriguez-Laso et al., 2007) [33]. Sin embargo, el dato no parece atribuible simplemente al apoyo emocional recibido: este último, considerado por separado, no resultaba de hecho asociado a la supervivencia. Lo que emergía con mayor fuerza eran más bien los aspectos estructurales y participativos de las relaciones sociales. La falta de participación social estaba asociada a un riesgo de mortalidad superior al 50%, mientras que mantener roles significativos en la vida de las personas cercanas resultaba asociado a una mayor supervivencia. Esto introduce una dimensión particularmente importante: el beneficio de las relaciones no parece derivar solo de recibir apoyo, sino también de sentirse involucrado, útil y partícipe en la vida de los demás (Rodriguez-Laso et al., 2007) [33].

Un aspecto particularmente relevante es que estos efectos protectores persisten incluso después de haber considerado factores clínicos y funcionales. Esto significa que la sociabilidad no actúa simplemente como un indicador indirecto de buena salud, sino que representa un determinante independiente de la supervivencia. Incluso en presencia de comorbilidades o condiciones de fragilidad, mantener relaciones sociales activas sigue ofreciendo una ventaja significativa.

En conjunto, emerge un concepto clave: la sociabilidad funciona como un verdadero “factor protector sistémico”. Las relaciones sociales actúan en múltiples niveles simultáneamente: modulan el estrés, influyen en los comportamientos, apoyan la adherencia a los tratamientos y contribuyen al mantenimiento del equilibrio psicofísico. Este efecto integrado se traduce, a largo plazo, en una reducción concreta del riesgo de mortalidad.

La sociabilidad y otros factores de riesgo: la alimentación inadecuada

Si la sociabilidad representa un determinante directo de la salud y la supervivencia, uno de los aspectos más relevantes se refiere a su capacidad para influir en otros factores de riesgo, en particular aquellos relacionados con el estilo de vida. Entre ellos, la alimentación ocupa un papel central. Lo que emerge con creciente claridad de la literatura es que la calidad de la dieta no depende exclusivamente de elecciones individuales o conocimientos nutricionales, sino que está profundamente condicionada por el contexto social en el que vive el individuo.

Las evidencias a gran escala muestran que el aislamiento social está sistemáticamente asociado a comportamientos alimentarios menos saludables. En un análisis realizado con más de 67.000 adultos europeos, los individuos socialmente aislados presentan una probabilidad significativamente mayor de seguir una dieta inadecuada, caracterizada en particular por un reducido consumo de frutas y verduras (Delerue Matos et al., 2021) [34]. Este dato no es aislado, sino que emerge de forma coherente en numerosos contextos geográficos, lo que sugiere un patrón estable y reproducible.

La relación entre sociabilidad y alimentación parece aún más evidente cuando se analiza la calidad nutricional de la dieta. Los estudios indican que el aislamiento social está asociado a un aumento significativo del riesgo de carencias de micronutrientes esenciales, entre ellos magnesio, potasio, vitamina B6, folatos y vitamina C. Se trata de nutrientes fundamentales para el correcto funcionamiento del sistema inmunitario, cardiovascular y metabólico. Su carencia representa, por tanto, un posible mecanismo a través del cual el aislamiento social contribuye al desarrollo de patologías crónicas (Steptoe et al., 2024) [35].

Un elemento particularmente interesante es que esta asociación se refiere principalmente a la dimensión objetiva de la sociabilidad, es decir, el aislamiento, más que a la percepción subjetiva de soledad. En otras palabras, no es solo el sentirse solo lo que influye en la dieta, sino sobre todo el vivir en una condición de escasa integración social (Steptoe et al., 2024) [35]. Esto sugiere que factores concretos, como la falta de apoyo práctico o de contextos compartidos, desempeñan un papel determinante.

En apoyo a esta interpretación, los estudios muestran que los individuos socialmente aislados tienen una menor probabilidad de mantener comportamientos alimentarios saludables a lo largo del tiempo, incluido el consumo adecuado de frutas y verduras (Kobayashi & Steptoe, 2018) [36]. Este dato destaca cómo la sociabilidad no influye solo en elecciones episódicas, sino que contribuye a estructurar hábitos alimentarios estables a largo plazo.

La relación entre aislamiento y alimentación no se limita a la calidad nutricional, sino que involucra también las modalidades con las que se consume la comida. Una revisión sistemática de la literatura destaca que la soledad y el aislamiento están asociados a una reducción de la calidad general de la dieta, a un menor consumo de alimentos frescos y a un mayor recurso a alimentos de alta densidad energética (Hanna et al., 2023) [37]. En este contexto, la comida pierde su dimensión social y se convierte en un acto funcional o, en algunos casos, en un mecanismo de compensación emocional.

El concepto de comensalidad, es decir, el comer juntos, emerge como elemento clave para comprender este fenómeno. La comida compartida no representa solo un momento nutricional, sino una experiencia relacional que estructura el comportamiento alimentario. Su ausencia puede traducirse en una menor regularidad de las comidas, una reducida variedad alimentaria y una menor motivación para la preparación de comidas equilibradas (Hanna et al., 2023) [37].

Un elemento adicional a considerar es que el aislamiento social se asocia frecuentemente a otros comportamientos no saludables, creando un efecto acumulativo. Estudios en poblaciones generales muestran que los individuos aislados presentan simultáneamente una mayor probabilidad de dieta poco saludable, inactividad física y otros factores de riesgo (Hämmig, 2019) [24]. Esto sugiere que la sociabilidad no actúa sobre un único comportamiento, sino que influye en todo el estilo de vida.

Desde el punto de vista fisiológico y comportamental, diversos mecanismos pueden explicar estas asociaciones. En primer lugar, la falta de integración social reduce la exposición a normas y modelos comportamentales saludables, limitando el llamado “control social” que a menudo guía las elecciones cotidianas (Delerue Matos et al., 2021) [34]. En segundo lugar, la ausencia de apoyo práctico puede hacer más difícil el acceso a comida de calidad o la preparación de las comidas. Por último, la reducción de las ocasiones de compartir limita las oportunidades de estructurar comportamientos alimentarios regulares.

En conjunto, emerge una visión integrada: la alimentación no es un comportamiento aislado, sino un fenómeno profundamente social. Las elecciones nutricionales están influenciadas por relaciones, contextos y dinámicas de interacción que van mucho más allá de la dimensión individual.

Comprender esta conexión significa reconocer que intervenir en la alimentación sin considerar la sociabilidad corre el riesgo de ser parcial. Mejorar la calidad de la dieta no significa solo proporcionar indicaciones nutricionales, sino también crear condiciones sociales favorables: relaciones, contextos compartidos, apoyo e integración.

Desde esta perspectiva, la sociabilidad se convierte en un determinante indirecto pero potente de la alimentación, capaz de orientar comportamientos cotidianos y, a través de ellos, influir de forma profunda en el riesgo metabólico y la salud a largo plazo.

La vida social y el tabaquismo

Si la alimentación representa uno de los principales ámbitos en los que la sociabilidad ejerce una influencia indirecta pero profunda, el tabaquismo constituye un ejemplo aún más evidente de cómo los comportamientos de riesgo pueden ser moldeados por el contexto relacional. A diferencia de la dieta, que a menudo se percibe como una elección cotidiana vinculada al conocimiento y a la disponibilidad de alimentos, el consumo de tabaco se inserta en una dimensión más compleja, en la que factores emocionales, sociales y neurobiológicos se entrelazan estrechamente.

Las evidencias epidemiológicas muestran claramente que el aislamiento social está asociado a una mayor probabilidad de fumar. En una población representativa de más de 8.000 adultos mayores, los individuos socialmente aislados presentan una probabilidad más que doble de ser fumadores, con un aumento que llega a ser superior a cinco veces en los casos de aislamiento grave (Gimm et al., 2023) [38]. Este dato sugiere un efecto dosis-respuesta particularmente marcado: a medida que aumenta el aislamiento, aumenta de forma proporcional el riesgo de adoptar este comportamiento.

Este vínculo no se limita a la presencia o ausencia del comportamiento, sino que se extiende también a su intensidad. Estos estudios indican que niveles más elevados de soledad están asociados a un aumento significativo del número de cigarrillos fumados diariamente (Yang et al., 2022) [39]. En otras palabras, no solo las personas más aisladas tienen una mayor probabilidad de ser fumadoras, sino que también tienden a fumar más, amplificando aún más el riesgo.

Un aspecto particularmente interesante se refiere al papel de los comportamientos como mediadores entre el aislamiento social y la mortalidad. En pacientes con cardiopatía isquémica estable, el tabaquismo emerge como uno de los principales factores a través de los cuales la baja integración social se traduce en un aumento del riesgo de muerte (Kreibig et al., 2014) [40]. Este dato es de gran relevancia porque indica que la sociabilidad no actúa solo directamente sobre la fisiología, sino también indirectamente, modulando comportamientos que tienen un impacto concreto en la supervivencia.

Para comprender esta relación es útil considerar los mecanismos subyacentes. Uno de los más relevantes es la función del tabaquismo como estrategia de afrontamiento (comportamiento o pensamiento utilizado para gestionar el estrés y adaptarse a las dificultades). En condiciones de aislamiento, caracterizadas por mayor estrés, aburrimiento y malestar emocional, el consumo de nicotina puede convertirse en una herramienta de autorregulación, utilizada para modular estados internos negativos (Gimm et al., 2023) [38]. Esto explica por qué el aislamiento suele estar asociado también a niveles más elevados de ansiedad y depresión, que a su vez favorecen el mantenimiento del comportamiento.

Junto a esto, emerge un segundo mecanismo vinculado a la reducción del control social. En presencia de relaciones activas, los comportamientos individuales suelen estar influidos, de forma más o menos explícita, por normas compartidas, expectativas y la retroalimentación de los demás. La ausencia de este sistema de regulación puede facilitar la adopción y el mantenimiento de comportamientos de riesgo, como el tabaquismo (Gimm et al., 2023) [38]. En otras palabras, cuando falta el contexto social, también desaparece uno de los principales frenos conductuales.

Un elemento adicional se refiere a la posible bidireccionalidad de la relación. El tabaquismo, de hecho, puede a su vez contribuir al aislamiento social, tanto por razones vinculadas al estigma como por la reducción progresiva de las interacciones en contextos en los que el consumo de tabaco está limitado o socialmente desincentivado. Esto crea un círculo vicioso en el que el aislamiento y el tabaquismo se refuerzan mutuamente, haciendo más difícil interrumpir el comportamiento (Gimm et al., 2023) [38].

A un nivel más profundo, estudios experimentales sugieren también una base neurobiológica de esta asociación. Los modelos animales muestran que el aislamiento social es capaz de alterar los sistemas de recompensa, aumentando la sensibilidad a los estímulos asociados a la nicotina y facilitando la recaída (Mastrogiovanni et al., 2021) [41]. En estas condiciones, no es tanto la sustancia en sí la que cambia, sino la forma en que el cerebro responde a los estímulos que la evocan, haciendo que el comportamiento sea más automático y difícil de controlar.

Esta mayor vulnerabilidad emerge claramente también en contextos reales. Durante periodos de aislamiento forzado, como el confinamiento vinculado a la pandemia de SARS-CoV-2, una parte significativa de los fumadores aumentó el consumo de cigarrillos, con incrementos medios relevantes (Ferrante et al., 2020) [42]. Este dato confirma cómo la reducción de las interacciones sociales puede traducirse rápidamente en un empeoramiento de los comportamientos de salud.

En conjunto, el panorama que emerge es coherente y multidimensional. La sociabilidad actúa como un factor regulador del comportamiento: cuando está presente, contribuye a limitar la adopción de comportamientos de riesgo; cuando desaparece, deja espacio a dinámicas que favorecen el establecimiento y el mantenimiento de la dependencia.

Comprender esta relación significa reconocer que el tabaquismo no es simplemente una elección individual o una dependencia aislada, sino un comportamiento profundamente influido por el contexto social. Intervenir exclusivamente sobre el comportamiento individual, sin considerar la dimensión relacional, corre el riesgo, por tanto, de ser insuficiente.

Desde esta perspectiva, la sociabilidad se convierte en un elemento clave también en las estrategias de prevención y cesación tabáquica. Reforzar las redes sociales, promover la integración y reducir el aislamiento no representa solo una intervención en el bienestar psicológico, sino una palanca concreta para modificar comportamientos que inciden de forma directa en la salud y la supervivencia.

La vida social y la falta de adherencia a los tratamientos

Un ámbito adicional, a menudo menos visible pero igualmente crucial, se refiere a la adherencia al tratamiento farmacológico. En este caso, el problema no es tanto la adopción de un comportamiento perjudicial, sino la falta de ejecución de un comportamiento protector. Sin embargo, las consecuencias pueden ser igual de relevantes, especialmente en sujetos que padecen enfermedades crónicas.

Las evidencias muestran de manera coherente que el aislamiento social está asociado a una reducción significativa de la adherencia terapéutica. En grandes poblaciones de ancianos con enfermedades crónicas, los individuos socialmente aislados presentan una mayor probabilidad de no seguir correctamente las prescripciones farmacológicas, comprometiendo así la eficacia de los tratamientos (Lu et al., 2020) [43]. Este dato es particularmente relevante porque afecta a una dimensión central de la medicina moderna: la capacidad de transformar una terapia prescrita en un beneficio real para el paciente.

La relación entre sociabilidad y adherencia no es, sin embargo, directa y lineal, sino que está mediada por una serie de factores psicosociales. Entre ellos, el apoyo social emerge como un elemento clave. Los estudios basados en modelos de mediación demuestran que el aislamiento social reduce la disponibilidad de apoyo emocional, informativo y práctico, y que esta reducción representa el principal mecanismo a través del cual se produce la falta de adherencia (Lu et al., 2020) [43]. En otras palabras, no es simplemente el aislamiento en sí lo que determina el problema, sino lo que falta cuando las relaciones se reducen.

Esta dinámica también ha sido confirmada por diversos estudios, que muestran cómo el aislamiento social aumenta la soledad con el paso del tiempo y reduce progresivamente el apoyo social, con un efecto acumulativo negativo sobre la adherencia terapéutica (Yu et al., 2024) [44]. Esta tendencia sugiere que el problema no es estático, sino que evoluciona con el tiempo, volviéndose cada vez más relevante a medida que progresa el aislamiento.

Junto al apoyo social, la soledad representa otro factor crítico. A diferencia del aislamiento, que describe una condición objetiva, la soledad refleja una percepción subjetiva de desconexión. Estudios recientes indican que niveles elevados de soledad están asociados a una reducción de la adherencia a largo plazo, con efectos que se vuelven evidentes sobre todo después de meses o años (Fan et al., 2024) [45]. Esto sugiere que la dimensión emocional de la sociabilidad puede influir de manera progresiva en la motivación y la capacidad de seguir una terapia.

Un elemento particularmente interesante se refiere al papel de la autoeficacia, es decir, la percepción de ser capaz de gestionar correctamente el propio tratamiento. Estudios en pacientes hipertensos muestran que la soledad está asociada a una reducción de la autoeficacia, mientras que el apoyo social la incrementa (Hacihasanoglu Asilar et al., 2020) [46]. Este dato es fundamental porque la adherencia terapéutica no depende solo de la comprensión de las indicaciones médicas, sino también de la confianza del paciente en sus propias capacidades para aplicarlas en la vida cotidiana.

En este contexto, el apoyo social desempeña una función múltiple. Por un lado, proporciona ayuda práctica, recordatorios, asistencia en la gestión de los medicamentos y acompañamiento a las visitas médicas. Por otro lado, ofrece un apoyo emocional que reduce el estrés y aumenta la motivación. Esta doble función convierte a las redes sociales en uno de los determinantes más importantes de la adherencia terapéutica (Improta et al., 2026) [47].

Otro aspecto a considerar es que la falta de adherencia no es un fenómeno aislado, sino que a menudo se inserta en un marco más amplio de comportamientos de salud desfavorables. Como ya se observó con el tabaquismo y la alimentación, también en este caso el aislamiento social tiende a generar un efecto acumulativo, en el que diversos factores de riesgo se refuerzan mutuamente. Esto hace que la gestión clínica sea particularmente compleja, especialmente en pacientes con multimorbilidad.

En conjunto, emerge un concepto clave: la terapia farmacológica no es un acto puramente individual, sino un comportamiento profundamente influenciado por el contexto social. Seguir una terapia requiere organización, motivación, apoyo y continuidad, todas ellas dimensiones que se ven facilitadas u obstaculizadas por la calidad de las relaciones.

Comprender esta relación significa redefinir el concepto mismo de adherencia. No se trata simplemente de "tomar correctamente los medicamentos", sino de estar inserto en un sistema que hace posible este comportamiento a lo largo del tiempo. En ausencia de dicho sistema, incluso la mejor terapia corre el riesgo de perder eficacia. Bajo esta perspectiva, la sociabilidad se convierte en un componente integrante del proceso terapéutico. Intervenir en la adherencia significa, por tanto, no solo educar al paciente, sino también fortalecer sus redes relacionales, reducir el aislamiento y promover un contexto en el que el cuidado pueda ser realmente sostenido.

La vida social y la actividad física reducida

Si bien la alimentación, el tabaquismo y la adherencia terapéutica representan ámbitos en los que la sociabilidad modula comportamientos complejos, la actividad física constituye probablemente la expresión más inmediata y visible de esta influencia. El movimiento, de hecho, no es solo una función biológica, sino un comportamiento profundamente integrado en el contexto social: a menudo nace de ocasiones de interacción, intercambio y participación. Cuando estas dimensiones disminuyen, el nivel de actividad también tiende a reducirse de forma significativa.

Las evidencias muestran de manera coherente que el aislamiento social está asociado a una disminución de la actividad física y a un aumento del comportamiento sedentario. Estudios basados en mediciones objetivas mediante acelerómetros ponen de manifiesto que los individuos socialmente aislados presentan niveles significativamente inferiores de actividad física total y pasan más tiempo en condiciones de sedentarismo, independientemente de factores como la edad, el estado de salud o las condiciones socioeconómicas (Schrempft et al., 2019) [48]. Este dato es especialmente relevante porque indica un efecto directo de la sociabilidad sobre el comportamiento motor, no mediado exclusivamente por condiciones clínicas o limitaciones funcionales.

Un aspecto interesante se refiere a la distinción entre aislamiento social y soledad. Mientras que el primero, entendido como una condición objetiva de red relacional reducida, muestra una asociación clara con la reducción de la actividad física, la soledad percibida no siempre presenta la misma relación (Schrempft et al., 2019) [48]. Esto sugiere que la presencia concreta de relaciones y contextos sociales representa un estímulo directo para el movimiento, independientemente de la percepción subjetiva.

Sin embargo, cuando se analiza la dimensión longitudinal, emerge también el papel de la soledad como factor predictivo. Estudios prospectivos demuestran que los individuos que experimentan niveles más elevados de soledad tienen una probabilidad significativamente menor de practicar actividad física en los años siguientes y una mayor tendencia a volverse sedentarios (Hawkley et al., 2009) [49]. Este dato destaca cómo la dimensión emocional de la desconexión social puede influir progresivamente en el comportamiento, reduciendo la motivación y la capacidad de mantener un estilo de vida activo.

Junto a estos datos, emerge con fuerza el papel protector del bienestar social. Niveles más elevados de apoyo social y participación activa en la vida comunitaria están asociados a una reducción significativa del tiempo dedicado a actividades sedentarias y a un aumento de los niveles de actividad física, incluso de tipo ligero (Chen et al., 2021) [51]. Este efecto es particularmente evidente en los grupos de edad más avanzada, lo que sugiere que, a medida que aumenta la edad, la sociabilidad se convierte en un factor cada vez más determinante para mantener un estilo de vida activo.

Esta relación emerge de forma transversal también en poblaciones más jóvenes. Estudios realizados en estudiantes universitarios muestran que niveles elevados de soledad están asociados a una mayor probabilidad de inactividad física y a una mayor presencia de comportamientos sedentarios (Jiang et al., 2024) [50]. Esto sugiere que la influencia de la sociabilidad en la actividad física no se limita a la edad avanzada, sino que se distribuye a lo largo de todo el ciclo vital.

Para comprender estos resultados es útil considerar los mecanismos subyacentes. Por un lado, la sociabilidad crea oportunidades concretas de movimiento: salir, reunirse, participar en actividades grupales implica inevitablemente un aumento de la actividad física. Por otro lado, actúa a nivel motivacional y emocional. La presencia de relaciones favorece el intercambio de objetivos, el apoyo recíproco y la continuidad de los comportamientos a lo largo del tiempo.

Un elemento particularmente relevante se refiere al papel de la regulación emocional. Estudios de apoyo indican que la soledad puede reducir la capacidad de modular los estados emocionales, haciendo más difícil mantener comportamientos saludables como la actividad física (Hawkley et al., 2009) [49]. En este contexto, el movimiento pierde su dimensión de gratificación y se vuelve más difícil de sostener en el tiempo.

En conjunto, emerge un panorama coherente: la sociabilidad no solo facilita la actividad física, sino que representa uno de sus principales determinantes. Su ausencia, por el contrario, favorece la inactividad y el sedentarismo, dos condiciones estrechamente asociadas a un aumento del riesgo metabólico, cardiovascular y sistémico. Comprender esta relación significa reconocer que promover la actividad física no puede limitarse a indicaciones individuales o programas estructurados. Es necesario intervenir también en el contexto social, creando condiciones que favorezcan la participación, la integración y el intercambio.

Desde esta perspectiva, el movimiento no es solo un comportamiento biológico, sino un fenómeno social. Y, como tal, depende en gran medida de la calidad de las relaciones que rodean al individuo.

La soledad y el metabolismo de la insulina

Si bien en los párrafos anteriores la sociabilidad surgió como un determinante de los comportamientos de salud, en el caso del metabolismo de la insulina el nivel de profundidad cambia radicalmente. Aquí ya no se habla solo de elecciones o hábitos, sino de verdaderos mecanismos biológicos que conectan directamente la dimensión relacional con el funcionamiento celular. La soledad y el aislamiento social, de hecho, no se limitan a influir indirectamente en el riesgo metabólico, sino que parecen actuar directamente sobre los procesos que regulan la glucemia y la sensibilidad a la insulina.

Las evidencias epidemiológicas más amplias muestran que la dimensión social representa un determinante independiente de la resistencia a la insulina. En una cohorte de más de 117.000 individuos, el bajo apoyo social resulta significativamente asociado a un aumento del riesgo de resistencia a la insulina, con valores casi triplicados respecto a los sujetos con redes sociales más sólidas (Riutord-Sbert et al., 2025) [52]. Este dato es particularmente relevante porque emerge incluso después de haber controlado factores tradicionales como la dieta, la actividad física y el tabaquismo, lo que sugiere un efecto directo de la sociabilidad sobre el metabolismo glucídico.

Esta asociación se inserta en un marco más amplio de disregulación metabólica. Los estudios indican que niveles más elevados y estables de integración social están asociados a una reducción significativa del riesgo de alteraciones metabólicas, incluyendo obesidad abdominal, hipertensión y disfunciones glucémicas (Yang et al., 2013) [53]. Por el contrario, la reducción de las relaciones sociales se traduce en un aumento de la carga metabólica global, destacando cómo la sociabilidad actúa como un verdadero regulador sistémico.

Un elemento particularmente importante se refiere a la dimensión subjetiva de la soledad. Estudios al respecto muestran que la soledad está asociada a un empeoramiento progresivo de diversos biomarcadores metabólicos, entre ellos la hemoglobina glicosilada, el índice de masa corporal y la carga metabólica global (Shiovitz-Ezra y Parag, 2019) [54]. En términos prácticos, esto significa que los individuos solos tienen una probabilidad hasta un 70% mayor de desarrollar condiciones metabólicas desfavorables con el tiempo.

Este efecto se vuelve aún más evidente cuando la soledad se asocia a otros factores psicológicos, como la depresión. En estas condiciones, el riesgo metabólico aumenta de forma significativa, contribuyendo al desarrollo de multimorbilidad (de la Torre-Luque et al., 2021) [55]. Esto sugiere que la soledad no actúa de forma aislada, sino que se inserta en una red de factores psicosociales que amplifican el riesgo biológico.

Desde el punto de vista fisiológico, una de las primeras señales de esta alteración se refiere a la glucemia. Estudios longitudinales muestran que el aumento del estrés y del aislamiento social está asociado a un incremento progresivo de la glucemia en ayunas, independientemente de factores como la edad y el índice de masa corporal (Fang et al., 2024) [56]. Este dato es particularmente significativo porque la glucemia en ayunas representa uno de los primeros indicadores de disfunción metabólica.

A un nivel aún más profundo, estudios experimentales permiten observar directamente los mecanismos biológicos involucrados. Modelos animales demuestran que el aislamiento social es capaz de comprometer la sensibilidad a la insulina tanto a nivel central como periférico, incluso en ausencia de alteraciones evidentes de la glucemia (Bove et al., 2022) [57]. En estos modelos, el aislamiento induce un aumento del índice HOMA, indicativo de resistencia a la insulina precoz, acompañado de alteraciones de la señalización insulínica en tejidos clave como el cerebro y el hígado.

Un elemento central de este proceso está representado por el estrés oxidativo. El aislamiento social determina un aumento de las especies reactivas del oxígeno y un desequilibrio en los sistemas antioxidantes, con el consiguiente daño a nivel hepático y alteración de las vías de señalización insulínica (Bove et al., 2022) [57]. Este mecanismo sugiere que el estrés psicosocial puede traducirse en una alteración concreta de la función celular, anticipando el desarrollo de patologías metabólicas.

En conjunto, emerge un modelo integrado en el que la soledad y el aislamiento social actúan a través de múltiples vías simultáneas. Por un lado, influyen en los comportamientos de salud, como la alimentación y la actividad física; por otro, activan directamente sistemas biológicos vinculados al estrés, la inflamación y el metabolismo energético.

Comprender esta relación significa reconocer que la insulina no está regulada exclusivamente por factores nutricionales o genéticos, sino también por variables relacionales. La calidad de las conexiones sociales se convierte así en parte integrante de la regulación metabólica.

En esta perspectiva, la soledad puede interpretarse como un estresor crónico capaz de alterar progresivamente el equilibrio fisiológico, mientras que la sociabilidad representa un factor protector capaz de mantener la estabilidad de los sistemas biológicos.

El mensaje que emerge es claro: el metabolismo no es un sistema aislado, sino que está profundamente interconectado con el entorno social. Y, entre todos los factores que lo influyen, las relaciones humanas representan uno de los más potentes y, al mismo tiempo, más subestimados.

La soledad y el cortisol

Si la relación entre la soledad y la insulina pone de manifiesto cómo los factores sociales pueden influir directamente en el metabolismo, el vínculo con el cortisol representa el paso fisiológico que hace posible esta conexión. El cortisol, de hecho, es la hormona clave de la respuesta al estrés y constituye uno de los principales mediadores a través de los cuales las experiencias psicosociales se traducen en señales biológicas.

Desde el punto de vista fisiológico, todo converge en un sistema central: el eje hipotalámico-hipofisario-adrenal (HPA). Este eje regula la producción de cortisol y se activa cada vez que el organismo percibe una amenaza. En las especies sociales, incluido el ser humano, el aislamiento y la soledad representan precisamente este tipo de señal: una condición interpretada por el cerebro como potencialmente peligrosa para la supervivencia (Hawkley et al., 2012) [58]. En respuesta, el organismo activa una cascada neuroendocrina que conduce al aumento de los glucocorticoides.

A corto plazo, esta respuesta tiene un significado adaptativo: moviliza energía, modula la inflamación y prepara al organismo para afrontar el estrés. Sin embargo, cuando la soledad se vuelve crónica, este sistema pierde su función reguladora y experimenta una verdadera desregulación. Se observan alteraciones en los ritmos circadianos del cortisol (variación diaria del cortisol según el ciclo sueño-vigilia), con modificaciones de la respuesta al despertar y de la pendiente diurna (Hawkley et al., 2012) [58].

Las evidencias en humanos confirman este modelo. Estudios en adultos jóvenes muestran que niveles más elevados de soledad están asociados a una mayor producción total de cortisol a lo largo del día y a una alteración de su ritmo circadiano (Lai et al., 2019) [59]. De manera análoga, otros trabajos destacan una combinación de respuesta al despertar atenuada y aumento de la secreción general, lo que sugiere una condición de estrés crónico con pérdida de la regulación fisiológica del eje HPA (Lai et al., 2018) [60].

Este esquema surge ya en las fases más tempranas de la vida. Durante la transición a la edad adulta, un aumento de la soledad está asociado a una modificación de la pendiente diurna del cortisol, indicativa de una respuesta al estrés menos eficiente (Drake et al., 2016) [61]. Es interesante notar cómo, en este contexto, factores psicológicos como la capacidad de afrontamiento (coping) pueden atenuar tales alteraciones, lo que sugiere que la respuesta biológica al estrés no es rígida, sino modulable.

Paralelamente, estudios en adultos de mediana edad muestran que la soledad está asociada a una mayor reactividad del cortisol al estrés, en particular en la fase del despertar (Steptoe et al., 2004) [62]. Este dato indica una condición de hiperactivación del sistema de respuesta al estrés, que con el tiempo puede contribuir al desarrollo de patologías crónicas.

Un elemento particularmente relevante se refiere a la interacción entre la soledad y el estrés cotidiano. Las evidencias muestran que la soledad no actúa solo como un factor independiente, sino que amplifica la respuesta fisiológica a los eventos estresantes. En sujetos más solitarios, las dificultades cotidianas se asocian a incrementos más marcados del cortisol, lo que pone de relieve una mayor vulnerabilidad biológica (Lai et al., 2019) [59]. En otras palabras, la soledad hace que el organismo sea más sensible al estrés.

A largo plazo, esta hiperactivación crónica se traduce en un aumento de la denominada carga alostática, es decir, el desgaste progresivo de los sistemas biológicos debido a la exposición prolongada al estrés. La soledad está, de hecho, asociada a una activación persistente del eje HPA, a niveles elevados de cortisol y a una reducida sensibilidad a los glucocorticoides, con la consiguiente afectación de los mecanismos de retroalimentación (Warren, 2025) [63]. Este estado de desregulación representa uno de los principales puentes entre el estrés psicosocial y la enfermedad.

Junto a la cantidad de relaciones, emerge también el papel de su calidad. Estudios en ancianos muestran que no es tanto el número de contactos sociales lo que influye en el cortisol, sino la capacidad de cultivar activamente las relaciones. Los individuos más involucrados en el mantenimiento de sus vínculos presentan un perfil circadiano más eficiente, caracterizado por niveles más bajos de cortisol y por un declive diurno más marcado (Lai et al., 2012) [64]. Esto sugiere que la sociabilidad no es solo presencia, sino participación activa.

En conjunto, emerge un modelo claro y coherente. La soledad activa el eje del estrés, aumentando la producción de cortisol; cuando esta condición persiste, el sistema pierde su capacidad de autorregulación, generando un estado de hiperactivación crónica. Este estado, a su vez, influye en otros sistemas fisiológicos, incluidos el inmunitario y el metabólico.

Comprender este mecanismo es fundamental porque el cortisol representa uno de los principales puntos de conexión entre la mente y el cuerpo. Es a través de esta hormona que experiencias aparentemente "inmateriales", como la calidad de las relaciones, se convierten en señales biológicas concretas.

Desde esta perspectiva, la soledad ya no puede considerarse solo una condición emocional, sino un estresor crónico capaz de alterar profundamente el equilibrio fisiológico. Por el contrario, la sociabilidad actúa como un regulador natural del sistema del estrés, contribuyendo a mantener la estabilidad del organismo. El resultado es una visión integrada en la que las relaciones humanas no representan un elemento accesorio de la vida, sino uno de los principales moduladores de los sistemas biológicos que determinan la salud y la enfermedad.

El cortisol y REDD1

El estrés crónico y el exceso de cortisol no solo afectan a la mente, sino que alteran directamente el metabolismo. A través de mediadores como REDD1, la señal del estrés interfiere con la vía de la insulina, reduciendo progresivamente la sensibilidad celular a esta hormona. Es aquí donde la respuesta biológica al estrés puede transformarse en resistencia a la insulina, alteraciones glucémicas y disfunciones metabólicas crónicas.

Comprender el vínculo entre el cortisol y REDD1 significa, por tanto, adentrarse en el corazón del mecanismo mediante el cual el estrés crónico modifica el metabolismo, el crecimiento celular y, en última instancia, el estado de salud del organismo.

Desde el punto de vista molecular, el paso clave está representado por la activación del receptor de glucocorticoides. Cuando el cortisol aumenta, como ocurre en condiciones de estrés crónico o soledad, se une a este receptor y activa su función transcripcional, induciendo la expresión de genes específicos sensibles al estrés. Entre ellos, REDD1 emerge como uno de los más relevantes (Koyanagi y Arimura, 2020) [65].

REDD1, como ya hemos visto en el capítulo 4 dedicado a la vía de la insulina, es una proteína altamente conservada que se induce rápidamente en respuesta a diversas formas de estrés, entre ellas la hipoxia, el daño al ADN y, sobre todo, la exposición a los glucocorticoides (Canal et al., 2014) [66]. Este elemento es fundamental porque sitúa a REDD1 como un auténtico sensor celular del estrés: cada vez que el sistema percibe una amenaza prolongada, su expresión aumenta.

Las evidencias experimentales demuestran directamente este vínculo. La exposición a glucocorticoides sintéticos, como la dexametasona, determina un aumento rápido y significativo de la expresión de REDD1 en diversos tejidos, incluidos el músculo esquelético y las células inmunitarias (Wang et al., 2006) [67]. Este incremento no es un fenómeno secundario, sino que representa un paso clave a través del cual los glucocorticoides ejercen sus efectos catabólicos (efectos que favorecen la degradación de las reservas del organismo).

El papel funcional de REDD1 emerge con claridad cuando se analiza su principal objetivo: la vía mTOR. Esta vía representa uno de los sistemas centrales de regulación del crecimiento celular, la síntesis proteica y el metabolismo energético. En condiciones fisiológicas, mTOR promueve la construcción y el mantenimiento de los tejidos; por el contrario, cuando se inhibe, el organismo entra en un modo de ahorro energético y catabolismo.

REDD1 actúa exactamente en este punto. Una vez inducido por los glucocorticoides, inhibe la señalización de mTOR a través de la activación del complejo de la esclerosis tuberosa TSC1/TSC2 y la consiguiente inactivación de un activador directo de mTOR. Esto conduce a una reducción de la fosforilación de los principales objetivos de mTOR y, por tanto, a una disminución de la síntesis proteica (Wang et al., 2006) [67].

Este mecanismo también ha sido confirmado por estudios independientes, que identifican a REDD1 como un potente regulador negativo de la vía mTOR en respuesta al estrés celular (Corradetti et al., 2005) [68]. En otras palabras, REDD1 representa el punto en el que la señal del estrés se traduce en una modificación concreta del metabolismo celular.

Las implicaciones de este proceso son profundas. En condiciones de estrés agudo, la inhibición temporal de mTOR puede tener un significado adaptativo: reduce el consumo energético y favorece procesos de supervivencia, como la autofagia, que permite a la célula eliminar componentes dañados y reciclar recursos (Molitoris et al., 2011) [69]. En este contexto, REDD1 desempeña una función protectora.

Sin embargo, cuando la activación del sistema se vuelve crónica, como ocurre en presencia de estrés persistente o soledad prolongada, este equilibrio se rompe. La expresión continua de REDD1 mantiene a mTOR en un estado de inhibición persistente, favoreciendo procesos catabólicos en detrimento de los anabólicos. Esto se traduce en pérdida de masa muscular, reducción de la síntesis proteica y alteraciones metabólicas más amplias.

Los modelos experimentales confirman este escenario. En condiciones de estrés crónico, caracterizadas por niveles elevados de cortisol, se observa un aumento de la expresión de REDD1 asociado a una activación de las vías catabólicas y a una supresión de la señalización IGF-1/AKT/mTOR (Batsukh et al., 2023) [70]. Este desequilibrio representa uno de los mecanismos principales a través de los cuales el estrés crónico contribuye al deterioro de la función muscular y metabólica.

Un elemento adicional emerge del análisis del sistema nervioso central. Los estudios experimentales demuestran que la hipercortisolemia crónica está asociada a un aumento de la expresión de REDD1 en el cerebro, acompañado de una reducción de la señalización AKT-mTOR y de un aumento de la proteólisis (proceso de degradación de las proteínas) (Nipu et al., 2022) [71]. Esto sugiere que los efectos del estrés no se limitan a los tejidos periféricos, sino que también involucran directamente la regulación energética central.

En conjunto, emerge un modelo integrado y coherente. El cortisol, producido en respuesta a la soledad y al estrés crónico, activa el receptor de glucocorticoides e induce la expresión de REDD1. Este último, a su vez, inhibe la vía mTOR, desplazando el equilibrio celular de un estado anabólico a uno catabólico.

Este paso representa uno de los puntos más críticos de la fisiología del estrés, porque conecta directamente una experiencia psicosocial, como la soledad, con una modificación estructural del metabolismo energético celular. Ya no se trata de una influencia indirecta, sino de una verdadera vía biológica.

Desde esta perspectiva, REDD1 puede considerarse como un "traductor molecular" del estrés: transforma señales ambientales y relacionales en modificaciones concretas de la función celular. Cuando este sistema se activa de forma aguda, favorece la adaptación; cuando se vuelve crónico, contribuye a la disfunción y a la enfermedad.

El resultado final es una visión profundamente integrada de la fisiología humana, en la que la mente, las relaciones y la biología celular no son elementos separados, sino partes de un único sistema interconectado.

REDD1 y mTOR

Si REDD1 representa el punto de traducción molecular del estrés, su relación con mTOR constituye uno de los nodos centrales a través de los cuales esta señal se transforma en una modificación concreta del metabolismo celular. Para comprender este paso, es necesario partir de un principio fundamental: mTOR, como ya hemos visto en el capítulo 4 dedicado a la vía de señalización de la insulina, no es simplemente una proteína, sino un verdadero regulador del crecimiento, de la síntesis proteica y del equilibrio energético de la célula. Cuando mTOR está activo, la célula crece, sintetiza proteínas y consume energía; cuando se inhibe, el sistema entra en un modo de ahorro, ralentizando los procesos anabólicos.

En este contexto, REDD1 se inserta como uno de los principales reguladores negativos de mTOR, actuando como un verdadero interruptor molecular sensible al estrés. Numerosas evidencias demuestran que la inducción de REDD1 conduce a una supresión directa de la actividad de mTORC1, con la consiguiente reducción de la fosforilación de sus principales objetivos, fundamentales para la síntesis proteica (Brugarolas et al., 2004) [72].

El mecanismo a través del cual esto ocurre es extremadamente refinado. REDD1 no actúa directamente sobre mTOR, sino que modula un sistema regulador ascendente, representado por el complejo TSC1/TSC2. En condiciones fisiológicas, las señales de crecimiento activan AKT, que inhibe TSC2 permitiendo que mTOR permanezca activo. Sin embargo, cuando se induce REDD1, este equilibrio se invierte: la proteína reactiva el complejo TSC1/TSC2 y determina así la inhibición de mTOR (DeYoung et al., 2008) [73].

Este paso representa un verdadero punto de control metabólico. REDD1 funciona como un sensor que intercepta señales de estrés, hipoxia, daño celular y glucocorticoides, y los convierte en una respuesta adaptativa: apagar mTOR para reducir el consumo energético y favorecer la supervivencia celular (Kim et al., 2023) [74]. En otras palabras, cuando los recursos se vuelven limitados o el entorno se vuelve hostil, la célula interrumpe los procesos de crecimiento para preservar energía.

Las evidencias experimentales confirman de forma directa esta relación. En células de mieloma múltiple resistentes, la inducción de REDD1 se asocia a una rápida desfosforilación de S6K (enzima activada principalmente por mTORC1 que contribuye a regular la síntesis de proteínas y el crecimiento celular) y a una reducción del tamaño celular, signos típicos de la supresión de la vía mTORC1 (Decaux et al., 2010) [75]. Este dato demuestra que la activación de REDD1 no es un fenómeno teórico, sino que se traduce en modificaciones concretas de la fisiología celular.

Un aspecto particularmente interesante es que este mecanismo puede asumir un doble significado biológico. En condiciones agudas, la inhibición de mTOR mediada por REDD1 representa una respuesta protectora: reduce el consumo energético, activa la autofagia y permite que la célula se adapte al estrés. Esto es evidente, por ejemplo, en contextos de hipoxia, donde la supresión de mTOR permite que la célula sobreviva en condiciones de escasa disponibilidad de oxígeno (DeYoung et al., 2008) [73].

Sin embargo, cuando este sistema permanece activo de forma crónica, el panorama cambia radicalmente. La inhibición persistente de mTOR conduce a una reducción prolongada de la síntesis proteica, a un aumento de la autofagia y a una prevalencia de los procesos catabólicos. Esto puede traducirse en pérdida de masa muscular, disfunción metabólica y compromiso de la capacidad regenerativa de los tejidos.

Las implicaciones de este mecanismo emergen claramente también en contextos patológicos. Estudios en modelos de fibrosis hepática muestran que la sobreexpresión de REDD1 atenúa la activación de la vía PI3K/AKT/mTOR, reduciendo la proliferación celular y la deposición de matriz extracelular (Li et al., 2025) [76]. En este caso, la inhibición de mTOR asume un papel protector, limitando la progresión de la enfermedad.

Por el contrario, en otros contextos, como el daño pulmonar inducido por el tabaco, la activación de REDD1 y la consiguiente inhibición de mTOR contribuyen al aumento del estrés oxidativo, a la inflamación y a la apoptosis celular (Yoshida et al., 2010) [77]. Esto destaca un concepto fundamental: la relación entre REDD1 y mTOR no es intrínsecamente "buena" o "mala", sino que depende del contexto y de la duración de la activación.

En conjunto, emerge un modelo extremadamente coherente. REDD1 representa un sensor del estrés que, a través de la activación del complejo TSC1/TSC2, inhibe mTOR y desplaza a la célula de un estado anabólico a uno catabólico. Este paso permite una adaptación rápida a las condiciones adversas, pero, si se mantiene en el tiempo, puede contribuir a la disfunción y a la enfermedad.

Comprender este equilibrio es fundamental porque mTOR representa uno de los principales reguladores de la longevidad celular y del metabolismo sistémico. Su modulación por parte de REDD1 constituye, por tanto, uno de los puntos de conexión más profundos entre el entorno, el estrés y la biología celular.

Desde esta perspectiva, la relación REDD1–mTOR no es simplemente una vía bioquímica, sino un verdadero sistema de adaptación evolutiva: un mecanismo que permite al organismo sobrevivir al estrés, pero que, si se activa de forma crónica, puede convertirse en uno de los principales motores de la disfunción metabólica.

Inhibición de mTOR y resistencia a la insulina

Si la relación entre REDD1 y mTOR representa el punto de inflexión entre el estrés y la regulación celular, es precisamente en la consiguiente inhibición de mTOR donde se manifiesta uno de los efectos metabólicos más relevantes: el desarrollo de la resistencia a la insulina. Este paso cierra el círculo fisiológico iniciado con la soledad y el estrés, mostrando cómo una señal inicialmente psicosocial puede traducirse en una disfunción metabólica sistémica.

Las evidencias experimentales demuestran claramente que la inhibición de mTOR, tanto aguda como crónica, compromete profundamente la sensibilidad a la insulina. Estudios in vivo muestran que el bloqueo farmacológico de la quinasa mTOR induce rápidamente resistencia a la insulina sistémica, acompañada de intolerancia a la glucosa y una alteración en la utilización de los sustratos energéticos (Kleinert et al., 2014) [78]. Este dato es particularmente significativo porque destaca cómo la función de mTOR no es accesoria, sino central en la regulación del metabolismo glucídico.

Un elemento clave de este proceso está representado por el papel diferencial de los dos complejos mTORC1 y mTORC2. Si bien mTORC1 está principalmente involucrado en el crecimiento celular y en la síntesis proteica, mTORC2 desempeña una función esencial en la regulación de la señalización insulínica. La inhibición de mTORC2 conlleva una reducción de la fosforilación de AKT, uno de los principales mediadores de la acción de la insulina, determinando así una menor capacidad de las células para responder al estímulo insulínico (Lamming et al., 2012) [79].

Esta distinción es fundamental para comprender la naturaleza de la resistencia a la insulina inducida por la inhibición de mTOR. No se trata simplemente de una reducción de la sensibilidad periférica, sino de una alteración directa de la cascada de señalización de la insulina. En ausencia de una correcta activación de AKT, se comprometen procesos esenciales como la translocación de los transportadores GLUT4 y la absorción de glucosa en los tejidos periféricos.

Las evidencias a nivel tisular confirman este mecanismo. En el músculo esquelético, principal sitio de captación de glucosa, la inhibición crónica de mTOR determina una reducción significativa de la absorción glucídica, asociada a un compromiso de la vía AKT-AS160 y a una disminución de la expresión y la translocación de GLUT4 (Deblon et al., 2012) [80]. Esto se traduce en una menor capacidad del músculo para utilizar la glucosa, contribuyendo directamente a la resistencia a la insulina sistémica.

Un cuadro análogo surge también en el tejido adiposo humano. Estudios en adipocitos maduros demuestran que la rapamicina (un fármaco que actúa como inhibidor de mTOR) reduce significativamente la absorción de glucosa tanto en condiciones basales como tras la estimulación insulínica, a través de una reducción de la fosforilación de AKT y de otros mediadores clave de la señalización de la insulina (Pereira et al., 2012) [81]. Este dato es particularmente relevante porque confirma que el efecto no se limita a los modelos animales, sino que también se manifiesta en los tejidos humanos.

Junto a las alteraciones periféricas, surge también una implicación de la función pancreática. La inhibición crónica de mTORC1 mediante rapamicina determina una reducción de la masa de las células β pancreáticas, una disminución del contenido de insulina y un compromiso de la secreción insulínica (Yang et al., 2012) [82]. En este caso, la resistencia a la insulina se asocia a una menor disponibilidad de insulina, creando una condición metabólica particularmente desfavorable.

Este conjunto de evidencias aclara un concepto fundamental: la inhibición de mTOR no actúa en un solo nivel, sino que involucra simultáneamente múltiples compartimentos fisiológicos. Por un lado, reduce la capacidad de los tejidos periféricos para responder a la insulina; por otro, compromete la producción misma de la hormona. El resultado es una disfunción integrada de la homeostasis glucídica.

Un aspecto particularmente interesante se refiere a la dimensión temporal de estos efectos. La inhibición aguda de mTOR puede determinar alteraciones rápidas pero reversibles de la sensibilidad a la insulina, mientras que la inhibición crónica conduce a modificaciones estructurales más profundas, como la reducción de la masa de células β y la reorganización de las vías metabólicas (Yang et al., 2012) [82]. Esto sugiere que la duración de la exposición representa un elemento crítico en la transición de la adaptación a la disfunción.

En conjunto, surge un modelo coherente y multinivel. La inhibición de mTOR, inicialmente activada como respuesta adaptativa al estrés, puede transformarse con el tiempo en un factor patogénico, contribuyendo al desarrollo de la resistencia a la insulina y de las alteraciones glucémicas.

Desde esta perspectiva, la vía cortisol/REDD1/mTOR/resistencia a la insulina representa una de las conexiones más profundas entre el entorno, el estrés y el metabolismo. Lo que comienza como una respuesta protectora —reducir la actividad anabólica en condiciones adversas— puede, si se prolonga en el tiempo, comprometer el equilibrio metabólico.

El resultado final es una visión integrada en la que la regulación de la insulina no depende exclusivamente de nutrientes o genes, sino también de señales celulares moduladas por el estrés y la calidad de las relaciones. En este sentido, la resistencia a la insulina no es solo una condición metabólica, sino la expresión final de un sistema complejo en el que la biología y el entorno están profundamente interconectados.

Conclusiones

En conjunto, las evidencias analizadas muestran que la sociabilidad no representa solo una dimensión psicológica de la existencia, sino un componente profundamente arraigado en la biología humana. Los estudios epidemiológicos asocian relaciones sociales sólidas con una mayor supervivencia, mientras que el aislamiento y la soledad, especialmente cuando son persistentes, se acompañan de un aumento de la mortalidad y del riesgo cardiovascular.

Esta relación encuentra una explicación evolutiva en la propia organización del cerebro humano: la vida en grupos complejos ha favorecido el desarrollo de capacidades cognitivas dedicadas a la cooperación, la comunicación y la gestión de las relaciones. Las observaciones sobre las sociedades de cazadores-recolectores refuerzan esta perspectiva, mostrando cómo la distribución de recursos, el aprendizaje social y las redes extensas han representado herramientas fundamentales de adaptación y supervivencia.

La vulnerabilidad a la desconexión emerge ya en las primeras etapas de la vida: el aislamiento durante la infancia y la adolescencia se ha asociado, en los estudios presentados, a una mayor inflamación, riesgo cardiovascular, obesidad y alteraciones metabólicas en años posteriores. Las relaciones sociales parecen, por tanto, dejar una verdadera huella biológica a lo largo del tiempo. Los efectos se vuelven aún más evidentes al observar los comportamientos cotidianos.

El aislamiento se asocia a una calidad alimentaria inferior, mayor riesgo de carencias nutricionales, aumento del tabaquismo, menor adherencia a los tratamientos y reducción de la actividad física. La sociabilidad puede, por tanto, influir indirectamente en la salud al modular numerosos factores de riesgo simultáneamente.

El siguiente paso, sin embargo, nos lleva más allá del comportamiento y directamente al metabolismo. Las evidencias presentadas vinculan el bajo apoyo social y la soledad con un mayor riesgo de resistencia a la insulina, alteraciones de la glucemia y empeoramiento de diversos indicadores metabólicos. Los modelos experimentales sugieren, además, alteraciones de la sensibilidad insulínica central y periférica, acompañadas de estrés oxidativo y modificaciones de la señalización insulínica. Es en este punto donde emerge el posible puente biológico con el estrés.

La soledad persistente puede alterar el eje hipotálamo-hipófisis-suprarrenal y la regulación circadiana del cortisol, transformando una respuesta inicialmente adaptativa en una condición de estrés crónico. El cortisol, a través del receptor de glucocorticoides, induce entonces la expresión de REDD1, una proteína sensible al estrés capaz de intervenir directamente en la regulación metabólica celular. REDD1, a través de TSC1/TSC2, reduce de hecho la actividad de mTOR, desplazando temporalmente a la célula del anabolismo hacia una modalidad de ahorro energético y adaptación.

Si es transitoria, esta respuesta puede resultar funcional para la supervivencia; si es persistente, puede, en cambio, favorecer el catabolismo, la reducción de la síntesis proteica y las alteraciones metabólicas. Las evidencias sobre la inhibición prolongada de mTOR completan el recorrido: la afectación de mTORC2 puede reducir la activación de AKT, interferir con la vía AKT-AS160-GLUT4 y disminuir la captación de glucosa, mientras que la inhibición crónica puede involucrar también la función de las células β pancreáticas.

Emerge así un recorrido integrado: desconexión social → estrés crónico → cortisol → REDD1 → TSC1/TSC2 → alteración de mTOR → afectación de la señalización insulínica. La sociabilidad entra, por tanto, en los mecanismos metabólicos no como un elemento accesorio, sino como uno de los factores ambientales capaces de dialogar, a través del estrés, con los mecanismos celulares que regulan el metabolismo, la adaptación y la salud.

Referencias

[1] Social Relationships and Mortality Risk: A Meta-analytic Review

Holt-Lunstad et al., 2010

PLoS Med. 2010;7(7):e1000316.

[2] Social Isolation: A Predictor of Mortality Comparable to Traditional Clinical Risk Factors

Pantell et al., 2013

Am J Public Health. 2013;103(11):2056–2062.

[3] Situational Versus Chronic Loneliness as Risk Factors for All-Cause Mortality

Shiovitz-Ezra e Ayalon, 2010

Int Psychogeriatr. 2010;22(3):455–462.

[4] Social Isolation: An Integrated Molecular Network Disrupting Cellular Homeostasis

Qaisiya et al., 2025

Front Neurosci. 2025;19:1693696.

[5] Loneliness: An Immunometabolic Syndrome

Pourriyahi et al., 2021

Int J Environ Res Public Health. 2021;18(22):12162.

[6] Social Disconnection as a Global Behavioral Epidemic: A Call to Action

Na et al., 2023

JAMA Psychiatry. 2023;80(2):101–102.

[7] Loneliness and Social Isolation as Risk Factors for Cardiovascular Disease

Holt-Lunstad e Smith, 2016

Heart. 2016;102(13):987–989.

[8] The social brain hypothesis: thirty years on

Dunbar, 2024

Ann Hum Biol. 2024;51(1):2359920.

[9] The evolution of the social brain: anthropoid primates contrasted with other vertebrates

Shultz e Dunbar, 2007

Proc Biol Sci. 2007;274(1624):2429– 2436.

[10] The human socio-cognitive niche and its evolutionary origins

Whiten e Erdal, 2012

Philos Trans R Soc Lond B Biol Sci. 2012;367(1599):2119–2129.

[11] Social brain volume is associated with in-degree social network size among older adults

Kwak et al., 2018

Proc Biol Sci. 2018;285(1871):20172708.

[12] Social Learning among Congo Basin Hunter– Gatherers

Hewlett et al., 2011

Philos Trans R Soc Lond B Biol Sci. 2011;366(1567):1168–1178.

[13] Co-residence patterns in hunter–gatherer societies show unique human social structure

Hill et al., 2011

Science. 2011;331(6022):1286–1289.

[14] The modularity of food-sharing networks minimizes individual and group starvation risk in hunter–gatherer societies

Plana et al., 2023

PLoS One. 2023;18(5):e0272733.

[15] Networks of food sharing reveal the functional significance of multilevel sociality in two hunter– gatherer groups

Dyble et al., 2016

Curr Biol. 2016;26(15):2017–2021.

[16] Variability in the organization and size of hunter–gatherer groups: hunter–gatherers do not live in small-scale societies

Bird et al., 2019

Journal of Human Evolution. 2019;131:96–108.

[17] Human social organization in the late Pleistocene: beyond the nomadic-egalitarian model

Singh e Glowacki, 2022

Evolution and Human Behavior. 2022;43(5):418–431.

[18] Strontium isotopes in ostrich eggshell beads reveal persistent social networks across southern Africa during the late Quaternary

Stewart et al., 2020

Proc Natl Acad Sci U S A. 2020;117(12):6453–6462.

[19] Socially isolated children 20 years later: risk of cardiovascular disease

Caspi et al., 2006

Arch Pediatr Adolesc Med. 2006;160(8):805–811.

[20] Social isolation in childhood and inflammation in adulthood: evidence from a national birth cohort

Lacey et al., 2014

Psychoneuroendocrinology. 2014;50:85–94.

[21] Adolescent loneliness as a predictor of adult obesity: a longitudinal study from the HUNT cohort

Rangul et al., 2025

BMC Public Health. 2025;25(1):2751.

[22] Loneliness is associated with early cardiovascular dysfunction in young adults

Vasan et al., 2024

Scientific Reports. 2024;14:14221.

[23] Loneliness, discrimination, stress and risk of type 2 diabetes in young adults

Harrison et al., 2025

Am J Prev Med. 2025;68(2):217–226.

[24] Health risks associated with social isolation in different age groups

Hämmig, 2019

PLoS One. 2019;14(7):e0219663.

[25] Social isolation and mortality in US black and white men and women

Alcaraz et al., 2019

Am J Epidemiol. 2019;188(1):102–109.

[26] A prospective study of social networks in relation to total mortality and cardiovascular disease in men

Kawachi et al., 1996

J Epidemiol Community Health. 1996;50(3):245–251.

[27] Characteristics of socially isolated patients with coronary artery disease who are at high risk of mortality

Brummett et al., 2001

Psychosom Med. 2001;63(2):267–272.

[28] Social isolation and all-cause mortality: a population-based cohort study in Denmark

Laugesen et al., 2018

Sci Rep. 2018;8:4731.

[29] Changes in social isolation and loneliness in relation to cardiovascular events and mortality

Chen et al., 2024

J Epidemiol Glob Health. 2024;14(3):962–973.

[30] Associations of loneliness and social isolation with healthy life expectancy and lifespan

Crowe et al., 2021

J Gerontol A Biol Sci Med Sci. 2021;76(11):1997–2006.

[31] Social isolation and loneliness and their association with all-cause mortality: the Tromsø study 1994–2023

Løvsletten e Brenn, 2024

Prev Med Rep. 2024;48:102930.

[32] The effect of social networks on 10-year survival in very old Australians: the Australian longitudinal study of ageing

Giles et al., 2005

J Epidemiol Community Health. 2005;59(7):574–579.

[33] Social relationships and mortality in elderly people: a cohort study in southern Europe

Rodriguez-Laso et al., 2007

BMC Geriatr. 2007;7:19.

[34] Social isolation, physical inactivity and inadequate diet among European middle-aged and older adults

Delerue Matos et al., 2021

BMC Public Health. 2021;21:924.

[35] Social isolation, loneliness and low micronutrient intake in older adults

Steptoe et al., 2024

Age Ageing. 2024;53(10):afae223.

[36] Social isolation, loneliness and health behaviours in older adults: a longitudinal cohort study

Kobayashi e Steptoe, 2018

Ann Behav Med. 2018;52(7):582–593.

[37] The association between loneliness or social isolation and diet and eating behaviours: a scoping review

Hanna et al., 2023

Appetite. 2023;191:107051.

[38] Social isolation and smoking among older adults

Gimm et al., 2023

J Appl Gerontol. 2023;42(11):2261–2267.

[39] The influence of loneliness on smoking and physical activity among community-dwelling older adults

Yang et al., 2022

Am J Health Promot. 2022;36(6):959–966.

[40] Social integration and mortality in patients with coronary heart disease: the Heart and Soul Study

Kreibig et al., 2014

Psychosom Med. 2014;76(8):659–668.

[41] Social isolation increases cue-induced sucrose and nicotine seeking and this effect is reversed by social housing

Mastrogiovanni et al., 2021

Sci Rep. 2021;11(1):2422.

[42] Did social isolation during the SARS-CoV-2 epidemic have an impact on citizens’ lifestyles?

Ferrante et al., 2020

Epidemiol Prev. 2020;44(5-6 Suppl 2):353–362.

[43] How social isolation and loneliness effect medication adherence among elderly with chronic diseases: An integrated theory and validated cross-sectional study

Lu et al., 2020

Arch Gerontol Geriatr. 2020;90:104154.

[44] Association between social isolation and medication adherence in older adults with chronic diseases: serial mediation of social support and loneliness

Yu et al., 2024

Ann Behav Med. 2024;58(10):670–678.

[45] Loneliness, perceived social support and their changes predict medication adherence over 12 months in patients with coronary heart disease

Fan et al., 2024

Br J Health Psychol. 2024;29(3):814–832.

[46] The effect of loneliness and perceived social support on self-efficacy in medication adherence in hypertensive patients

Hacihasanoglu Asilar et al., 2020

J Vasc Nurs. 2020;38(4):183–190.

[47] Effects of social isolation and loneliness on medication adherence in older adults: a systematic review

Improta et al., 2026

BMC Public Health. 2026;26:577.

[48] Social isolation, loneliness and objective physical activity in older men and women

Schrempft et al., 2019

BMC Public Health. 2019;19:74.

[49] Loneliness predicts reduced physical activity: cross-sectional and longitudinal analyses

Hawkley et al., 2009

Health Psychol. 2009;28(3):354–363.

[50] Loneliness is associated with unhealthy eating and physical inactivity among U.S. college students

Jiang et al., 2024

J Am Coll Health. 2024;72(8):2932–2937.

[51] Subjective and social well-being and their associations with sedentary behavior and physical activity in older adults

Chen et al., 2021

J Gerontol A Biol Sci Med Sci. 2021;76(10):1789–1795.

[52] Sociodemographic, lifestyle and social isolation correlates of TyG, METS-IR and SPISE-IR scores in a large working population

Riutord-Sbert et al., 2025

Med Sci (Basel). 2025;13(3):171.

[53] Social integration and metabolic function: evidence from a nationally representative longitudinal study of U.S. older adults

Yang et al., 2013

BMC Public Health. 2013;13:1210.

[54] Loneliness and subsequent changes in inflammatory and metabolic markers

Shiovitz-Ezra e Parag, 2019

Aging Ment Health. 2019;23(10):1358–1366.

[55] Metabolic dysregulation in older adults with depression and loneliness: the ATHLOS study

de la Torre-Luque et al., 2021

Psychoneuroendocrinology. 2021;123:104918.

[56] Psychological stress and fasting glucose among Chinese immigrants in the United States

Fang et al., 2024

Ann Behav Med. 2024;58(12):799–808.

[57] Social isolation triggers oxidative state and impairs insulin sensitivity in normoglycemic rats

Bove et al., 2022

Biomed Pharmacother. 2022;149:112820.

[58] Effects of social isolation on glucocorticoid regulation in social mammals

Hawkley et al., 2012

Horm Behav. 2012;62(3):314–323.

[59] Daily stress, loneliness, and diurnal cortisol rhythms in young adults

Lai et al., 2019

Horm Behav. 2019;115:104558.

[60] Loneliness and diurnal salivary cortisol in young adults

Lai et al., 2018

Int J Mol Sci. 2018;19(7):1944.

[61] Daily cortisol activity, loneliness, and coping efficacy in late adolescence: A longitudinal study of the transition to college

Drake et al., 2016

Int J Behav Dev. 2016;40(4):334–345.

[62] Loneliness and neuroendocrine, cardiovascular and inflammatory stress responses

Steptoe et al., 2004

Psychoneuroendocrinology. 2004;29(5):593–611.

[63] Loneliness as a determinant of allostatic load

Warren, 2025

Stress. 2025;28(1):2594067.

[64] Social network characteristics and salivary cortisol in healthy older people

Lai et al., 2012

ScientificWorldJournal. 2012;2012:929067.

[65] Comparative analysis of stress-inducible gene expression in murine immune cells

Koyanagi e Arimura, 2020

Immunol Invest. 2020;49(8):907–925.

[66] RTP801/REDD1: a stress management regulator that becomes a troublemaker in neurodegenerative disorders

Canal et al., 2014

Front Cell Neurosci. 2014;8:313.

[67] Dexamethasone represses mTOR signaling in muscle cells by inducing REDD1 expression

Wang et al., 2006

J Biol Chem. 2006;281(51):39128–39134.

[68] Stress-induced proteins RTP801 and RTP801L are negative regulators of mTOR signaling

Corradetti et al., 2005

J Biol Chem. 2005;280(11):9769–9772.

[69] Glucocorticoid-induced Dig2/RTP801/REDD1 mediates autophagy in lymphocytes

Molitoris et al., 2011

J Biol Chem. 2011;286(34):30181–30189.

[70] Rice Germ Attenuates Chronic Unpredictable Mild Stress-Induced Muscle Atrophy

Batsukh et al., 2023

Nutrients. 2023;15(12):2719.

[71] Glucocorticoid receptor activation reduces food intake independent of hyperglycemia in zebrafish

Nipu et al., 2022

Sci Rep. 2022;12:15677.

[72] Regulation of mTOR function in response to hypoxia by REDD1 and the TSC1/TSC2 tumor suppressor complex

Brugarolas et al., 2004

Genes Dev. 2004;18(23):2893–2904.

[73] Hypoxia regulates TSC1/2-mTOR signaling via REDD1-mediated 14-3-3 protein displacement

DeYoung et al., 2008

Genes Dev. 2008;22(2):239–251.

[74] The stress-responsive protein REDD1 and its physiological and pathological roles

Kim et al., 2023

Exp Mol Med. 2023;55(9):1933–1944.

[75] Inhibition of mTORC1 activity by REDD1 induction in multiple myeloma cells

Decaux et al., 2010

Cancer Sci. 2010;101(4):889–897.

[76] REDD1 attenuates cholestatic liver fibrosis via suppression of PI3K/AKT/mTOR signaling

Li et al., 2025

Front Med (Lausanne). 2025;12:1628260.

[77] RTP801 is a key mediator of cigarette smoke-induced lung injury via mTOR suppression

Yoshida et al., 2010

Nat Med. 2010;16(7):767–773.

[78] Acute inhibition of mTOR induces insulin resistance and alters substrate utilization in vivo

Kleinert et al., 2014

Mol Metab. 2014;3(6):630–641.

[79] Rapamycin-induced insulin resistance is mediated by mTORC2 loss and is separable from longevity

Lamming et al., 2012

Science. 2012;335(6076):1638–1643.

[80] Chronic mTOR inhibition by rapamycin induces muscle insulin resistance despite weight loss in rats

Deblon et al., 2012

Br J Pharmacol. 2012;165(7):2325–2340.

[81] Rapamycin impairs insulin signaling and glucose uptake in human adipocytes

Pereira et al., 2012

Mol Cell Endocrinol. 2012;355(1):96–105.

[82] Rapamycin induces glucose intolerance by reducing islet mass, insulin content, and insulin sensitivity

Yang et al., 2012

J Mol Med (Berl). 2012;90(5):575–585.