
Scientific Book

Mélatonine et coordination des rythmes biologiques

La mélatonine est une hormone produite principalement par la glande pinéale, essentielle à la régulation des rythmes circadiens et du cycle veille-sommeil. Au-delà de sa fonction chronobiologique, la recherche étudie ses propriétés antioxydantes et ses interactions possibles avec les processus inflammatoires, le métabolisme énergétique et la fonction mitochondriale. Dans le livre « La scelta di Vivere in Salute o in Malattia », le Dr A. Colonnese et R. Panzironi approfondissent ces mécanismes, en distinguant les fonctions établies des applications faisant encore l'objet de recherches.

Citer cet article
Colonnese, A. & Panzironi, R. (2026). Mélatonine et coordination des rythmes biologiques. Le choix de vivre en santé ou en maladie. https://lifesciencehub.info/fr/la-scelta-di-vivere-in-salute-o-in-malattia/melatonine-et-coordination-des-rythmes-biologiques
Le choix de vivre en santé ou en maladie · ISBN 979-12-82692-04-5

DOI lsh.fr.libro.28

  • Publication 05/11/2026
  • Mise à jour 05/11/2026
  • MÉLATONINE
  • RÉCEPTEUR MT1
  • RYTHMES CIRCADIENS
  • OREXINE
  • LOCUS COERULEUS
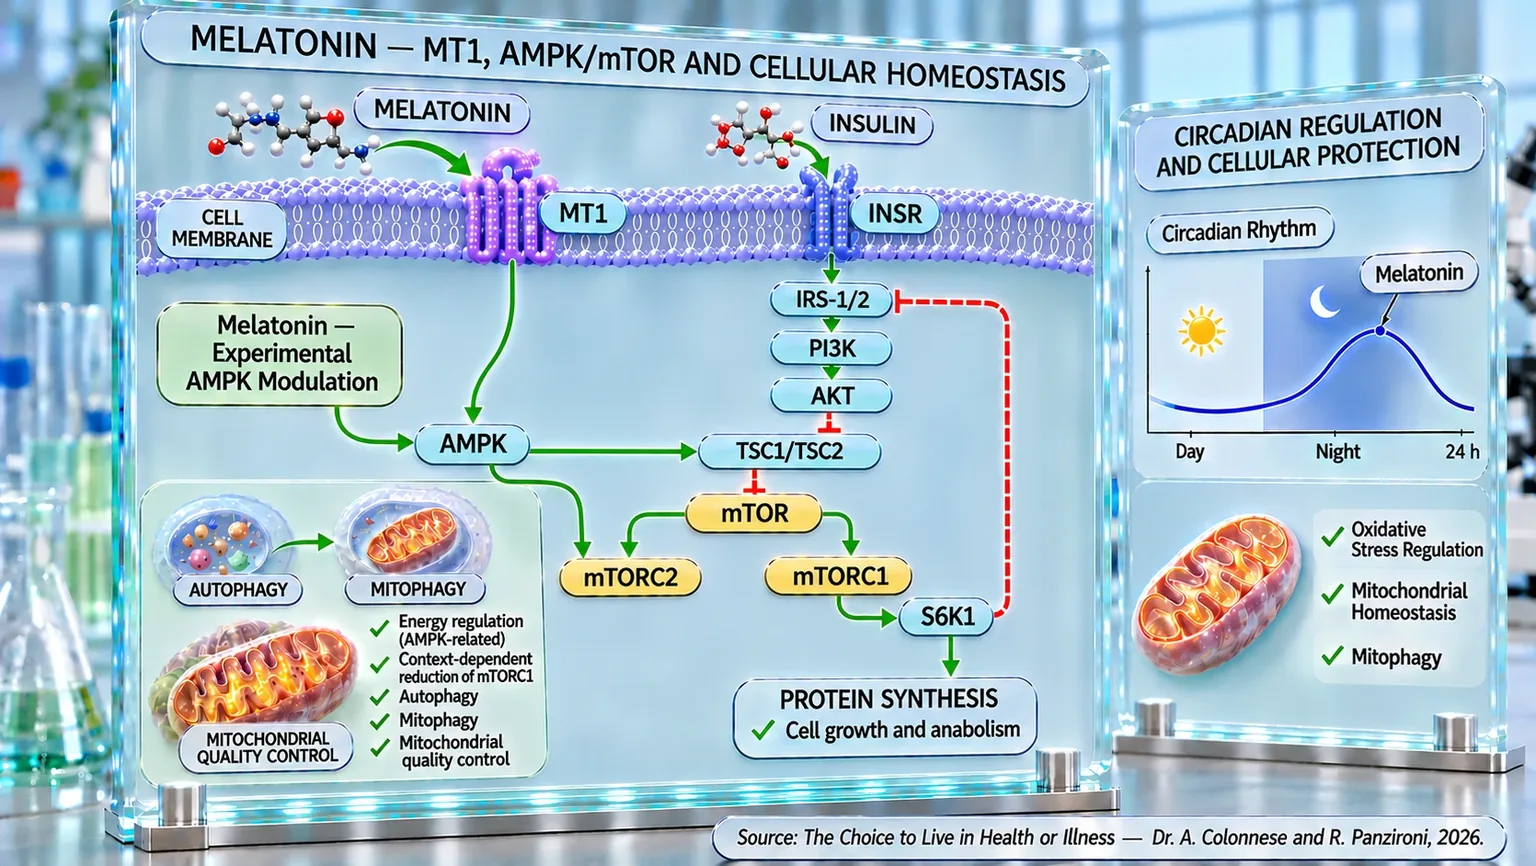
Infographie moléculaire avec membrane cellulaire, récepteurs MT1 et INSR, cascade AMPK-mTOR et graphique circadien de la mélatonine.
Schéma des liens entre la mélatonine, le récepteur MT1, l'AMPK et la voie insulinique INSR–IRS-1/2–PI3K–AKT, avec régulation de TSC1/TSC2, mTORC1/2, S6K1, synthèse protéique, autophagie et mitophagie. L'encadré adjacent indique le pic nocturne de la mélatonine et associe le rythme circadien à l'homéostasie mitochondriale, au contrôle du stress oxydatif et à la protection cellulaire.

ABSTRACT

La mélatonine, synthétisée principalement par la glande pinéale ainsi que par des tissus périphériques, coordonne les rythmes circadiens et les processus de protection cellulaire. Dans le livre « La scelta di Vivere in Salute o in Malattia », le Dr A. Colonnese et R. Panzironi approfondissent ses fonctions dans la régulation du sommeil, l'immunomodulation et l'homéostasie énergétique. Ses propriétés antioxydantes et anti-inflammatoires, associées au soutien de la fonction mitochondriale, suggèrent un rôle physiologique bien plus large que la simple facilitation de l'endormissement.

La signalisation via le récepteur MT1 contribue à la synchronisation circadienne et, selon des études expérimentales, à l'organisation des phases du sommeil. Dans le locus coeruleus, l'activation de MT1 peut réduire l'activité noradrénergique, normalement élevée pendant l'éveil et fortement atténuée durant le sommeil paradoxal (REM). L'orexine, produite dans l'hypothalamus latéral, soutient quant à elle la vigilance et la libération de noradrénaline. D'autres observations expérimentales suggèrent que la mélatonine pourrait moduler directement les neurones orexinergiques, favorisant ainsi le sommeil non-REM. La présence de MT1 également dans le pancréas, l'intestin, les vaisseaux et les cellules immunitaires relie ces signaux à des fonctions métaboliques et inflammatoires périphériques.

Les études cliniques font état d'améliorations de la qualité du sommeil et de la latence d'endormissement, avec des résultats variables chez les adultes souffrant de troubles du sommeil, les patients atteints de la maladie de Parkinson, les enfants présentant des troubles du neurodéveloppement et en milieu hospitalier. Parallèlement, des études précliniques décrivent des effets sur la protection mitochondriale et la régulation de l'autophagie, y compris la mitophagie. Dans divers modèles, la mélatonine favorise l'activation de l'AMPK et limite mTORC1, modulant ainsi le recyclage des composants cellulaires ; certains modèles tumoraux suggèrent en outre une implication de l'autophagie dans la mort néoplasique.

Dans l'ensemble, la mélatonine intègre les circuits de la vigilance, les signaux circadiens et les mécanismes de maintenance cellulaire. Les preuves concernant le sommeil n'autorisent toutefois pas à transférer automatiquement à l'être humain les résultats moléculaires expérimentaux. La recherche devra clarifier dans quelles conditions la modulation de MT1, AMPK et mTORC1 peut se traduire par des bénéfices cliniques documentables, au-delà des effets déjà observés sur le repos nocturne.

Ses propriétés

La mélatonine est une molécule qui, pendant de nombreuses années, a été considérée presque exclusivement comme l'hormone du sommeil. Cette définition, bien qu'exacte, s'avère aujourd'hui profondément réductrice. Les recherches des dernières décennies ont en effet démontré que la mélatonine représente l'une des molécules les plus polyvalentes de l'organisme humain, impliquée dans un vaste réseau de processus biologiques allant de la régulation des rythmes circadiens à la protection cellulaire, du contrôle de l'inflammation au maintien de l'équilibre énergétique, jusqu'à la sauvegarde de l'intégrité du système nerveux et des mitochondries (Kamfar et al., 2024) [1].

D'un point de vue chimique, la mélatonine est une indolamine, un acide aminé dérivé du tryptophane par une série de réactions impliquant la sérotonine comme précurseur intermédiaire. Bien que la glande pinéale soit le principal organe responsable de sa sécrétion systémique, nous savons aujourd'hui que sa synthèse ne se limite pas au cerveau. De nombreux tissus, dont le tractus gastro-intestinal, la rétine, le système immunitaire, la moelle osseuse et d'autres zones périphériques, sont en effet capables de produire de la mélatonine localement, ce qui suggère que cette molécule remplit des fonctions bien plus larges que la simple synchronisation du cycle veille-sommeil (Jia et al., 2025) [2].

Pour comprendre l'importance de la mélatonine, on peut imaginer l'organisme comme une grande ville qui doit constamment maintenir l'ordre, la communication et la capacité d'adaptation. Dans cette analogie, la mélatonine ne représente pas seulement l'horloge qui signale l'arrivée de la nuit, mais aussi une équipe de maintenance hautement spécialisée qui protège les infrastructures cellulaires, coordonne les réponses d'urgence et limite les dommages causés par l'usure quotidienne.

L'une des propriétés les plus étudiées de la mélatonine concerne son activité antioxydante. Au cours du métabolisme cellulaire normal, des molécules hautement réactives, appelées espèces réactives de l'oxygène (ROS) et espèces réactives de l'azote (RNS), sont continuellement produites. En quantités physiologiques, ces substances jouent d'importantes fonctions de signalisation ; cependant, lorsque leur production dépasse la capacité de défense de l'organisme, elles peuvent endommager les protéines, les lipides, les membranes cellulaires et l'ADN. La mélatonine possède la capacité extraordinaire de contrer ce phénomène par de multiples mécanismes simultanés. Elle neutralise directement de nombreux radicaux libres et stimule simultanément l'activité des principaux systèmes antioxydants endogènes, notamment la superoxyde dismutase, la catalase et la glutathion peroxydase (Kamfar et al., 2024) [1] ; (Bocheva et al., 2024) [3] ; (Jia et al., 2025) [2].

Ce qui rend la mélatonine particulièrement efficace par rapport à d'autres antioxydants, c'est le fait que son activité ne s'arrête pas après la neutralisation d'une seule espèce réactive. Au cours du processus de détoxification, des métabolites biologiquement actifs sont en effet générés, comme l'AFMK (une substance produite par la dégradation de la mélatonine) et l'AMK, qui conservent à leur tour des propriétés antioxydantes. Une véritable cascade protectrice se crée ainsi, capable d'amplifier et de prolonger les effets de la molécule originelle (Bocheva et al., 2024) [3].

Une autre caractéristique fondamentale est sa lipophilie élevée (la capacité d'une substance à se dissoudre dans les graisses). Grâce à cette propriété, la mélatonine traverse facilement les membranes cellulaires, atteignant des compartiments normalement difficiles à protéger, comme le noyau et surtout les mitochondries. Cette capacité est particulièrement importante car les mitochondries représentent le principal site de production des radicaux libres à l'intérieur de la cellule. La présence de mélatonine à proximité de la source même du stress oxydatif permet une intervention rapide et efficace, limitant les dommages avant qu'ils ne puissent se propager (Kamfar et al., 2024) [1] ; (Bao et al., 2026) [4] ; (Reiter et al., 2024) [5].

Ces dernières années, une vision encore plus fascinante de la physiologie de la mélatonine a émergé. Pendant longtemps, on a cru que la glande pinéale était la principale source de la molécule. Aujourd'hui, cependant, de nombreuses preuves suggèrent qu'une grande partie de la mélatonine produite dans l'organisme pourrait provenir de synthèses locales au sein des tissus périphériques et, probablement, directement dans les mitochondries. Selon ce modèle, la mélatonine pinéale agirait principalement comme un signal endocrinien dédié à la synchronisation temporelle de l'organisme, tandis que la mélatonine intracellulaire remplirait surtout des fonctions métaboliques, antioxydantes et cytoprotectrices (Reiter et al., 2024) [5].

L'importance biologique de cette molécule apparaît encore plus évidente si l'on observe son histoire évolutive. Les analyses phylogénétiques suggèrent que la capacité à synthétiser la mélatonine est apparue bien avant l'évolution des organismes complexes, probablement chez les procaryotes primitifs qui peuplaient la Terre il y a des milliards d'années. Dans un environnement caractérisé par des concentrations croissantes d'oxygène et une production conséquente d'espèces réactives, la mélatonine aurait représenté un outil de défense fondamental. Cette fonction antioxydante semble donc précéder de loin le rôle circadien qui est aujourd'hui communément associé à l'hormone (Reiter et al., 2024) [5].

Outre son activité antioxydante, la mélatonine possède des propriétés anti-inflammatoires significatives. L'inflammation est un mécanisme essentiel à la survie de l'organisme, mais lorsqu'elle devient chronique, elle peut contribuer au développement de nombreuses pathologies. La mélatonine intervient en modulant plusieurs nœuds centraux de la réponse inflammatoire. Parmi ceux-ci, le facteur de transcription NF-κB, considéré comme l'un des principaux régulateurs de l'expression des gènes pro-inflammatoires, revêt une importance particulière. Par l'inhibition de cette voie de signalisation, la mélatonine réduit la production de médiateurs tels que le TNF-α, l'IL-1β et l'IL-6, contribuant à limiter l'amplification de la réponse inflammatoire (Kamfar et al., 2024) [1] ; (Jia et al., 2025) [2] ; (Bocheva et al., 2024) [3].

Ses actions ne se limitent toutefois pas à l'inflammation systémique. Plusieurs études ont mis en évidence la capacité de la mélatonine à moduler l'activité des cellules immunitaires, influençant la production de cytokines et contribuant au maintien de l'équilibre entre activation immunitaire et tolérance. Des récepteurs spécifiques à la mélatonine ont été identifiés dans les leucocytes, les lymphocytes, les cellules de la moelle osseuse et de nombreuses autres populations immunitaires, confirmant le rôle de la molécule en tant qu'important régulateur de la fonction immunitaire (Kamfar et al., 2024) [1].

L'axe immunitaire-pinéal est particulièrement intéressant. En présence d'un processus inflammatoire, la production pinéale de mélatonine a tendance à diminuer, tandis qu'augmente simultanément la synthèse locale par les macrophages et d'autres cellules immunitaires présentes sur le site de l'inflammation. Ce mécanisme permet de concentrer la production de la molécule exactement là où elle est le plus nécessaire, favorisant la résolution du processus inflammatoire et la protection des tissus concernés (Reiter et al., 2024) [5].

Les propriétés cytoprotectrices de la mélatonine s'étendent également au maintien de la fonctionnalité mitochondriale. En plus de neutraliser les radicaux libres, la molécule contribue à préserver le potentiel de membrane mitochondriale, améliore la production d'ATP, régule les processus de fusion et de fission mitochondriale et participe au contrôle de la mitophagie, le système par lequel la cellule élimine les mitochondries endommagées. Grâce à ces actions, la mélatonine contribue à maintenir l'efficacité de la centrale énergétique cellulaire, réduisant le risque d'accumulation de dommages métaboliques au fil du temps (Bao et al., 2026) [4] ; (Bocheva et al., 2024) [3] ; (Jia et al., 2025) [2].

L'ensemble de ces caractéristiques a conduit les chercheurs à considérer la mélatonine comme une molécule pléiotrope, c'est-à-dire capable d'influencer simultanément de nombreux systèmes biologiques. Ses actions impliquent la régulation des rythmes circadiens, le contrôle du stress oxydatif, la modulation de l'inflammation, le maintien de l'homéostasie énergétique, la protection du système nerveux et la régulation de la réponse immunitaire. En d'autres termes, la mélatonine n'agit pas comme une simple hormone spécialisée dans une fonction unique, mais comme un coordinateur biologique capable de relier entre eux des processus apparemment distants, contribuant au maintien de l'équilibre de l'organisme tout entier (Minari et Pisani, 2025) [6].

La mélatonine et le sommeil

Parmi toutes les fonctions attribuées à la mélatonine, celle liée au sommeil est certainement la plus connue. Toutefois, définir la mélatonine simplement comme une hormone favorisant l'endormissement serait réducteur. Les preuves scientifiques montrent en effet que cette molécule joue un rôle bien plus complexe, contribuant à la régulation de l'architecture complète du sommeil et à la synchronisation des rythmes biologiques qui régissent l'alternance entre veille et repos.

Pour comprendre sa fonction, il est utile d'imaginer le sommeil comme un orchestre composé de nombreux musiciens. Chaque instrument représente un système physiologique différent : le cerveau, le métabolisme, le système endocrinien, le système immunitaire et le système nerveux autonome. La mélatonine ne produit pas directement la musique, mais agit comme le chef d'orchestre qui coordonne le moment exact où chaque section doit entrer en action. Lorsque cette coordination fait défaut, le sommeil a tendance à devenir plus fragmenté, moins efficace et moins régénérateur.

Les preuves cliniques recueillies ces dernières années confirment de manière de plus en plus convaincante cette interprétation. Une vaste revue systématique avec méta-analyse, incluant vingt-trois essais cliniques randomisés contrôlés, a démontré que la supplémentation en mélatonine améliore significativement la qualité globale du sommeil chez les adultes. Les bénéfices ont été observés dans de nombreuses conditions cliniques, avec des effets particulièrement évidents chez les sujets souffrant de maladies respiratoires, de troubles métaboliques et de troubles primaires du sommeil. L'analyse a également montré une réduction significative des scores du Pittsburgh Sleep Quality Index, indiquant une amélioration cliniquement pertinente de la qualité perçue du repos nocturne. L'un des aspects les plus intéressants ressortant de cette méta-analyse concerne le fait que l'amélioration ne porte pas sur un seul paramètre du sommeil. La mélatonine semble en effet agir simultanément sur plusieurs dimensions du repos nocturne, favorisant un endormissement plus rapide, une meilleure continuité du sommeil et une réduction de la fragmentation nocturne. Cela suggère que son rôle ne se limite pas à l'induction du sommeil, mais implique l'organisation temporelle complète du repos (Fatemeh et al., 2022) [7].

Une confirmation particulièrement intéressante provient des patients atteints de COMISA, une condition caractérisée par la coexistence d'insomnie chronique et d'apnée obstructive du sommeil. Cette association est très fréquente dans la pratique clinique et représente l'une des formes les plus complexes de troubles du sommeil. Les micro-éveils continus provoqués par les épisodes d'apnée altèrent profondément la qualité du repos, tandis que l'insomnie contribue à son tour à aggraver la stabilité du sommeil. Dans une étude randomisée contrôlée par placebo, l'administration de 10 mg de mélatonine pendant quatre semaines a entraîné une amélioration marquée de la qualité du sommeil, une réduction significative de la sévérité de l'insomnie et une diminution de la somnolence diurne. Les patients ont également montré une meilleure observance de la thérapie CPAP, un élément particulièrement important pour le contrôle des apnées nocturnes (Motlaq et al., 2024) [8].

Ces résultats sont particulièrement pertinents car ils démontrent que la mélatonine n'agit pas exclusivement pendant la nuit. En améliorant la qualité du sommeil, elle produit des effets positifs également pendant la journée, réduisant la fatigue, améliorant la vigilance et favorisant une meilleure fonctionnalité dans les activités quotidiennes. En d'autres termes, le bénéfice ne concerne pas seulement le fait de mieux dormir, mais aussi de mieux vivre durant les heures de veille.

Une autre population chez laquelle la mélatonine a suscité un grand intérêt est celle des patients atteints de la maladie de Parkinson. Les troubles du sommeil représentent l'une des manifestations non motrices les plus fréquentes de la maladie et peuvent apparaître de nombreuses années avant les altérations motrices typiques. Une méta-analyse récente, incluant des essais randomisés contrôlés, a mis en évidence que la mélatonine améliore significativement la qualité du sommeil et réduit la somnolence diurne chez les sujets atteints de Parkinson. Les meilleurs résultats ont été observés avec des dosages supérieurs à 4 mg, avec des formulations à libération immédiate et des traitements de durée relativement courte. Les données suggèrent également que la réponse thérapeutique peut dépendre à la fois de la dose utilisée et des caractéristiques pharmacocinétiques de la formulation employée (Zrineh et al., 2025) [9].

Les preuves en faveur de la mélatonine ne concernent pas uniquement la population adulte. Chez les enfants souffrant de troubles du neurodéveloppement, notamment l'autisme, les déficiences intellectuelles et d'autres conditions neurologiques, les problèmes d'endormissement représentent l'une des principales causes de stress pour l'enfant et pour l'ensemble du noyau familial. L'étude MENDS, l'une des plus vastes études randomisées contrôlées réalisées en milieu pédiatrique, a démontré que la mélatonine à libération immédiate réduit de manière significative le temps nécessaire pour s'endormir. En moyenne, les enfants traités s'endormaient environ quarante-cinq minutes plus tôt par rapport aux sujets recevant un placebo. L'augmentation de la durée totale du sommeil s'est avérée plus modeste, suggérant que l'effet principal de la mélatonine est lié surtout au démarrage du sommeil plutôt qu'à son prolongement (Appleton et al., 2012) [10].

Cette observation est particulièrement importante car elle aide à comprendre la véritable nature physiologique de la mélatonine. Contrairement aux médicaments hypnotiques traditionnels, qui tendent à forcer l'organisme vers un état de sédation, la mélatonine semble faciliter le démarrage correct des processus biologiques qui conduisent naturellement au sommeil. Une fois ce processus entamé, le maintien et la profondeur du repos dépendent de nombreux autres systèmes neurobiologiques.

Des bénéfices analogues ont été observés également en milieu hospitalier. L'hospitalisation représente en effet une condition particulièrement défavorable au sommeil en raison des bruits, des procédures de soins, de la douleur, du stress psychologique et des altérations des rythmes circadiens normaux. Une étude menée sur des patients hospitalisés a mis en évidence que l'administration vespérale de mélatonine améliore significativement la durée du sommeil, réduit le temps nécessaire pour s'endormir, diminue le nombre d'éveils nocturnes et augmente la qualité subjective du repos. Ces résultats revêtent une importance particulière si l'on considère que le sommeil représente l'un des principaux outils par lesquels l'organisme soutient les processus de récupération et de guérison pendant la maladie (Ren et al., 2025) [11].

En considérant l'ensemble des preuves disponibles, un tableau extrêmement cohérent émerge. La mélatonine ne doit pas être considérée simplement comme une substance induisant le sommeil, mais comme un régulateur biologique capable de coordonner de multiples aspects du repos nocturne. Ses effets sont observés dans des populations très diverses : sujets souffrant d'insomnie, patients présentant une apnée obstructive du sommeil, personnes atteintes de la maladie de Parkinson, enfants souffrant de troubles du neurodéveloppement et patients hospitalisés, suggérant l'existence d'un mécanisme physiologique commun. Dans tous ces contextes, la mélatonine semble favoriser une meilleure synchronisation des processus qui régissent le passage de la veille au sommeil, contribuant à rendre le repos plus stable, plus efficace et davantage régénérateur.

Les récepteurs MT1

Comprendre la physiologie de la mélatonine signifie également comprendre les mécanismes par lesquels cette molécule communique avec les cellules. En effet, comme toute hormone ou molécule signal, la mélatonine n'agit pas seule. Pour exercer ses effets, elle doit être reconnue par des structures cellulaires spécifiques capables d'interpréter son message et de le traduire en une réponse biologique. Ces structures sont les récepteurs de la mélatonine, principalement identifiés sous les sous-types MT1 et MT2.

Pendant de nombreuses années, on a pensé que les deux récepteurs remplissaient des fonctions essentiellement superposables. Les recherches les plus récentes ont cependant révélé une réalité beaucoup plus complexe. Bien que MT1 et MT2 soient activés par la même molécule, ils semblent participer à des processus différents et, dans certains cas, même opposés. Cette découverte a profondément modifié la compréhension de la neurobiologie du sommeil et a ouvert de nouvelles perspectives thérapeutiques pour le traitement des troubles du rythme veille-sommeil (Gobbi et Comai, 2019) [12] ; (Gobbi et Comai, 2019) [13] ; (Comai et Gobbi, 2024) [15].

Le récepteur MT1 appartient à la famille des récepteurs couplés aux protéines G (protéines qui transmettent des signaux à l'intérieur des cellules) et est exprimé dans de nombreuses zones cérébrales impliquées dans la régulation du sommeil et des rythmes circadiens. Sa présence a été documentée dans le noyau suprachiasmatique (une petite zone du cerveau, située dans l'hypothalamus), le principal horloge biologique de l'organisme, mais aussi dans l'hypothalamus latéral, le pont, l'amygdale et l'hippocampe. Cette distribution anatomique suggère que MT1 n'est pas simplement impliqué dans la réception du signal mélatoninergique, mais participe directement à l'organisation neurobiologique du sommeil (Comai et Gobbi, 2024) [15].

Pour comprendre le rôle de ce récepteur, on peut imaginer la mélatonine comme une communication envoyée chaque soir par l'horloge biologique centrale. Le récepteur MT1 représente l'un des principaux destinataires de ce message. Lorsqu'il est activé, une série de modifications cellulaires et neuronales se déclenchent, préparant progressivement le cerveau à la transition de l'éveil vers le sommeil.

Les premières indications sur le rôle spécifique de MT1 ont émergé d'études menées sur des modèles animaux génétiquement modifiés. Grâce à l'élimination sélective du gène responsable de la production du récepteur, les chercheurs ont pu observer les conséquences découlant de son absence. Les résultats ont montré que les souris dépourvues du récepteur MT1 présentent une réduction significative du sommeil paradoxal (REM), la phase du sommeil associée à l'activité onirique la plus intense, à la consolidation de la mémoire et à la régulation des émotions (Comai et al., 2013) [14].

Cette observation est devenue encore plus significative lorsque les chercheurs ont analysé l'activité électrique cérébrale pendant le sommeil. Chez les animaux dépourvus de MT1, une réduction des oscillations thêta (ondes électriques rythmiques produites par les neurones du cerveau) a été documentée pendant le sommeil paradoxal. Les ondes thêta représentent l'une des principales signatures neurophysiologiques de cette phase du sommeil et participent aux processus de consolidation mnésique et de réorganisation des informations acquises au cours de la journée. Leur réduction suggère que MT1 influence non seulement la quantité de sommeil paradoxal, mais aussi la qualité fonctionnelle de cette phase (Comai et al., 2013) [14].

Les preuves recueillies par la suite ont progressivement renforcé l'hypothèse selon laquelle le récepteur MT1 joue un rôle fondamental dans la stabilisation du sommeil paradoxal. Plusieurs revues de la littérature ont mis en évidence la manière dont l'activation de MT1 est associée à la consolidation des phases REM et à la modulation des circuits neuronaux qui en régulent l'apparition et le maintien au cours de la nuit (Gobbi et Comai, 2019) [12] ; (Gobbi et Comai, 2019) [13] ; (Comai et Gobbi, 2024) [15].

Un autre aspect d'un grand intérêt concerne le rapport entre MT1 et la régulation circadienne. De nombreuses preuves suggèrent que ce récepteur participe aux mécanismes par lesquels le noyau suprachiasmatique synchronise les fonctions biologiques de l'organisme avec le cycle environnemental lumière-obscurité. En d'autres termes, MT1 pourrait représenter l'un des principaux points de liaison entre l'information temporelle provenant de l'environnement et l'organisation interne du sommeil (Gobbi et Comai, 2019) [13] ; (Comai et Gobbi, 2024) [15].

Les observations provenant des modèles knockout renforcent davantage cette interprétation. Les animaux dépourvus de MT1 montrent en effet non seulement des altérations du sommeil paradoxal, mais aussi une plus grande fragmentation du sommeil, une réduction de la continuité du repos et une moindre stabilité de l'organisation circadienne. Ces résultats suggèrent que le récepteur contribue au maintien d'une structure de sommeil stable et physiologiquement efficace (Comai et Gobbi, 2024) [15].

D'un point de vue thérapeutique, ces découvertes ont ouvert des perspectives particulièrement intéressantes. La plupart des préparations actuellement disponibles activent simultanément MT1 et MT2. Cependant, si les deux récepteurs remplissent des fonctions différentes, il devient plausible d'imaginer des médicaments capables d'agir sélectivement sur l'une ou l'autre des cibles. Dans cette perspective, des agonistes spécifiques de MT1 pourraient s'avérer utiles dans les conditions caractérisées par des altérations du sommeil paradoxal, une fragmentation du sommeil et des difficultés à initier les processus physiologiques conduisant au repos nocturne (Gobbi et Comai, 2019) [12] ; (Gobbi et Comai, 2019) [13] ; (Comai et Gobbi, 2024) [15].

Dans l'ensemble, les preuves disponibles définissent le récepteur MT1 comme bien plus qu'un simple médiateur des effets de la mélatonine. Il apparaît comme un régulateur neurobiologique sophistiqué qui relie le signal temporel de la nuit à l'organisation des phases du sommeil, à la stabilité de la vigilance et au contrôle des circuits neuronaux impliqués dans le sommeil paradoxal. Cette vision moderne permet de comprendre comment la mélatonine n'agit pas simplement en induisant le sommeil, mais en orchestrant un réseau complexe de signaux biologiques qui préparent le cerveau et l'organisme au repos nocturne.

Le locus coeruleus et la noradrénaline

Pour comprendre pleinement comment la mélatonine influence le sommeil, il est nécessaire d'approfondir l'un des systèmes neurobiologiques les plus importants impliqués dans la régulation de la vigilance : le système locus coeruleus–noradrénaline. Si la mélatonine peut être imaginée comme le signal annonçant l'arrivée de la nuit, le locus coeruleus représente l'un des principaux centres cérébraux qui décident du degré de vigilance, d'attention et de réactivité du cerveau face aux stimuli de l'environnement.

Le locus coeruleus est un petit noyau situé dans le tronc cérébral qui, malgré ses dimensions réduites, exerce une influence extraordinairement large sur l'ensemble du système nerveux central. Ses neurones produisent de la noradrénaline, un neurotransmetteur fondamental pour l'attention, la vigilance, la mémoire, la réponse au stress et le maintien de l'état de veille. Au cours des dernières décennies, il est apparu que le système locus coeruleus–noradrénaline constitue l'un des principaux régulateurs du cycle veille-sommeil, participant non seulement au maintien de la vigilance, mais aussi à l'organisation des différentes phases du sommeil (Van Egroo et al., 2022) [17].

Les enregistrements électrophysiologiques ont démontré que l'activité des neurones du locus coeruleus varie continuellement au cours de la journée. Durant la veille active, la fréquence de décharge est élevée, permettant au cerveau de maintenir des niveaux élevés d'attention et de réactivité. À l'approche du sommeil, l'activité noradrénergique diminue progressivement, atteignant des niveaux encore plus bas durant le sommeil non-REM. La situation change radicalement durant le sommeil REM, lorsque les neurones du locus coeruleus deviennent presque complètement silencieux et que les niveaux extracellulaires de noradrénaline chutent aux valeurs les plus basses observables dans l'ensemble du cycle veille-sommeil (Van Egroo et al., 2022) [17].

Pendant de nombreuses années, on a cru que le locus coeruleus était simplement « éteint » durant le sommeil. Les technologies modernes de surveillance de la noradrénaline ont cependant profondément modifié cette vision. Aujourd'hui, nous savons que durant le sommeil non-REM, le système noradrénergique continue de fonctionner par des oscillations rythmiques extrêmement précises qui contribuent à l'organisation de l'architecture du sommeil. Les niveaux de noradrénaline augmentent et diminuent cycliquement toutes les trente à cinquante secondes, se synchronisant avec des phénomènes fondamentaux comme les fuseaux du sommeil (brèves ondes électriques produites par le cerveau durant le sommeil léger), les oscillations corticales lentes et les variations de la fréquence cardiaque. Ce comportement suggère que le locus coeruleus n'est pas simplement un centre de la veille, mais un régulateur sophistiqué de la qualité du sommeil lui-même (Osorio-Forero et al., 2022) [20].

L'un des aspects les plus intéressants concerne le rôle de la noradrénaline dans la consolidation de la mémoire. Durant le sommeil non-REM, les oscillations contrôlées du système noradrénergique semblent favoriser la plasticité synaptique et le transfert des informations de l'hippocampe vers le cortex cérébral. Par la suite, durant le sommeil REM, la quasi-disparition de la noradrénaline crée un environnement neurochimique complètement différent qui favorise la réorganisation des connexions neuronales et le traitement des informations émotionnelles accumulées durant la journée. Cette réduction drastique de la noradrénaline durant le sommeil REM ne représente pas un simple effet secondaire du sommeil, mais une condition biologique nécessaire pour que le cerveau puisse entrer correctement dans cette phase. Les observations les plus récentes ont en effet montré que la chute des niveaux de noradrénaline commence plusieurs secondes avant le début d'un épisode REM. En d'autres termes, le silençage du locus coeruleus semble représenter l'un des événements qui préparent le cerveau à l'entrée dans le sommeil REM (Osorio-Forero et al., 2022) [20].

Dans ce contexte émerge le lien direct avec la mélatonine et avec le récepteur MT1 décrit dans le paragraphe précédent. Une étude publiée en 2024 a démontré que l'activation sélective des récepteurs MT1 présents sur les neurones noradrénergiques du locus coeruleus réduit de manière dose-dépendante leur activité électrique. Cette inhibition se traduit par une augmentation significative du sommeil REM sans altérer le sommeil non-REM. Lorsque les chercheurs ont bloqué pharmacologiquement le récepteur MT1 ou en ont silencé génétiquement l'expression dans les neurones du locus coeruleus, l'effet a complètement disparu. Ce résultat a fourni l'une des preuves les plus solides du fait que la mélatonine peut moduler directement le système noradrénergique par le biais du récepteur MT1, facilitant l'apparition du sommeil REM (López-Canul et al., 2024) [19].

Cette découverte permet de mieux comprendre le rôle de la mélatonine dans la physiologie du sommeil. Plutôt que d'agir comme un simple inducteur du sommeil, la mélatonine semble intervenir sur des circuits neuronaux spécifiques qui contrôlent le passage entre les différents états de vigilance. Par l'activation des récepteurs MT1 présents dans le locus coeruleus, elle contribue à réduire progressivement l'activité noradrénergique, créant les conditions neurochimiques nécessaires à l'entrée dans le sommeil REM (López-Canul et al., 2024) [19].

L'importance du locus coeruleus apparaît avec une évidence particulière lorsque le sommeil est altéré de façon chronique. Une étude expérimentale ayant simulé une condition très similaire à celle vécue par de nombreuses personnes dans la vie moderne, quelques jours de sommeil insuffisant suivis de brèves périodes de récupération, a documenté des conséquences surprenantes. Après plusieurs semaines de sommeil réduit intermittent, les animaux présentaient une perte significative de neurones noradrénergiques du locus coeruleus, accompagnée d'altérations persistantes du cycle veille-sommeil, d'une réduction des projections neuronales et de marqueurs biologiques compatibles avec des processus de vieillissement cellulaire accéléré (Zhu et al., 2016) [18].

La vulnérabilité du locus coeruleus à la perte de sommeil trouve confirmation également dans les études ayant analysé la privation sélective du sommeil REM. Dans ces conditions, on observe une augmentation du stress oxydatif, de l'activation apoptotique et de la dégénérescence des neurones noradrénergiques. Toutefois, l'administration de mélatonine après la privation de sommeil s'est révélée capable de contrer de manière significative ces phénomènes. Les chercheurs ont observé une augmentation des niveaux de glutathion réduit, une diminution de l'activation de la caspase-3 et une préservation de la population neuronale noradrénergique du locus coeruleus. En d'autres termes, la mélatonine ne s'est pas limitée à favoriser le sommeil, mais a montré une véritable action neuroprotectrice vis-à-vis de l'un des systèmes les plus importants pour la régulation de la vigilance (Jameie et al., 2019) [16].

Cette observation prend une importance particulière si l'on considère que le locus coeruleus est aujourd'hui reconnu comme l'une des premières structures cérébrales impliquées dans les processus neurodégénératifs associés au vieillissement et à la maladie d'Alzheimer. De nombreuses preuves suggèrent que l'accumulation d'altérations pathologiques dans cette région peut commencer de nombreuses années avant l'apparition des symptômes cognitifs. Parallèlement, la fragmentation chronique du sommeil accélère la perte des neurones noradrénergiques et favorise l'accumulation de protéines pathologiques comme tau et β-amyloïde, instaurant un cercle vicieux entre détérioration du sommeil et neurodégénérescence (Van Egroo et al., 2022) [17].

Dans l'ensemble, les preuves disponibles décrivent le système locus coeruleus–noradrénaline comme l'un des principaux orchestrateurs de la physiologie du sommeil. Son activité régule les transitions entre veille et sommeil, contribue à la consolidation de la mémoire, coordonne d'importantes fonctions autonomes et participe aux processus neuroprotecteurs qui maintiennent le cerveau efficace tout au long de la vie. La mélatonine, par son interaction avec les récepteurs MT1 présents dans les neurones noradrénergiques du locus coeruleus, semble s'insérer directement au sein de ce réseau de régulation, contribuant non seulement à l'organisation du sommeil REM, mais aussi à la protection à long terme de l'un des systèmes neuronaux les plus importants pour la santé cérébrale.

L’hypothalamus latéral, l’orexine et le locus coeruleus

Dans le paragraphe précédent, nous avons vu que le locus coeruleus représente l'un des principaux centres cérébraux responsables de la production de noradrénaline et de la régulation de l'état de vigilance. Cependant, pour comprendre pleinement le fonctionnement de ce système, il est nécessaire de remonter à la source et d'identifier ce qui contrôle l'activité du locus coeruleus lui-même. Les recherches des dernières décennies ont montré que l'un de ses plus importants régulateurs est un petit groupe de neurones situés dans l'hypothalamus latéral : les neurones producteurs d'orexine, également connue sous le nom d'hypocrétine.

La découverte de l'orexine a profondément modifié la compréhension de la physiologie du sommeil. Initialement, ce neuropeptide était surtout associé au contrôle de l'appétit et de l'équilibre énergétique. Au fil des ans, il est toutefois apparu que sa fonction principale consiste à coordonner l'état de vigilance de l'organisme avec les besoins biologiques du moment. Les neurones orexinergiques agissent en effet comme une sorte de centrale d'intégration qui recueille des informations provenant du métabolisme, des émotions, du système de récompense et de l'environnement extérieur, en les transformant en signaux capables de moduler le niveau d'activation cérébrale (Sakurai, 2007) [24].

Cette fonction semble particulièrement logique d'un point de vue évolutif. Un organisme qui se trouve dans des conditions de carence énergétique, qui perçoit un danger ou qui doit rechercher activement des ressources alimentaires ne peut se permettre de réduire son niveau de vigilance. Dans ces circonstances, le système orexinergique augmente son activité, favorisant un état d'attention soutenue et promouvant des comportements orientés vers la survie. Au contraire, pendant le sommeil, et en particulier pendant le sommeil paradoxal (REM), l'activité des neurones à orexine diminue radicalement (Sakurai, 2007) [24].

Malgré le nombre relativement réduit de neurones orexinergiques présents dans l'hypothalamus latéral, leurs projections atteignent de nombreuses régions cérébrales impliquées dans la régulation de la vigilance. Parmi toutes ces structures, le locus coeruleus représente probablement la cible la plus importante. Les analyses neuroanatomiques ont en effet démontré que le locus coeruleus reçoit l'une des innervations orexinergiques les plus denses de tout le cerveau. Les fibres provenant de l'hypothalamus latéral forment de nombreuses synapses excitatrices directes sur les neurones noradrénergiques du locus coeruleus, créant un lien anatomique extrêmement robuste entre les deux systèmes (Horvath et al., 1999) [21].

Les observations au microscope électronique ont mis en évidence que pratiquement tous les neurones noradrénergiques du locus coeruleus reçoivent des contacts synaptiques provenant de terminaisons contenant de l'orexine. Plus intéressant encore, ces synapses présentent des caractéristiques typiques des connexions excitatrices, suggérant que le système orexinergique est conçu pour augmenter directement l'activité des neurones du locus coeruleus ; les enregistrements électrophysiologiques ultérieurs ont confirmé cette hypothèse. Lorsque l'orexine est appliquée directement sur les neurones du locus coeruleus, leur fréquence de décharge augmente de manière rapide et constante. Cet effet est le résultat à la fois d'une dépolarisation de la membrane cellulaire et d'une réduction des mécanismes qui limitent normalement l'excitabilité neuronale. En d'autres termes, l'orexine rend les neurones noradrénergiques plus actifs et plus enclins à maintenir des niveaux élevés de vigilance (Horvath et al., 1999) [21].

Ces résultats ont été ultérieurement confirmés par des études qui ont analysé le rôle de l'orexine A, l'une des deux principales formes biologiquement actives du peptide. Les micro-injections d'orexine A directement dans le locus coeruleus déterminent une augmentation marquée de l'éveil, accompagnée d'une réduction significative du sommeil paradoxal et du sommeil profond. Dans certaines expériences, l'augmentation de l'état d'éveil a atteint des valeurs supérieures à 70 %, démontrant l'extraordinaire puissance de ce système d'activation neuronale ; il est particulièrement intéressant de noter que ces effets sont principalement médiés par le récepteur orexinergique de type 1 (OX1R). Cela suggère que la communication entre l'hypothalamus latéral et le locus coeruleus s'effectue par un mécanisme hautement spécialisé, optimisé pour promouvoir rapidement l'état d'éveil lorsque les conditions physiologiques l'exigent (Hagan et al., 1999) [22].

Le rôle du circuit orexine–locus coeruleus apparaît avec une clarté particulière lorsque l'on analyse les transitions entre l'éveil et le sommeil paradoxal. Comme vu dans le paragraphe précédent, le locus coeruleus est pratiquement silencieux pendant le sommeil paradoxal. L'activation orexinergique produit au contraire l'effet opposé : elle augmente l'activité des neurones noradrénergiques et rend plus difficile l'entrée dans cette phase du sommeil. Une étude consacrée spécifiquement à ce phénomène a démontré que l'administration locale d'orexine A dans le locus coeruleus supprime le sommeil paradoxal de manière dose-dépendante, tout en augmentant simultanément la durée de l'éveil. Cet effet est accompagné d'une activation neuronale marquée, documentée à la fois électrophysiologiquement et par l'augmentation de l'expression d'une protéine spécifique (Bourgin et al., 2000) [23].

Ces observations ont contribué à clarifier l'un des mécanismes par lesquels le cerveau stabilise les états comportementaux. Lorsque le système orexinergique est actif, le locus coeruleus continue de produire de la noradrénaline, maintenant un niveau d'éveil (arousal) élevé et empêchant l'intrusion de phénomènes liés au sommeil paradoxal pendant l'éveil. Lorsque l'activité orexinergique diminue, comme cela se produit physiologiquement pendant la nuit, le locus coeruleus peut progressivement réduire son activité, favorisant le passage aux différentes phases du sommeil (Bourgin et al., 2000) [23].

L'importance de ce circuit apparaît encore plus clairement en observant ce qui se passe dans la narcolepsie (un trouble neurologique du sommeil qui provoque une forte somnolence pendant la journée). Cette pathologie est caractérisée par la perte sélective des neurones orexinergiques de l'hypothalamus latéral. En l'absence de l'action stabilisatrice de l'orexine, le cerveau perd la capacité de maintenir une séparation nette entre le sommeil et l'éveil. Par conséquent, apparaissent une somnolence diurne, une fragmentation du sommeil et des phénomènes de sommeil paradoxal qui surviennent de manière inappropriée pendant l'éveil, comme cela arrive dans les épisodes de cataplexie (une perte soudaine et temporaire de la force musculaire) (Sakurai, 2007) [24].

Une étude particulièrement élégante a permis d'identifier les principaux circuits responsables de ces phénomènes. En rétablissant sélectivement la signalisation orexinergique dans différentes populations neuronales de modèles murins narcoleptiques, les chercheurs ont observé que la récupération de la transmission de l'orexine dans les neurones noradrénergiques du locus coeruleus améliore significativement la consolidation de l'éveil. L'effet était directement proportionnel au nombre de neurones du locus coeruleus chez lesquels la sensibilité à l'orexine avait été rétablie. Ce résultat a démontré que le locus coeruleus représente l'un des principaux effecteurs par lesquels le système orexinergique maintient un état de vigilance continu et stable (Hasegawa et al., 2014) [25].

Dans leur ensemble, ces preuves décrivent l'hypothalamus latéral comme une sorte de centre de commande capable de moduler continuellement le niveau de vigilance de l'organisme. Par la libération d'orexine, il active le locus coeruleus, augmente la production de noradrénaline et soutient l'état d'éveil lorsque l'organisme doit rester attentif à son environnement. Ce système représente le contrepoids physiologique des mécanismes favorisant le sommeil décrits dans les paragraphes précédents. D'une part, la mélatonine et le récepteur MT1 contribuent à réduire l'activité du locus coeruleus et à faciliter le sommeil paradoxal ; d'autre part, l'orexine exerce une action opposée, stimulant les neurones noradrénergiques et promouvant la vigilance. L'équilibre délicat entre ces forces opposées permet au cerveau d'alterner de manière ordonnée et stable les états de sommeil et d'éveil.

La mélatonine, l'hypothalamus latéral et l'orexine

Dans les paragraphes précédents, nous avons vu comment le locus coeruleus et le système orexinergique représentent certains des principaux promoteurs de la vigilance. Une question fondamentale demeure toutefois : comment la mélatonine, le signal biologique de la nuit, parvient-elle à contrer ces puissants systèmes d'activation cérébrale et à favoriser le sommeil ?

Pendant de nombreuses années, la réponse est restée incomplète. Il était connu que la mélatonine favorisait le sommeil et que l'orexine soutenait l'éveil, mais le lien direct entre ces deux systèmes neurobiologiques n'avait pas encore été élucidé. Les recherches les plus récentes ont cependant identifié un point de rencontre anatomique et fonctionnel important au sein de l'hypothalamus latéral périfornical, une région qui abrite une grande partie des neurones orexinergiques responsables du maintien de l'état de vigilance (Sharma et al., 2018) [26].

Pour comprendre l'importance de cette découverte, il est utile de rappeler que les neurones à orexine fonctionnent comme une sorte d'accélérateur de la conscience. Lorsqu'ils sont actifs, ils stimulent de nombreux systèmes d'éveil (arousal), notamment le locus coeruleus, les noyaux sérotoninergiques du raphé, les systèmes cholinergiques du tronc cérébral et d'autres structures impliquées dans la vigilance. À travers ces connexions diffuses, ils contribuent à maintenir le cerveau dans un état d'activation stable et cohérent avec les exigences de l'environnement (Hung et Yamanaka, 2023) [27].

Les techniques modernes d'immunofluorescence ont démontré que ces neurones expriment des récepteurs MT1 à la mélatonine. Cette observation suggère que le système mélatoninergique peut exercer un contrôle direct sur les principaux neurones promoteurs de l'éveil par un mécanisme hautement sélectif. La vérification expérimentale de cette hypothèse a produit des résultats particulièrement intéressants. Lorsque la mélatonine est administrée directement dans l'hypothalamus latéral périfornical, on observe une augmentation significative du sommeil non-REM accompagnée d'une réduction de l'éveil. Parallèlement, l'activité des neurones orexinergiques diminue radicalement, comme le prouve la réduction marquée de l'expression du marqueur neuronal c-Fos (protéine utilisée comme marqueur de l'activation neuronale). En d'autres termes, la mélatonine semble littéralement baisser le volume de l'un des principaux systèmes cérébraux responsables du maintien de la vigilance (Sharma et al., 2018) [26].

Il est particulièrement significatif de constater que l'effet inverse est observé lorsque la signalisation mélatoninergique est bloquée. L'inhibition pharmacologique des récepteurs de la mélatonine dans l'hypothalamus latéral entraîne en effet une augmentation de l'éveil et une réduction de la propension au sommeil. Ce résultat suggère que le contrôle exercé par la mélatonine sur les neurones à orexine ne représente pas un phénomène artificiel observable uniquement en laboratoire, mais constitue un mécanisme physiologique normalement actif durant la nuit (Sharma et al., 2018) [26].

Cette découverte a contribué à redéfinir la manière dont l'action de la mélatonine est interprétée. Pendant longtemps, on a imaginé que l'hormone agissait principalement comme un signal circadien capable d'informer le cerveau de l'arrivée de la nuit. Aujourd'hui, il apparaît de plus en plus évident que la mélatonine joue également un rôle actif dans la modulation des circuits neuronaux qui gouvernent les états de conscience. Dans cette perspective, le sommeil ne découlerait pas seulement de la présence d'un signal temporel favorable, mais aussi de la désactivation progressive des systèmes qui soutiennent l'éveil.

L'importance de ce mécanisme devient encore plus évidente en observant le comportement physiologique des neurones orexinergiques durant le cycle sommeil-éveil. Les enregistrements électrophysiologiques et les techniques d'imagerie modernes ont montré que ces neurones atteignent leur activité maximale durant l'éveil actif, l'exploration de l'environnement, l'exposition à de nouveaux stimuli et les comportements motivés. Au contraire, leur activité diminue progressivement durant l'éveil calme et devient minimale durant le sommeil non-REM. Une telle tendance suggère que l'inhibition de l'orexine représente l'une des étapes fondamentales permettant au cerveau de transiter de la vigilance au sommeil (Hung et Yamanaka, 2023) [27].

Les preuves génétiques renforcent encore cette interprétation. Les modèles animaux dépourvus d'orexine ou de ses récepteurs montrent en effet une instabilité marquée des états de conscience, avec une fragmentation de l'éveil, des épisodes de sommeil paradoxal (REM) précoces et des manifestations similaires à la narcolepsie humaine. Ces observations démontrent que le système orexinergique représente l'un des principaux mécanismes par lesquels le cerveau maintient la continuité de l'état d'éveil (Hung et Yamanaka, 2023) [27].

De cette perspective émerge un tableau particulièrement élégant de la physiologie du sommeil. Durant la journée, l'activité des neurones orexinergiques contribue à soutenir la vigilance et à activer des systèmes comme le locus coeruleus et la transmission noradrénergique. Avec l'arrivée de la nuit, l'augmentation de la sécrétion de mélatonine permet de réduire progressivement cette activité par le biais des récepteurs MT1 exprimés sur les neurones à orexine. La diminution de l'activité orexinergique se traduit donc par une moindre stimulation des systèmes d'éveil, facilitant l'entrée dans le sommeil et sa stabilisation (Sharma et al., 2018) [26].

L'importance clinique de ce rapport a également été confirmée par des études pharmacologiques récentes. L'observation que des agonistes des récepteurs de la mélatonine et des antagonistes des récepteurs de l'orexine produisent des bénéfices similaires dans diverses conditions pathologiques suggère en effet que les deux approches thérapeutiques peuvent converger sur les mêmes circuits neurobiologiques. Dans une étude menée sur des patients âgés hospitalisés pour un AVC, l'administration précoce d'un agoniste du récepteur de la mélatonine ou d'antagonistes des récepteurs de l'orexine a été associée à une réduction significative de l'incidence des symptômes délirants. Les auteurs ont émis l'hypothèse que ce bénéfice découle au moins en partie de l'amélioration de la qualité du sommeil et de la normalisation du rythme sommeil-éveil, confirmant l'importance de l'équilibre entre le système mélatoninergique et le système orexinergique dans la stabilité des fonctions cognitives (Miyoshi et al., 2024) [28].

Ces observations ouvrent des perspectives thérapeutiques particulièrement intéressantes. Si la mélatonine favorise le sommeil en réduisant l'activité des neurones à orexine et si les antagonistes des récepteurs orexinergiques produisent des effets cliniques similaires par un mécanisme différent, il devient plausible de considérer ces deux systèmes comme des parties complémentaires d'un même réseau biologique. Dans ce modèle, la mélatonine représenterait le signal physiologique qui communique l'arrivée de la nuit, tandis que l'orexine constituerait le principal système devant être progressivement réduit au silence pour que le sommeil puisse émerger de manière stable et efficace.

Dans l'ensemble, les preuves disponibles indiquent que le rapport entre mélatonine et orexine représente l'un des principaux points de rencontre entre le système circadien et les circuits neuronaux de la vigilance. Par l'activation des récepteurs MT1 présents dans l'hypothalamus latéral, la mélatonine semble en effet inhiber directement l'un des plus puissants promoteurs de l'éveil présents dans le cerveau. Ce mécanisme permet de lier le signal biologique de la nuit à la réduction de l'éveil neuronal, créant les conditions nécessaires pour que le sommeil puisse se développer de manière physiologique et coordonnée.

Les récepteurs MT1 dans le corps humain

Jusqu'à présent, nous avons suivi le parcours de la mélatonine au sein des circuits cérébraux qui régulent le sommeil, en observant comment elle interagit avec le locus coeruleus, la noradrénaline et le système orexinergique de l'hypothalamus latéral. À ce stade, une conviction erronée pourrait naître spontanément : imaginer que les récepteurs MT1 sont confinés presque exclusivement au cerveau et que leur fonction principale est de réguler le sommeil. En réalité, les recherches de ces dernières années ont révélé une réalité beaucoup plus fascinante et complexe. Les récepteurs MT1 sont distribués dans de nombreux organes et tissus de l'organisme et participent à la régulation de processus biologiques impliquant le métabolisme, le système cardiovasculaire, l'immunité, la fonction endocrine et même la protection cellulaire contre le stress oxydatif (Jockers et al., 2016) [29] ; (Slominski et al., 2012) [31].

D'un point de vue structurel, le récepteur MT1 appartient à la grande famille des récepteurs couplés aux protéines G. Lorsque la mélatonine se lie à ce récepteur, une cascade de signaux intracellulaires est activée, modifiant le comportement de la cellule. Parmi les effets les plus importants, on note la réduction des niveaux intracellulaires d'AMP cyclique (molécule qui transmet des signaux à l'intérieur des cellules, régulant des fonctions importantes), la modulation des protéines kinases (enzymes qui régulent l'activité d'autres protéines en ajoutant des groupes phosphate), le contrôle des flux ioniques (mouvement de particules électriquement chargées (ions) à travers la membrane cellulaire) et la régulation de l'expression génique. Dans certains tissus, le récepteur peut également activer la voie de la phospholipase C (une enzyme qui transforme certains lipides de la membrane cellulaire en signaux chimiques) et de la protéine kinase C, élargissant ainsi la variété des réponses biologiques possibles (Jockers et al., 2016) [29] ; (Tripathy et Bhattamisra, 2025) [33].

L'un des systèmes périphériques les plus riches en signalisation mélatoninergique est le tractus gastro-intestinal. Pendant de nombreuses années, on a cru que la glande pinéale était la principale source de mélatonine de l'organisme. Aujourd'hui, nous savons que l'intestin produit des quantités de mélatonine extrêmement élevées, souvent supérieures à celles présentes dans la circulation sanguine. Les études menées sur des tissus humains ont identifié le récepteur MT1 tout au long du tractus gastro-intestinal, y compris dans l'épithélium intestinal, le plexus myentérique, le plexus sous-muqueux (réseau de neurones situé entre les couches musculaires de l'intestin) et les structures vasculaires de la paroi intestinale (Söderquist et al., 2015) [30].

Cette distribution suggère que la mélatonine participe directement à la régulation de la motilité intestinale, de la sécrétion digestive, de la fonction barrière et de la communication entre le système nerveux entérique et l'appareil digestif. En d'autres termes, le tractus gastro-intestinal ne représente pas seulement un organe cible de la mélatonine, mais un véritable système mélatoninergique périphérique doté d'une autonomie fonctionnelle considérable (Söderquist et al., 2015) [30] ; (Slominski et al., 2012) [31].

La présence des récepteurs MT1 dans le pancréas endocrine est particulièrement intéressante. Les cellules des îlots pancréatiques expriment en effet des composants complets de la signalisation mélatoninergique. Cette observation a attiré l'attention des chercheurs car elle relie directement la mélatonine au contrôle du métabolisme glucidique. Par l'intermédiaire de ses récepteurs, la mélatonine contribue à la modulation de la sécrétion insulinique et à la synchronisation circadienne du métabolisme énergétique. Des altérations de la signalisation mélatoninergique ont été associées à l'insulinorésistance, à une fonction altérée des cellules β et à un risque accru de diabète sucré de type 2 (Söderquist et al., 2015) [30] ; (Tripathy et Bhattamisra, 2025) [33].

Le système cardiovasculaire possède également une expression significative de récepteurs MT1. Ces récepteurs ont été identifiés dans la paroi des vaisseaux sanguins, tant au niveau des cellules musculaires lisses que de l'endothélium. Les recherches indiquent que l'activation de MT1 est généralement associée à des phénomènes vasoconstricteurs médiés par la réduction de l'AMP cyclique et la modulation des canaux potassiques calcium-dépendants. Ce mécanisme contribue à la régulation fine du tonus vasculaire et de la pression artérielle, en intégrant les signaux circadiens aux besoins hémodynamiques de l'organisme (da Rocha-Carvalho et al., 2025) [32] ; (Slominski et al., 2012) [31].

L'intérêt pour ces effets s'est accru en observant que l'expression des récepteurs MT1 tend à diminuer avec le vieillissement et dans diverses conditions cardiovasculaires pathologiques. Certains chercheurs ont émis l'hypothèse que la perte progressive de sensibilité à la mélatonine pourrait contribuer aux altérations vasculaires associées à l'âge, favorisant le dysfonctionnement endothélial, l'augmentation de la rigidité artérielle et une capacité réduite d'adaptation aux rythmes circadiens (da Rocha-Carvalho et al., 2025) [32].

Un autre domaine particulièrement pertinent concerne le système immunitaire. De nombreuses cellules immunitaires expriment des récepteurs MT1 et répondent directement à la présence de la mélatonine. Grâce à ces mécanismes, la mélatonine peut influencer la prolifération lymphocytaire, la production de cytokines et la régulation des réponses inflammatoires. En particulier, le récepteur MT1 semble être impliqué dans la modulation de l'immunité adaptative, contribuant à la production d'interleukine-2 (une protéine du système immunitaire qui stimule la croissance et la multiplication des lymphocytes T) et au contrôle de l'activité des lymphocytes T (Jockers et al., 2016) [29] ; (Slominski et al., 2012) [31].

La distribution périphérique de MT1 s'étend également au rein, au tissu osseux, à la peau, aux organes reproducteurs et au placenta. Dans le rein, il contribue à la régulation de l'homéostasie hydro-électrolytique et à la protection contre les processus inflammatoires. Dans le tissu osseux, il favorise l'activité des ostéoblastes et le maintien de la masse squelettique. Dans la peau, il participe à la protection contre le stress oxydatif et à la régulation de la prolifération cellulaire. Pendant la grossesse, la présence de récepteurs mélatoninergiques dans le placenta et l'utérus contribue à la protection fœtale et à la régulation des processus gestationnels (Slominski et al., 2012) [31].

Un aspect qui suscite un intérêt croissant concerne le rôle des récepteurs MT1 dans les maladies chroniques. Des altérations de l'expression réceptoriale ont été observées dans la maladie d'Alzheimer, la maladie de Parkinson, la maladie de Huntington et certains troubles du neurodéveloppement. Dans bon nombre de ces conditions, on observe simultanément des altérations du sommeil, des rythmes circadiens et de la fonction métabolique, ce qui suggère que le dysfonctionnement de la signalisation mélatoninergique pourrait contribuer à la progression de la maladie (Jockers et al., 2016) [29].

Dans l'ensemble, l'ensemble des preuves disponibles modifie profondément l'image traditionnelle de la mélatonine en tant que simple hormone du sommeil. Le récepteur MT1 émerge en effet comme un composant d'un vaste réseau biologique distribué dans tout l'organisme. Par sa présence dans le cerveau, l'intestin, le pancréas, les vaisseaux sanguins, le système immunitaire et de nombreux autres tissus, il contribue à coordonner des fonctions allant de la régulation circadienne au métabolisme énergétique, de l'immunité à la protection cellulaire. Cette vision systémique permet de comprendre comment le signal nocturne de la mélatonine n'est pas destiné exclusivement au cerveau, mais représente un message biologique global capable de synchroniser l'organisme entier avec le rythme de la journée.

Mélatonine et autophagie

Pour comprendre pleinement nombre des fonctions attribuées à la mélatonine, il est nécessaire d'introduire un processus biologique fondamental pour la survie cellulaire : l'autophagie. Le terme dérive du grec et signifie littéralement « manger soi-même », mais cette définition peut s'avérer trompeuse. L'autophagie ne représente pas un mécanisme autodestructeur, mais plutôt un extraordinaire système de maintenance interne grâce auquel la cellule identifie, séquestre et dégrade les composants endommagés, les protéines mal repliées et les organites qui ne fonctionnent plus, pour ensuite réutiliser leurs constituants dans la production de nouvelles structures cellulaires (Coto-Montes et al., 2012) [34] ; (Boga et al., 2019) [35].

On pourrait comparer ce processus à ce qui se passe dans une ville bien organisée. Chaque jour, les déchets sont collectés, les matériaux endommagés sont éliminés et des matières premières utiles sont récupérées pour de nouvelles constructions. Si ce système de collecte et de recyclage venait à s'interrompre, les rues finiraient progressivement par se remplir de débris, compromettant le fonctionnement de toute la ville. De la même manière, lorsque l'autophagie est altérée, les cellules accumulent des structures endommagées qui favorisent l'inflammation, le dysfonctionnement métabolique, le vieillissement et la maladie (Coto-Montes et al., 2012) [34].

Ces dernières années, il est apparu que la mélatonine représente l'un des plus importants régulateurs physiologiques de ce système. Initialement, on pensait que son rôle se limitait à la neutralisation directe des radicaux libres et à la régulation du rythme veille-sommeil. Les preuves les plus récentes ont démontré que la mélatonine intervient à un niveau beaucoup plus profond, en coordonnant de nombreux mécanismes cellulaires impliqués dans le contrôle de la qualité intracellulaire (Boga et al., 2019) [35] ; (Lei et al., 2024) [38].

L'un des éléments qui relie étroitement la mélatonine et l'autophagie est le stress oxydatif. Au cours du métabolisme cellulaire normal, des espèces réactives de l'oxygène, communément appelées ROS, sont continuellement générées. En quantités physiologiques, ces molécules jouent d'importantes fonctions de signalisation. Cependant, lorsque leur production dépasse la capacité défensive de la cellule, des dommages s'accumulent sur les protéines, les lipides, l'ADN et les mitochondries. Dans ces conditions, l'autophagie est activée comme mécanisme d'urgence pour éliminer les structures compromises et rétablir l'homéostasie cellulaire (Coto-Montes et al., 2012) [34] ; (Lei et al., 2024) [38].

La mélatonine participe activement à ce processus par le biais de nombreuses voies moléculaires. Parmi les plus importantes figurent l'activation de l'AMPK, l'un des principaux capteurs énergétiques cellulaires, et l'inhibition de mTOR, une protéine qui supprime normalement l'autophagie lorsque les ressources énergétiques sont abondantes. Grâce à cette régulation, la mélatonine favorise l'activation d'ULK1 (une protéine qui déclenche l'autophagie) et le démarrage de la formation des autophagosomes, les structures qui englobent le matériel à dégrader (Qiu et al., 2026) [40] ; (Zhu et al., 2025) [39].

Parmi les différentes formes d'autophagie, l'une des plus importantes est la mitophagie, un processus sélectif dédié exclusivement à l'élimination des mitochondries endommagées. Les mitochondries constituent les principales centrales énergétiques de la cellule, mais elles sont également l'une des plus grandes sources intracellulaires de radicaux libres. Lorsqu'elles deviennent dysfonctionnelles, elles peuvent passer du statut de productrices d'énergie à celui de génératrices de dommages cellulaires. Pour cette raison, l'organisme a développé des systèmes sophistiqués de contrôle de la qualité mitochondriale qui permettent d'éliminer sélectivement les organites compromis et de les remplacer par de nouvelles mitochondries fonctionnelles (Coto-Montes et al., 2012) [34] ; (Lei et al., 2024) [38].

Les preuves les plus récentes suggèrent que la mélatonine joue un rôle particulièrement important dans le contrôle de la qualité mitochondriale. En plus de protéger directement les mitochondries contre les dommages oxydatifs, elle régule la fusion et la fission mitochondriales, favorise la biogenèse de nouveaux organites et stimule la mitophagie par des systèmes spécifiques. Cet ensemble coordonné de mécanismes permet de préserver l'efficacité énergétique de la cellule et de limiter l'accumulation de structures dysfonctionnelles (Lei et al., 2024) [38] ; (Zhu et al., 2025) [39].

Un aspect particulièrement fascinant apparu dans les recherches est que la mélatonine ne se comporte pas comme un simple interrupteur qui active toujours l'autophagie. Au contraire, elle agit comme un régulateur adaptatif : lorsque le flux autophagique est insuffisant et que la cellule accumule des structures endommagées, la mélatonine tend à le renforcer ; lorsque, au contraire, l'autophagie devient excessive et risque de se transformer en mécanisme autodestructeur, la mélatonine peut la limiter. En d'autres termes, son objectif n'est pas d'augmenter ou de réduire l'autophagie de manière indiscriminée, mais de maintenir l'équilibre optimal nécessaire à la survie cellulaire (Boga et al., 2019) [35] ; (Zhu et al., 2025) [39] ; (Lei et al., 2024) [38].

Cette nature bidirectionnelle apparaît particulièrement évidente dans le système nerveux. Les maladies neurodégénératives comme Alzheimer et Parkinson sont caractérisées par l'accumulation progressive de protéines agrégées et de mitochondries endommagées. Dans ces contextes, la mélatonine favorise l'autophagie et la mitophagie, facilitant l'élimination des structures pathologiques, améliorant la fonction mitochondriale et réduisant la neuro-inflammation. Dans d'autres scénarios neurologiques, cependant, une activation excessive de l'autophagie peut contribuer à la mort neuronale ; dans de telles conditions, la mélatonine semble exercer un effet modérateur, contribuant à rétablir l'équilibre cellulaire (Zhu et al., 2025) [39] ; (Boga et al., 2019) [35].

La même capacité régulatrice a été observée dans le foie. Dans un modèle murin de stéato-hépatite associée à l'obésité et à l'hypoxie intermittente chronique, une condition fréquemment observée chez les sujets atteints du syndrome d'apnées obstructives du sommeil, la mélatonine a réduit les dommages hépatiques en rétablissant l'activité autophagique. La récupération du flux autophagique a été associée à une réduction de l'inflammation, à une amélioration de la structure du foie et à une moindre progression de la maladie métabolique (Ren et al., 2019) [36].

Le tissu osseux semble également bénéficier de cette régulation. Dans des modèles d'ostéoporose diabétique, l'hyperglycémie chronique compromet la capacité régénératrice des cellules souches mésenchymateuses (cellules immatures capables de se transformer en différents types de cellules, comme celles des os, du cartilage et du tissu adipeux) et favorise un état inflammatoire persistant. La mélatonine s'est révélée capable d'activer la voie NRF2-autophagie, de réduire le stress oxydatif et de favoriser la polarisation des macrophages vers le phénotype anti-inflammatoire M2. Ce changement du microenvironnement cellulaire a favorisé la différenciation ostéogénique et l'amélioration de la formation osseuse (Zhang et al., 2026) [41].

Le rôle de l'autophagie est également particulièrement intéressant en oncologie. Les cellules tumorales utilisent fréquemment les mécanismes autophagiques pour survivre dans des environnements hostiles caractérisés par une carence en nutriments, une hypoxie et un stress métabolique. Dans certains contextes, la mélatonine semble exploiter précisément ce système pour contrer la croissance néoplasique. Dans les cellules de neuroblastome, par exemple, elle induit une forme d'autophagie cytotoxique par l'activation de l'axe Pak2/AMPK/mTOR et la modulation du stress du réticulum endoplasmique, contribuant à la suppression de la croissance tumorale (Qiu et al., 2026) [40].

Des résultats analogues ont été observés dans le cancer colorectal. Dans ce modèle, la mélatonine augmente la production d'espèces réactives de l'oxygène, active la réponse au stress du réticulum endoplasmique et induit l'expression de protéines autophagiques spécifiques. Des modifications des voies AMPK et PI3K/AKT/mTOR sont également apparues. L'issue finale est une activation de l'autophagie associée à la mort des cellules tumorales, suggérant un rôle possible de la mélatonine comme adjuvant dans les stratégies thérapeutiques oncologiques (Chok et al., 2021) [37].

Dans l'ensemble, les preuves actuellement disponibles montrent que la mélatonine représente bien plus qu'un simple régulateur du sommeil. Par le contrôle de l'autophagie et de la mitophagie, elle intervient dans certains des mécanismes les plus importants de maintien de l'homéostasie cellulaire. La capacité de moduler l'AMPK, mTOR et de nombreuses autres voies de signalisation permet à la mélatonine d'adapter la réponse cellulaire aux besoins spécifiques de chaque tissu et de chaque condition pathologique. Dans cette perspective, l'autophagie apparaît comme l'un des principaux outils par lesquels la mélatonine protège l'organisme du vieillissement, du dysfonctionnement métabolique, de la neurodégénérescence et des dommages cellulaires chroniques.

AMPK et l'autophagie

Dans le paragraphe précédent, nous avons vu comment la mélatonine peut influencer l'autophagie par le biais de nombreuses voies de signalisation intracellulaires, notamment AMPK et mTOR. Pour comprendre pleinement ce mécanisme, il est nécessaire de se pencher sur l'un des plus importants capteurs métaboliques présents dans l'organisme : la protéine kinase activée par l'AMP, mieux connue sous le nom d'AMPK.

Chaque cellule du corps humain est constamment confrontée à un défi fondamental : équilibrer la consommation et la production d'énergie. Lorsque l'énergie disponible est abondante, la cellule peut investir des ressources dans la croissance, la synthèse protéique et la prolifération. En revanche, lorsque les réserves énergétiques diminuent, il devient nécessaire d'adopter des stratégies d'économie et de récupération. Dans ce contexte, l'AMPK joue le rôle d'une véritable centrale de contrôle métabolique, capable de surveiller en continu le rapport entre l'AMP et l'ATP (deux molécules liées à la disponibilité de l'énergie cellulaire) et d'adapter le comportement cellulaire aux conditions énergétiques du moment (Smiles et al., 2024) [43] ; (Mandic et al., 2025) [45].

On pourrait comparer l'AMPK à un système sophistiqué de gestion des urgences installé dans une grande ville. Lorsque les ressources énergétiques sont suffisantes, les activités se déroulent normalement. Si, au contraire, une pénurie d'énergie survient, le système intervient immédiatement en réduisant les consommations non essentielles et en activant des mécanismes destinés à rétablir l'équilibre. Ce principe représente le fondement biologique de l'action de l'AMPK (Mandic et al., 2025) [45].

Pour remplir cette fonction, l'AMPK travaille en étroite collaboration avec un autre régulateur métabolique important : mTORC1. Si l'AMPK représente le capteur de la rareté énergétique, mTORC1 peut être considéré comme le promoteur de la croissance cellulaire. Lorsque les nutriments et l'énergie sont abondants, mTORC1 favorise la synthèse protéique, la prolifération et l'anabolisme. Lorsque l'énergie diminue, l'AMPK intervient en supprimant l'activité de mTORC1 et en orientant le métabolisme vers des processus de conservation et de récupération des ressources (Smiles et al., 2024) [43] ; (Al-Kuraishy et al., 2025) [46].

Cette relation antagoniste représente l'un des plus importants points de contrôle métabolique de l'organisme tout entier. Par la phosphorylation de protéines telles que TSC2, l'AMPK est capable de réduire l'activité de mTORC1, interrompant temporairement les programmes cellulaires à forte consommation énergétique et favorisant l'activation de voies cataboliques orientées vers la survie (Smiles et al., 2024) [43] ; (Mandic et al., 2025) [45].

Parmi les principales cibles de cette régulation se trouve ULK1, une kinase considérée comme le point de départ du programme autophagique. ULK1 représente le nœud de convergence par lequel l'AMPK et mTOR communiquent avec le système de l'autophagie. En présence de nutriments abondants, mTORC1 phosphoryle ULK1 sur des sites inhibiteurs, empêchant ainsi le déclenchement de l'autophagie. Lorsque les ressources énergétiques diminuent, l'AMPK modifie ULK1 par différents événements de phosphorylation qui permettent l'activation du programme autophagique et le début de la formation des autophagosomes (Smiles et al., 2024) [43].

Pendant de nombreuses années, cette relation a été interprétée selon un modèle relativement simple : carence énergétique, activation de l'AMPK, inhibition de mTOR, activation d'ULK1 et induction conséquente de l'autophagie. Ce paradigme a dominé la littérature scientifique pendant plus de deux décennies et a été confirmé par de nombreuses études expérimentales menées sur des cellules, des modèles animaux et des tissus humains (Kim, 2024) [44] ; (Mandic et al., 2025) [45].

Selon cette vision classique, l'autophagie représente un outil par lequel la cellule récupère des nutriments et des substrats énergétiques pendant les périodes de stress métabolique. En éliminant les organites endommagés, les agrégats protéiques et d'autres composants devenus non fonctionnels, la cellule peut recycler des matériaux précieux et les utiliser pour soutenir ses fonctions vitales (Mandic et al., 2025) [45].

De ces observations est né un nouveau modèle interprétatif. Selon cette perspective, l'AMPK ne serait pas simplement un activateur de l'autophagie, mais un régulateur dynamique capable de décider quand et dans quelle mesure le processus doit être activé. Durant une phase initiale de déplétion énergétique sévère, l'AMPK pourrait préserver la machinerie autophagique en maintenant des protéines comme ULK1 dans un état fonctionnellement prêt mais temporairement inactif. Une fois des conditions énergétiques plus favorables rétablies, l'autophagie pourrait être lancée de manière plus efficace et durable (Kim, 2024) [44].

Ce concept a été défini par certains auteurs comme le maintien de la « compétence autophagique ». En d'autres termes, l'AMPK ne contrôlerait pas seulement l'allumage ou l'extinction de l'autophagie, mais garantirait que l'ensemble du système reste prêt à répondre lorsque les conditions métaboliques le permettent (Kim, 2024) [44] ; (Mandic et al., 2025) [45].

Dans le muscle squelettique également, l'axe AMPK/mTOR/autophagie joue un rôle central. Pendant l'exercice physique, l'augmentation de la consommation énergétique entraîne l'activation de l'AMPK, la suppression de mTORC1 et la stimulation coordonnée de l'autophagie et de la biogenèse lysosomale (le processus par lequel les cellules produisent de nouveaux lysosomes, de petits organites qui dégradent et recyclent les déchets). Ce processus favorise l'élimination des protéines endommagées et des mitochondries dysfonctionnelles, améliorant ainsi la qualité cellulaire, la sensibilité à l'insuline et la flexibilité métabolique. Dans l'obésité sarcopénique, ces adaptations contribuent simultanément à la conservation de la masse musculaire et à la réduction de l'accumulation adipeuse (Zhang et al., 2026) [42].

L'importance de l'AMPK apparaît également dans les maladies cardiovasculaires. Dans l'athérosclérose, l'activation chronique de mTOR et la compromission de l'autophagie favorisent le dysfonctionnement endothélial, l'inflammation vasculaire et la progression de la plaque athéroscléreuse. À l'inverse, l'activation de l'AMPK améliore le métabolisme lipidique, réduit la production de cytokines inflammatoires et favorise le rétablissement de l'autophagie physiologique, contribuant ainsi à la protection de la paroi vasculaire (Al-Kuraishy et al., 2025) [46].

Dans l'ensemble, les preuves actuelles montrent que l'AMPK représente bien plus qu'un simple capteur énergétique. Elle constitue l'un des principaux chefs d'orchestre de l'homéostasie cellulaire, capable de coordonner la croissance, la survie, le métabolisme et l'autophagie à travers un réseau de régulations extrêmement sophistiqué. La vision moderne ne décrit plus l'AMPK comme un simple activateur de l'autophagie, mais comme un régulateur contextuel qui adapte continuellement la réponse cellulaire aux conditions énergétiques du moment. Par le dialogue avec mTOR, l'AMPK contribue à maintenir cet équilibre dynamique qui permet aux cellules de survivre, de s'adapter et de fonctionner correctement, même en présence de stress métaboliques significatifs.

La voie MT1 → AMPK ↑ → mTORC1 ↓

Au cours des paragraphes précédents, nous avons vu que la mélatonine est bien plus qu'une simple hormone impliquée dans la régulation du sommeil. Les preuves scientifiques montrent en effet qu'elle participe au contrôle du métabolisme énergétique, de l'autophagie, de la fonction mitochondriale, de la réponse au stress oxydatif et de la survie cellulaire. Au cœur de bon nombre de ces fonctions émerge une voie de signalisation commune, constituée par l'axe MT1–AMPK–mTORC1, qui représente l'un des principaux mécanismes par lesquels la mélatonine traduit le signal circadien en adaptations biologiques concrètes.

Lorsque la mélatonine se lie à ses récepteurs, en particulier à MT1, une cascade d'événements intracellulaires est déclenchée, menant à l'activation de l'AMPK, le principal capteur énergétique cellulaire. L'activation de l'AMPK signale à la cellule la nécessité d'optimiser l'utilisation des ressources disponibles, en réduisant les processus anaboliques à forte consommation énergétique et en favorisant les mécanismes d'adaptation et de maintenance cellulaire. L'une des principales cibles de cette régulation est mTORC1, un complexe protéique qui favorise la croissance, la synthèse protéique et l'accumulation de nutriments lorsque les conditions métaboliques sont favorables (Chen et al., 2020) [47] ; (Zhang et al., 2019) [50].

En termes simples, on pourrait imaginer l'AMPK et mTORC1 comme les deux plateaux d'une balance métabolique. Lorsque mTORC1 prédomine, la cellule investit de l'énergie dans la croissance et la construction de nouvelles structures. Lorsque l'AMPK est activée, en revanche, l'organisme privilégie la conservation des ressources, le recyclage des composants endommagés et la protection cellulaire. La mélatonine semble posséder la capacité de faire pencher cette balance vers des programmes métaboliques davantage orientés vers la résilience cellulaire, surtout durant les heures nocturnes (Wang et al., 2019) [51] ; (Chen et al., 2020) [47].

L'un des exemples les plus clairs de ce mécanisme provient des études sur la calcification vasculaire. Dans cette condition pathologique, les cellules musculaires lisses des vaisseaux sanguins tendent progressivement à adopter des caractéristiques similaires à celles des cellules osseuses, favorisant le dépôt de calcium dans la paroi artérielle. Chen et ses collaborateurs ont démontré que la mélatonine active l'AMPK, inhibe mTORC1 et augmente l'activité d'ULK1, favorisant ainsi l'autophagie tout en réduisant simultanément le dépôt de calcium et l'activité apoptotique des cellules vasculaires. Lorsque les chercheurs ont bloqué l'AMPK ou réactivé artificiellement mTOR, une grande partie des effets protecteurs de la mélatonine a disparu, confirmant le rôle central de l'axe AMPK–mTORC1 (Chen et al., 2020) [47].

La même architecture moléculaire a également été observée dans le système nerveux. Dans les cellules de neuroblastome, une forme tumorale particulièrement agressive, la mélatonine s'est révélée capable d'augmenter l'expression de la protéine Pak2, qui à son tour active l'AMPK et supprime la signalisation de mTOR. Dans ce contexte, l'autophagie ne joue pas un rôle protecteur pour la cellule tumorale, mais contribue à son élimination, suggérant que la mélatonine puisse exploiter l'axe AMPK–mTORC1 pour limiter la croissance néoplasique (Qiu et al., 2026) [40].

Les preuves recueillies dans le système reproducteur montrent une cohérence remarquable avec ces résultats. Dans le corps jaune des brebis, la phase caractérisée par la plus forte production de progestérone coïncide avec l'expression la plus élevée des récepteurs MT1 et MT2 et avec le flux autophagique le plus intense, suggérant que la mélatonine puisse soutenir la stéroïdogenèse (le processus par lequel l'organisme transforme le cholestérol en hormones stéroïdiennes) précisément par la modulation de l'autophagie médiée par l'axe AMPK–mTOR. Dans ce scénario, l'autophagie n'apparaît pas comme un mécanisme de dégradation en soi, mais comme un outil permettant à la cellule lutéale d'optimiser son métabolisme pour soutenir la synthèse hormonale (Duan et al., 2024) [48].

Un tableau analogue émerge dans l'ovaire sénescent. Avec l'avancée en âge, l'accumulation d'espèces réactives de l'oxygène, la détérioration de la fonction mitochondriale et l'altération de l'homéostasie énergétique compromettent progressivement la qualité ovocytaire. Les études menées sur des modèles murins ont démontré que l'administration chronique de mélatonine augmente le nombre d'ovocytes récupérables, améliore la qualité embryonnaire et accroît la fertilité. Ces effets sont étroitement dépendants de l'activation du récepteur MT1 et de la voie AMPK, comme le démontre la réduction marquée de la fertilité observée chez les animaux dépourvus du récepteur MT1. L'activation de cet axe est en outre associée à une réduction du stress oxydatif, à une activité antioxydante accrue et à une meilleure préservation de la fonction mitochondriale (Zhang et al., 2019) [50].

Le système reproducteur masculin semble également bénéficier de la même régulation biologique. Lors de la cryoconservation des spermatozoïdes, la congélation et la décongélation provoquent une production massive d'espèces réactives de l'oxygène qui compromet la motilité, l'intégrité cellulaire et la capacité fécondante. Zhu et ses collaborateurs ont observé que la mélatonine augmente significativement la phosphorylation de l'AMPK, réduit les niveaux intracellulaires de ROS, limite la peroxydation lipidique et améliore la survie des spermatozoïdes après décongélation. Le fait que ces effets soient atténués par le blocage des récepteurs de la mélatonine suggère une fois de plus l'existence d'une connexion fonctionnelle entre MT1, l'AMPK et les mécanismes de protection cellulaire (Zhu et al., 2019) [49].

L'un des aspects les plus intéressants apparus au cours des recherches concerne le métabolisme lipidique. Dans les cellules épithéliales mammaires bovines, la mélatonine induit une augmentation de l'expression du récepteur MT1 et une réduction marquée de la phosphorylation de mTOR et de ses principaux effecteurs. Ce changement s'accompagne d'une diminution de la synthèse des triglycérides, de la formation de gouttelettes lipidiques intracellulaires et de l'accumulation de graisse dans le lait. Lorsque mTOR est réactivé expérimentalement, les effets de la mélatonine sont annulés, démontrant que la suppression de mTOR représente l'étape cruciale de ce mécanisme (Wang et al., 2019) [51].

En considérant ces résultats dans leur ensemble, un modèle biologique étonnamment cohérent émerge. Dans des tissus et des conditions très différents les uns des autres — vaisseaux sanguins, cerveau, ovaire, corps jaune, spermatozoïdes et glande mammaire — la mélatonine tend à converger vers les mêmes nœuds régulateurs. L'activation des récepteurs MT1 favorise l'activation de l'AMPK ; l'AMPK réduit l'activité de mTORC1 ; la diminution de la signalisation mTORC1 permet l'activation de programmes adaptatifs tels que l'autophagie, la protection mitochondriale, le contrôle du stress oxydatif et la régulation métabolique.

Cette observation suggère que la mélatonine n'agit pas simplement comme un signal de l'obscurité, mais comme un coordinateur systémique de l'économie énergétique cellulaire. Durant la nuit, lorsque l'organisme réduit bon nombre des activités associées à l'environnement extérieur, la mélatonine semble favoriser les processus de maintenance, de réparation, de recyclage et d'optimisation métabolique. À travers l'axe MT1–AMPK–mTORC1, elle contribue à maintenir l'équilibre entre croissance et conservation, entre synthèse et recyclage, entre consommation énergétique et survie cellulaire.

À la lumière des preuves actuellement disponibles, la voie MT1–AMPK–mTORC1 peut être considérée comme l'un des principaux mécanismes biologiques par lesquels la mélatonine exerce ses effets systémiques. La conservation extraordinaire de cet axe dans des tissus différents suggère qu'il représente un élément central de la physiologie mélatoninergique et une cible thérapeutique possible pour de nombreuses conditions caractérisées par un dysfonctionnement métabolique, une altération de l'autophagie, un stress oxydatif et le vieillissement cellulaire.

Conclusions

Le parcours abordé dans ce chapitre nous a permis de comprendre que la mélatonine est bien plus que l'hormone du sommeil. Produite principalement par la glande pinéale, mais aussi par de nombreux tissus périphériques, cette molécule participe à la régulation des rythmes circadiens et à la protection cellulaire. Les recherches décrivent ses propriétés antioxydantes, anti-inflammatoires et immunomodulatrices. La mélatonine contribue également à préserver la fonctionnalité des mitochondries, en soutenant la production énergétique et en limitant les dommages provoqués par le stress oxydatif. Ces activités montrent comment une molécule associée au repos peut, au contraire, influencer de nombreux processus fondamentaux pour la santé.

Nous avons donc approfondi son rôle dans la régulation du sommeil. Les études cliniques montrent des bénéfices sur la qualité du repos et sur le temps nécessaire pour s'endormir, bien que les effets varient selon les conditions individuelles. Des résultats favorables ont été observés chez les adultes souffrant de troubles du sommeil, les patients atteints de la maladie de Parkinson, les enfants présentant des troubles du neurodéveloppement et dans certaines conditions hospitalières. La mélatonine n'agit donc pas simplement en provoquant la somnolence, mais contribue à synchroniser les mécanismes biologiques qui régulent le passage de l'éveil au repos.

Pour comprendre ce processus, nous avons examiné le récepteur MT1, par lequel la mélatonine transmet une partie de ses signaux aux cellules nerveuses. Les recherches expérimentales indiquent que MT1 contribue à l'organisation du sommeil paradoxal (REM), à la stabilité de ses phases et à la régulation des rythmes circadiens. Un rôle particulièrement important émerge dans le locus coeruleus, une région cérébrale qui produit de la noradrénaline, essentielle pour maintenir l'attention et la vigilance. Pendant l'éveil, ce système est actif, tandis que durant le sommeil paradoxal, son activité diminue drastiquement. L'activation de MT1 peut favoriser cette réduction, facilitant ainsi l'entrée dans le sommeil paradoxal.

Mais le locus coeruleus n'agit pas isolément. Son activité est également soutenue par l'orexine, une molécule produite par les neurones de l'hypothalamus latéral. Lorsque le taux d'orexine augmente, elle stimule la libération de noradrénaline et favorise le maintien de l'éveil. Ce lien permet de comprendre la relation entre deux systèmes aux fonctions opposées. D'une part, la mélatonine contribue à réduire l'activité des circuits de la vigilance ; d'autre part, l'orexine les maintient actifs. Des études expérimentales suggèrent en outre que la mélatonine peut agir directement sur les neurones orexinergiques par l'intermédiaire de MT1, favorisant ainsi le sommeil non-REM.

Le rôle de MT1, toutefois, ne se limite pas au cerveau. Les recherches documentent sa présence dans l'intestin, le pancréas, les vaisseaux sanguins, les cellules immunitaires et de nombreux autres tissus. Cette distribution lie la mélatonine à la régulation du métabolisme glucidique, de la sécrétion insulinique, du tonus vasculaire et des réponses inflammatoires. Le signal circadien peut donc influencer des fonctions qui impliquent l'organisme tout entier.

De cette vision systémique émerge un mécanisme supplémentaire par lequel la mélatonine contribue à la protection cellulaire : l'autophagie. Ce processus permet aux cellules d'éliminer et de recycler les composants endommagés, maintenant ainsi leur fonctionnement efficace. La mélatonine peut en réguler l'activité, favorisant également l'élimination des mitochondries compromises par le biais de la mitophagie. Les études expérimentales ont mis en évidence des effets protecteurs dans différents tissus, tandis que certains modèles tumoraux montrent comment l'autophagie peut contribuer à la mort des cellules néoplasiques.

Mais par quels mécanismes la mélatonine parvient-elle à contrôler ce système de recyclage cellulaire ? La réponse implique principalement l'AMPK et mTORC1, deux protéines qui régulent l'équilibre énergétique et l'autophagie. L'AMPK favorise l'économie d'énergie et la récupération des ressources, tandis que mTORC1 soutient la croissance et la synthèse cellulaire. Dans différents modèles expérimentaux, la mélatonine favorise l'activation de l'AMPK et la réduction de l'activité de mTORC1. Cet équilibre permet de moduler l'autophagie selon les besoins cellulaires, contribuant à la protection des tissus et au maintien de la fonctionnalité mitochondriale.

Émerge ainsi le principe central du chapitre : la mélatonine relie la régulation du sommeil aux mécanismes qui maintiennent l'équilibre énergétique et cellulaire. Ses applications thérapeutiques potentielles restent l'objet de recherches, mais son rôle physiologique apparaît bien plus vaste que la simple induction du sommeil.

Références

[1] Comprehensive review of melatonin as a promising nutritional and nutraceutical supplement

Kamfar et al., 2024

Heliyon. 2024;10(2):e24266.

[2] Melatonin: beyond circadian regulation— exploring its diverse physiological roles and therapeutic potential

Jia et al., 2025

Sleep Medicine Reviews. 2025;82:102123.

[3] Melatonin, Brain Aging and Neuroprotection: New Evidence on the Role of a Potent Anti-Aging Modulator

Bocheva et al., 2024

International Journal of Molecular Sciences. 2024;25(10):5122.

[4] Melatonin and Mitochondrial Neuroprotection: New Therapeutic Perspectives in Neurodegenerative Diseases

Bao et al., 2026

Biology (Basel). 2026;15(2):189.

[5] Dual Sources of Melatonin and Evidence Supporting Distinct Primary Functions

Reiter et al., 2024

Frontiers in Endocrinology. 2024;15:1414463.

[6] Melatonin Supplementation: New Perspectives on Health and Disease

Minari e Pisani, 2025

Sleep and Breathing. 2025;29(2):169.

[7] The Effects of Melatonin Supplementation on Sleep Quality: A Systematic Review and Meta-Analysis of Randomized Controlled Trials

Fatemeh et al., 2022

Journal of Neurology. 2022;269(1):205-216.

[8] Effect of Melatonin on Insomnia and Daytime Sleepiness in Patients with Obstructive Sleep Apnea and Insomnia (COMISA): A Randomized Double-Blind Placebo-Controlled Trial

Motlaq et al., 2024

Journal of Pharmaceutical Health Care and Sciences. 2024;10(1):25.

[9] The Effect of Melatonin on Sleep Quality and Daytime Sleepiness in Parkinson's Disease: A Systematic Review and Meta-Analysis of Placebo-Controlled Randomized Trials

Zrineh et al., 2025

Sleep Medicine. 2025;131:106540.

[10] Use of Melatonin in Children with Neurodevelopmental Disorders and Impaired Sleep (MENDS): A Randomised, Double-Blind, Placebo-Controlled Parallel Study

Appleton et al., 2012

Health Technology Assessment. 2012;16(40):i-239.

[11] Improving Sleep Quality and Quantity in Hospitalized Patients with Melatonin: A Quality Improvement Project at HCA Oak Hill Hospital

Ren et al., 2025

Cureus. 2025;17(12):e100510.

[12] Sleep Well. Untangling the Role of Melatonin MT1 and MT2 Receptors in Sleep

Gobbi e Comai, 2019

Journal of Pineal Research. 2019;66(3):e12544.

[13] Differential Function of Melatonin MT1 and MT2 Receptors in REM and NREM Sleep

Gobbi e Comai, 2019

Frontiers in Endocrinology. 2019;10:87.

[14] Characterization of the Sleep-Wake Cycle in MT1/MT2 Double Knockout Mice and Comparison with MT1 and MT2 Receptor Knockout Mice

Comai et al., 2013

Behavioural Brain Research. 2013;243:231-238.

[15] Melatonin, Melatonin Receptors and Sleep: Beyond Traditional Views

Comai e Gobbi, 2024

Journal of Pineal Research. 2024;76(7):e13011.

[16] Exogenous Melatonin Neuroprotective Effect on Noradrenergic Neurons of the Locus Coeruleus Following REM Sleep Deprivation in Adult Male Rats

Jameie et al., 2019

Journal of Chemical Neuroanatomy. 2019;100:101656.

[17] Importance of the Locus Coeruleus-Norepinephrine System in Sleep-Wake Regulation: Implications for Aging and Alzheimer's Disease

Van Egroo et al., 2022

Sleep Medicine Reviews. 2022;62:101592.

[18] Chronic Sleep Restriction Causes Enduring Sleep-Wake Disturbances and Degeneration of Locus Coeruleus and Orexinergic Neurons

Zhu et al., 2016

Sleep. 2016;39(8):1601-1611.

[19] Selective Enhancement of REM Sleep in Male Rats by Melatonin MT1 Receptor Activation in Locus Coeruleus Noradrenergic Neurons

López-Canul et al., 2024

Journal of Neuroscience. 2024;44(29):e0914232024.

[20] When the Locus Coeruleus Wakes Up During Sleep: Recent Insights and Emerging Perspectives

Osorio-Forero et al., 2022

International Journal of Molecular Sciences. 2022;23(9):5028.

[21] Hypocretin (orexin) activation and synaptic innervation of the locus coeruleus noradrenergic system

Horvath et al., 1999

Journal of Comparative Neurology. 1999;415(2):145-159. <145::AID-CNE1>3.0.CO;2-2.

[22] Orexin A Activates Locus Coeruleus Cell Firing and Increases Arousal in the Rat

Hagan et al., 1999

Proceedings of the National Academy of Sciences of the United States of America. 1999;96(19):10911-10916.

[23] Hypocretin-1 Modulates Rapid Eye Movement Sleep Through Activation of the Locus Coeruleus Neurons

Bourgin et al., 2000

Journal of Neuroscience. 2000;20(20):7760-7765.

[24] The Neural Circuit of Orexin (Hypocretin): Maintaining Sleep and Wakefulness

Sakurai, 2007

Nature Reviews Neuroscience. 2007; 8(3):171-181.

[25] Orexin Neurons Suppress Narcolepsy via 2 Distinct Effector Pathways

Hasegawa et al., 2014

Journal of Clinical Investigation. 2014;124(2):604-616.

[26] Melatonin Inhibits Orexin Neurons in the Perifornical Lateral Hypothalamus and Promotes Non-Rapid Eye Movement Sleep in Mice

Sharma et al., 2018

Journal of Pineal Research. 2018;65(2):e12498.

[27] The Role of Orexin Neuronal Activity in Sleep-Wake Regulation

Hung e Yamanaka, 2023

Peptides. 2023;165:171007.

[28] Effectiveness of a Melatonin Receptor Agonist and Orexin Receptor Antagonists in Preventing Delirium Symptoms in Elderly Patients With Stroke: A Retrospective Study

Miyoshi et al., 2024

Journal of Pharmaceutical Health Care and Sciences. 2024;10(1):74.

[29] Update on Melatonin Receptors: IUPHAR Review 20

Jockers et al., 2016

British Journal of Pharmacology. 2016;173(18):2702-2725.

[30] Human Gastroenteropancreatic Expression of Melatonin and its MT1 and MT2 Receptors

Söderquist et al., 2015

PLoS One. 2015;10(3):e0120195.

[31] Melatonin Membrane Receptors in Peripheral Tissues: Distribution and Functions

Slominski et al., 2012

Molecular and Cellular Endocrinology. 2012;351(2):152-166.

[32] Melatonin Membrane Receptors in the Vascular System: Function, Modulation and Clinical Relevance

da Rocha-Carvalho et al., 2025

Journal of Pineal Research. 2025;77(6):e70090.

[33] Cellular Signaling of Melatonin and its Role in Metabolic Disorders

Tripathy e Bhattamisra, 2025

Molecular Biology Reports. 2025;52(1):193.

[34] Role of Melatonin in the Regulation of Autophagy and Mitophagy: A Review

Coto-Montes et al., 2012

Molecular and Cellular Endocrinology. 2012;361(1-2):12-23.

[35] Potential Therapeutic Actions of Melatonin in the Regulation of Autophagy: A Review

Boga et al., 2019

Journal of Pineal Research. 2019;66(1):e12534.

[36] Melatonin Prevents Chronic Intermittent Hypoxia-Induced Injury by Inducing Sirtuin 1-Mediated Autophagy in Steatotic Liver of Mice

Ren et al., 2019

Sleep and Breathing. 2019;23(3):825-836.

[37] Melatonin Induces Autophagy via Reactive Oxygen Species-Mediated Endoplasmic Reticulum Stress Pathway in Colorectal Cancer Cells

Chok et al., 2021

Molecules. 2021;26(16):5038.

[38] Potential Influence of Melatonin on Mitochondrial Quality Control: A Review

Lei et al., 2024

Frontiers in Pharmacology. 2024;14:1332567.

[39] Modulation of Autophagy by Melatonin and Its Receptors: Implications in Brain Disorders

Zhu et al., 2025

Acta Pharmacologica Sinica. 2025;46(3):525-538.

[40] Melatonin Induces Autophagy in Neuroblastoma by Alleviating Pak2-Mediated Endoplasmic Reticulum Stress

Qiu et al., 2026

Molecular Medicine Reports. 2026;33(2):74.

[41] Melatonin Improves Osteogenic Differentiation in a High-Glucose Environment by Activating NRF2 to Promote Autophagy Through Regulation of Macrophage–BMSC Crosstalk

Zhang et al., 2026

Inflammation Research. 2026;75(1):112.

[42] Exercise as a Metabolic Regulator: Targeting AMPK/mTOR-Autophagy Crosstalk in Sarcopenic Obesity

Zhang et al., 2026

Aging and Disease. 2026;17(4):1904–1915.

[43] New Developments in the Interplay Between AMPK and mTORC1

Smiles et al., 2024

Essays in Biochemistry. 2024;68(3):321-336.

[44] Contrasting Views on the Role of AMPK in Autophagy

Kim, 2024

BioEssays. 2024;46(3):e2300211.

[45] AMPK and Autophagy: The Dual Nature of an Energy Sensor in the Regulation of Cellular Survival

Mandic et al., 2025

American Journal of Physiology - Cell Physiology. 2025;329(5):C1380-C1397.

[46] Targeting the AMPK/mTOR Signaling Pathway in Atherosclerosis Management: The Ultimate Leverage

Al-Kuraishy et al., 2025

International Journal of Biological Macromolecules. 2025;309(Pt 2):142933.

[47] Melatonin Attenuates Vascular Calcification by Activating Autophagy via an AMPK/mTOR/ULK1 Signaling Pathway

Chen et al., 2020

Experimental Cell Research. 2020;389(1):111883.

[48] Melatonin Promotes Progesterone Secretion in Sheep Luteal Cells by Regulating Autophagy Through the AMPK/mTOR Pathway

Duan et al., 2024

Theriogenology. 2024;214:342-351.

[49] Melatonin Protects Rabbit Sperm During Cryopreservation by Reducing Oxidative Stress Through AMPK Activation

Zhu et al., 2019

Cryobiology. 2019;88:1-8.

[50] Melatonin Regulates Ovarian Activity and Delays Fertility Decline Through the MT1/AMPK Signaling Pathway

Zhang et al., 2019

Journal of Pineal Research. 2019;66(3):e12550.

[51] Melatonin Suppresses Milk Fat Synthesis Through MT1-Mediated Inhibition of mTOR Signaling in Bovine Mammary Epithelial Cells

Wang et al., 2019

Journal of Pineal Research. 2019;67(3):e12593.