
Scientific Book

Melatonina y coordinación de los ritmos biológicos

La melatonina es una hormona producida principalmente por la glándula pineal, fundamental en la regulación de los ritmos circadianos y del ciclo sueño-vigilia. Además de su función cronobiológica, la investigación estudia sus propiedades antioxidantes y las posibles interacciones con los procesos inflamatorios, el metabolismo energético y la función mitocondrial. En el libro «La scelta di Vivere in Salute o in Malattia», el Dr. A. Colonnese y R. Panzironi profundizan en estos mecanismos, distinguiendo las funciones consolidadas de las aplicaciones que aún son objeto de investigación.

Citar este artículo
Colonnese, A. & Panzironi, R. (2026). Melatonina y coordinación de los ritmos biológicos. La elección de vivir en salud o en enfermedad. https://lifesciencehub.info/es/la-scelta-di-vivere-in-salute-o-in-malattia/melatonina-y-coordinacion-de-los-ritmos-biologicos
La elección de vivir en salud o en enfermedad · ISBN 979-12-82692-05-2

DOI lsh.es.libro.28

  • Publicación 05/11/2026
  • Actualización 05/11/2026
  • MELATONINA
  • RECEPTOR MT1
  • RITMOS CIRCADIANOS
  • OREXINA
  • LOCUS COERULEUS
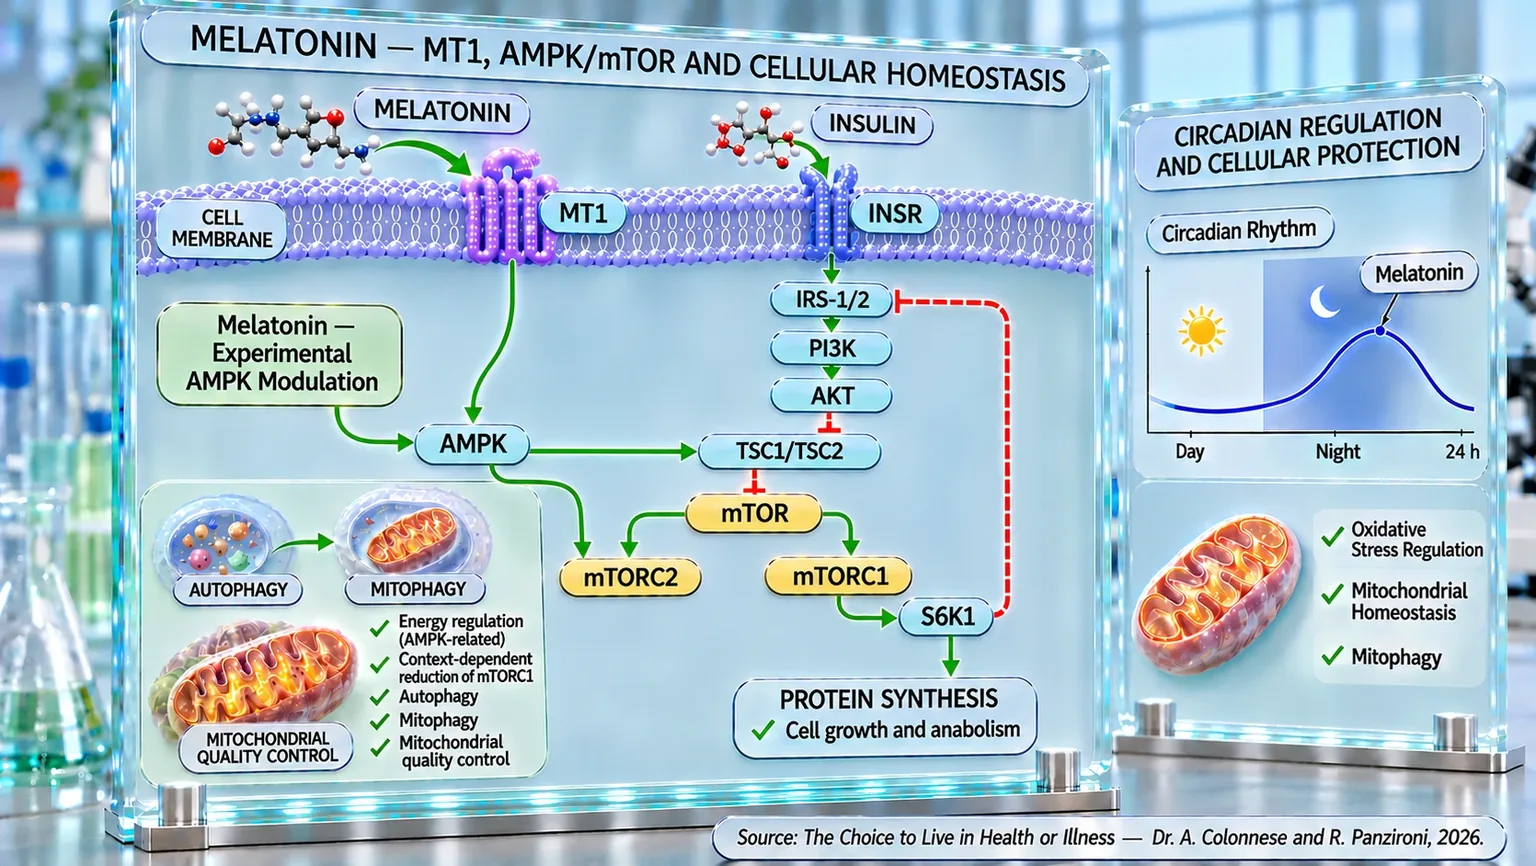
Infografía molecular con membrana celular, receptores MT1 e INSR, cascada AMPK-mTOR y gráfico circadiano de la melatonina.
Esquema de las conexiones entre melatonina, receptor MT1, AMPK y vía insulínica INSR–IRS-1/2–PI3K–AKT, con regulación de TSC1/TSC2, mTORC1/2, S6K1, síntesis proteica, autofagia y mitofagia. El recuadro adjunto indica el pico nocturno de la melatonina y asocia el ritmo circadiano con la homeostasis mitocondrial, el control del estrés oxidativo y la protección celular.

ABSTRACT

La melatonina, sintetizada principalmente por la glándula pineal y también por tejidos periféricos, coordina los ritmos circadianos y los procesos de protección celular. En el libro "La scelta di Vivere in Salute o in Malattia", el Dr. A. Colonnese y R. Panzironi profundizan en sus funciones en la regulación del sueño, la inmunomodulación y la homeostasis energética. Sus propiedades antioxidantes y antiinflamatorias, junto con el apoyo a la función mitocondrial, sugieren un papel fisiológico más amplio que la simple facilitación del inicio del sueño.

La señalización a través del receptor MT1 contribuye a la sincronización circadiana y, según estudios experimentales, a la organización de las fases del sueño. En el locus coeruleus, la activación de MT1 puede reducir la actividad noradrenérgica, normalmente elevada durante la vigilia y fuertemente atenuada en el sueño REM. La orexina, producida en el hipotálamo lateral, sostiene, por el contrario, la vigilancia y la liberación de noradrenalina. Observaciones experimentales adicionales sugieren que la melatonina puede modular directamente las neuronas orexinérgicas, favoreciendo el sueño no REM. La presencia de MT1 también en el páncreas, el intestino, los vasos sanguíneos y las células inmunitarias vincula estas señales con funciones metabólicas e inflamatorias periféricas.

Los estudios clínicos reportan mejoras en la calidad del sueño y en la latencia de inicio del sueño, con resultados variables en adultos con trastornos del descanso, pacientes con Parkinson, niños con trastornos del neurodesarrollo y en entornos hospitalarios. Paralelamente, los estudios preclínicos describen efectos en la protección mitocondrial y en la regulación de la autofagia, incluida la mitofagia. En diversos modelos, la melatonina favorece la activación de AMPK y limita mTORC1, modulando el reciclaje de los componentes celulares; algunos modelos tumorales sugieren además una implicación de la autofagia en la muerte neoplásica.

En conjunto, la melatonina integra circuitos de vigilancia, señales circadianas y mecanismos de mantenimiento celular. Sin embargo, las evidencias sobre el sueño no autorizan a trasladar automáticamente al ser humano los resultados moleculares experimentales. La investigación deberá aclarar en qué condiciones la modulación de MT1, AMPK y mTORC1 puede traducirse en beneficios clínicos documentables, más allá de los efectos ya observados en el descanso nocturno.

Sus propiedades

La melatonina es una molécula que durante muchos años fue considerada casi exclusivamente la hormona del sueño. Esta definición, aunque correcta, resulta hoy profundamente reduccionista. Las investigaciones de las últimas décadas han demostrado, de hecho, que la melatonina representa una de las moléculas más versátiles del organismo humano, involucrada en una vasta red de procesos biológicos que van desde la regulación de los ritmos circadianos hasta la protección celular, desde el control de la inflamación hasta el mantenimiento del equilibrio energético, e incluso la salvaguardia de la integridad del sistema nervioso y de las mitocondrias (Kamfar et al., 2024) [1].

Desde el punto de vista químico, la melatonina es una indolamina, un aminoácido derivado del triptófano a través de una serie de reacciones que involucran a la serotonina como precursor intermedio. Aunque la glándula pineal representa el principal órgano responsable de su secreción sistémica, hoy sabemos que su síntesis no se limita al cerebro. Numerosos tejidos, entre ellos el tracto gastrointestinal, la retina, el sistema inmunitario, la médula ósea y otros distritos periféricos, son capaces de producir melatonina localmente, lo que sugiere que esta molécula desempeña funciones mucho más amplias que la simple sincronización del ciclo sueño-vigilia (Jia et al., 2025) [2].

Para comprender la importancia de la melatonina, se puede imaginar el organismo como una gran ciudad que debe mantener constantemente el orden, la comunicación y la capacidad de adaptación. En esta analogía, la melatonina no representa solo el reloj que señala la llegada de la noche, sino también un equipo de mantenimiento altamente especializado que protege las infraestructuras celulares, coordina las respuestas de emergencia y limita los daños provocados por el desgaste diario.

Una de las propiedades más estudiadas de la melatonina se refiere a su actividad antioxidante. Durante el metabolismo celular normal se producen continuamente moléculas altamente reactivas, conocidas como especies reactivas del oxígeno (ROS) y especies reactivas del nitrógeno (RNS). En cantidades fisiológicas, estas sustancias cumplen importantes funciones de señalización; sin embargo, cuando su producción supera la capacidad de defensa del organismo, pueden dañar proteínas, lípidos, membranas celulares y ADN. La melatonina posee la extraordinaria capacidad de contrarrestar este fenómeno a través de múltiples mecanismos simultáneos. Neutraliza directamente numerosos radicales libres y, al mismo tiempo, estimula la actividad de los principales sistemas antioxidantes endógenos, entre ellos la superóxido dismutasa, la catalasa y la glutatión peroxidasa (Kamfar et al., 2024) [1]; (Bocheva et al., 2024) [3]; (Jia et al., 2025) [2].

Lo que hace que la melatonina sea particularmente eficaz en comparación con otros antioxidantes es el hecho de que su actividad no termina después de la neutralización de una sola especie reactiva. Durante el proceso de detoxificación se generan metabolitos biológicamente activos, como el AFMK (una sustancia producida por la degradación de la melatonina) y el AMK, que mantienen a su vez propiedades antioxidantes. Se crea así una verdadera cascada protectora capaz de amplificar y prolongar los efectos de la molécula original (Bocheva et al., 2024) [3].

Otra característica fundamental es su elevada lipofilia (la capacidad de una sustancia para disolverse en las grasas). Gracias a esta propiedad, la melatonina atraviesa fácilmente las membranas celulares, alcanzando compartimentos normalmente difíciles de proteger, como el núcleo y, sobre todo, las mitocondrias. Esta capacidad es particularmente importante porque las mitocondrias representan el principal sitio de producción de radicales libres dentro de la célula. La presencia de melatonina en proximidad a la fuente misma del estrés oxidativo permite una intervención rápida y eficaz, limitando el daño antes de que pueda propagarse (Kamfar et al., 2024) [1]; (Bao et al., 2026) [4]; (Reiter et al., 2024) [5].

En los últimos años ha surgido una visión aún más fascinante de la fisiología de la melatonina. Durante mucho tiempo se creyó que la glándula pineal era la principal fuente de la molécula. Hoy, sin embargo, numerosas evidencias sugieren que la mayor parte de la melatonina producida en el organismo puede derivar de síntesis locales dentro de los tejidos periféricos y, probablemente, directamente en las mitocondrias. Según este modelo, la melatonina pineal actuaría principalmente como una señal endocrina destinada a la sincronización temporal del organismo, mientras que la melatonina intracelular desempeñaría sobre todo funciones metabólicas, antioxidantes y citoprotectoras (Reiter et al., 2024) [5].

La importancia biológica de esta molécula aparece aún más evidente al observar su historia evolutiva. Los análisis filogenéticos sugieren que la capacidad de sintetizar melatonina apareció mucho antes de la evolución de los organismos complejos, probablemente en los procariotas primitivos que poblaban la Tierra hace miles de millones de años. En un entorno caracterizado por crecientes concentraciones de oxígeno y una consecuente producción de especies reactivas, la melatonina habría representado una herramienta fundamental de defensa. Esta función antioxidante parece, por tanto, preceder con mucho al papel circadiano que hoy se asocia comúnmente a la hormona (Reiter et al., 2024) [5].

Junto a la actividad antioxidante, la melatonina posee relevantes propiedades antiinflamatorias. La inflamación es un mecanismo esencial para la supervivencia del organismo, pero cuando se vuelve crónica puede contribuir al desarrollo de numerosas patologías. La melatonina interviene modulando diversos nodos centrales de la respuesta inflamatoria. Entre ellos, reviste particular importancia el factor de transcripción NF-κB, considerado uno de los principales reguladores de la expresión de genes proinflamatorios. A través de la inhibición de esta vía de señalización, la melatonina reduce la producción de mediadores como TNF-α, IL-1β e IL-6, contribuyendo a limitar la amplificación de la respuesta inflamatoria (Kamfar et al., 2024) [1]; (Jia et al., 2025) [2]; (Bocheva et al., 2024) [3].

Sus acciones no se limitan, sin embargo, a la inflamación sistémica. Diversos estudios han destacado la capacidad de la melatonina para modular la actividad de las células inmunitarias, influyendo en la producción de citoquinas y contribuyendo al mantenimiento del equilibrio entre la activación inmunitaria y la tolerancia. Se han identificado receptores específicos para la melatonina en leucocitos, linfocitos, células de la médula ósea y numerosas otras poblaciones inmunitarias, confirmando el papel de la molécula como un importante regulador de la función inmunitaria (Kamfar et al., 2024) [1].

Particularmente interesante es el llamado eje inmunitario-pineal. En presencia de un proceso inflamatorio, la producción pineal de melatonina tiende a reducirse, mientras que simultáneamente aumenta la síntesis local por parte de macrófagos y otras células inmunitarias presentes en el sitio de la inflamación. Este mecanismo permite concentrar la producción de la molécula exactamente donde es más necesaria, favoreciendo la resolución del proceso inflamatorio y la protección de los tejidos involucrados (Reiter et al., 2024) [5].

Las propiedades citoprotectoras de la melatonina se extienden además al mantenimiento de la funcionalidad mitocondrial. Además de neutralizar los radicales libres, la molécula contribuye a preservar el potencial de membrana mitocondrial, mejora la producción de ATP, regula los procesos de fusión y fisión mitocondrial y participa en el control de la mitofagia, el sistema a través del cual la célula elimina las mitocondrias dañadas. Gracias a estas acciones, la melatonina contribuye a mantener eficiente la central energética celular, reduciendo el riesgo de acumulación de daños metabólicos con el tiempo (Bao et al., 2026) [4]; (Bocheva et al., 2024) [3]; (Jia et al., 2025) [2].

El conjunto de estas características ha llevado a los investigadores a considerar la melatonina una molécula pleiotrópica, es decir, capaz de influir simultáneamente en numerosos sistemas biológicos. Sus acciones involucran la regulación de los ritmos circadianos, el control del estrés oxidativo, la modulación de la inflamación, el mantenimiento de la homeostasis energética, la protección del sistema nervioso y la regulación de la respuesta inmunitaria. En otras palabras, la melatonina no actúa como una simple hormona especializada en una sola función, sino como un coordinador biológico capaz de conectar entre sí procesos aparentemente distantes, contribuyendo al mantenimiento del equilibrio de todo el organismo (Minari y Pisani, 2025) [6].

La melatonina y el sueño

De todas las funciones atribuidas a la melatonina, la relacionada con el sueño es sin duda la más conocida. Sin embargo, definir la melatonina simplemente como una hormona que favorece el inicio del sueño sería reduccionista. De hecho, la evidencia científica muestra que esta molécula desempeña un papel mucho más complejo, contribuyendo a la regulación de toda la arquitectura del sueño y a la sincronización de los ritmos biológicos que gobiernan la alternancia entre la vigilia y el descanso.

Para comprender su función, es útil imaginar el sueño como una orquesta compuesta por numerosos músicos. Cada instrumento representa un sistema fisiológico diferente: el cerebro, el metabolismo, el sistema endocrino, el sistema inmunitario y el sistema nervioso autónomo. La melatonina no produce la música directamente, sino que actúa como el director de orquesta que coordina el momento exacto en el que cada sección debe entrar en acción. Cuando esta coordinación falla, el sueño tiende a volverse más fragmentado, menos eficiente y menos regenerador.

Las pruebas clínicas recopiladas en los últimos años confirman esta interpretación de manera cada vez más convincente. Una amplia revisión sistemática con metaanálisis que incluyó veintitrés ensayos clínicos aleatorizados controlados demostró que la suplementación con melatonina mejora significativamente la calidad global del sueño en adultos. Los beneficios se han observado en numerosas condiciones clínicas, con efectos particularmente evidentes en sujetos que padecen enfermedades respiratorias, trastornos metabólicos y trastornos primarios del sueño. El análisis también mostró una reducción significativa en las puntuaciones del Índice de Calidad de Sueño de Pittsburgh, lo que indica una mejora clínicamente relevante de la calidad percibida del descanso nocturno. Uno de los aspectos más interesantes que surgieron de este metaanálisis es que la mejora no afecta a un solo parámetro del sueño. De hecho, la melatonina parece actuar simultáneamente sobre múltiples dimensiones del descanso nocturno, favoreciendo un inicio del sueño más rápido, una mejor continuidad del sueño y una reducción de la fragmentación nocturna. Esto sugiere que su papel no se limita a la inducción del sueño, sino que involucra toda la organización temporal del descanso (Fatemeh et al., 2022) [7].

Una confirmación particularmente interesante proviene de los pacientes que padecen COMISA, una condición caracterizada por la coexistencia de insomnio crónico y apnea obstructiva del sueño. Esta asociación es muy frecuente en la práctica clínica y representa una de las formas más complejas de trastorno del sueño. Los continuos microdespertares provocados por los episodios de apnea alteran profundamente la calidad del descanso, mientras que el insomnio contribuye a su vez a empeorar la estabilidad del sueño. En un ensayo aleatorizado controlado con placebo, la administración de 10 mg de melatonina durante cuatro semanas determinó una marcada mejora en la calidad del sueño, una reducción significativa de la gravedad del insomnio y una disminución de la somnolencia diurna. Los pacientes también mostraron una mejor adherencia a la terapia CPAP, un elemento particularmente importante para el control de las apneas nocturnas (Motlaq et al., 2024) [8].

Estos resultados son especialmente relevantes porque demuestran que la melatonina no actúa exclusivamente durante la noche. Al mejorar la calidad del sueño, produce efectos positivos también durante el día, reduciendo el cansancio, mejorando la vigilancia y favoreciendo una mejor funcionalidad en las actividades cotidianas. En otras palabras, el beneficio no se refiere solo a dormir mejor, sino también a vivir mejor durante las horas de vigilia.

Otra población en la que la melatonina ha despertado gran interés es la de los pacientes con enfermedad de Parkinson. Los trastornos del sueño representan una de las manifestaciones no motoras más frecuentes de la enfermedad y pueden aparecer muchos años antes de las alteraciones motoras típicas. Un metaanálisis reciente que incluyó ensayos aleatorizados controlados destacó que la melatonina mejora significativamente la calidad del sueño y reduce la somnolencia diurna en sujetos con Parkinson. Los mejores resultados se observaron con dosis superiores a 4 mg, con formulaciones de liberación inmediata y con tratamientos de duración relativamente breve. Los datos sugieren, además, que la respuesta terapéutica puede depender tanto de la dosis utilizada como de las características farmacocinéticas de la formulación empleada (Zrineh et al., 2025) [9].

La evidencia a favor de la melatonina no se limita a la población adulta. En niños con trastornos del neurodesarrollo, incluyendo autismo, discapacidades intelectuales y otras condiciones neurológicas, los problemas para conciliar el sueño representan una de las principales causas de estrés para el niño y para todo el núcleo familiar. El estudio MENDS, uno de los ensayos aleatorizados controlados más amplios realizados en el ámbito pediátrico, demostró que la melatonina de liberación inmediata reduce significativamente el tiempo necesario para conciliar el sueño. En promedio, los niños tratados se dormían unos cuarenta y cinco minutos antes en comparación con los sujetos que recibían placebo. El aumento de la duración total del sueño resultó más modesto, lo que sugiere que el efecto principal de la melatonina está ligado sobre todo al inicio del sueño más que a su prolongación (Appleton et al., 2012) [10].

Esta observación es particularmente importante porque ayuda a comprender la verdadera naturaleza fisiológica de la melatonina. A diferencia de los fármacos hipnóticos tradicionales, que tienden a forzar al organismo hacia un estado de sedación, la melatonina parece facilitar el inicio correcto de los procesos biológicos que conducen naturalmente al sueño. Una vez iniciado este proceso, el mantenimiento y la profundidad del descanso dependen de otros numerosos sistemas neurobiológicos.

Se han observado beneficios análogos también en el ámbito hospitalario. El ingreso hospitalario representa, de hecho, una condición particularmente desfavorable para el sueño debido a ruidos, procedimientos asistenciales, dolor, estrés psicológico y alteraciones de los ritmos circadianos normales. Un estudio realizado en pacientes hospitalizados destacó que la administración nocturna de melatonina mejora significativamente la duración del sueño, reduce el tiempo necesario para conciliar el sueño, disminuye el número de despertares nocturnos y aumenta la calidad subjetiva del descanso. Tales resultados adquieren particular relevancia si se considera que el sueño representa una de las principales herramientas a través de las cuales el organismo sostiene los procesos de recuperación y curación durante la enfermedad (Ren et al., 2025) [11].

Considerando en su conjunto la evidencia disponible, surge un panorama extremadamente coherente. La melatonina no debe considerarse simplemente una sustancia que induce el sueño, sino un regulador biológico capaz de coordinar múltiples aspectos del descanso nocturno. Sus efectos se observan en poblaciones muy diversas entre sí: sujetos con insomnio, pacientes con apnea obstructiva del sueño, personas con enfermedad de Parkinson, niños con trastornos del neurodesarrollo y pacientes hospitalizados, lo que sugiere la existencia de un mecanismo fisiológico común. En todos estos contextos, la melatonina parece favorecer una mejor sincronización de los procesos que gobiernan el paso de la vigilia al sueño, contribuyendo a hacer que el descanso sea más estable, más eficiente y más regenerador.

Los receptores MT1

Comprender la fisiología de la melatonina significa comprender también los mecanismos a través de los cuales esta molécula se comunica con las células. Como cualquier hormona o molécula señalizadora, de hecho, la melatonina no actúa sola. Para ejercer sus efectos, debe ser reconocida por estructuras celulares específicas capaces de interpretar su mensaje y traducirlo en una respuesta biológica. Estas estructuras son los receptores de melatonina, identificados principalmente en los subtipos MT1 y MT2.

Durante muchos años se creyó que ambos receptores desempeñaban funciones sustancialmente superponibles. Sin embargo, las investigaciones más recientes han revelado una realidad mucho más compleja. Aunque MT1 y MT2 son activados por la misma molécula, parecen participar en procesos diferentes y, en algunos casos, incluso opuestos. Este descubrimiento ha modificado profundamente la comprensión de la neurobiología del sueño y ha abierto nuevas perspectivas terapéuticas para el tratamiento de los trastornos del ritmo sueño-vigilia (Gobbi y Comai, 2019) [12]; (Gobbi y Comai, 2019) [13]; (Comai y Gobbi, 2024) [15].

El receptor MT1 pertenece a la familia de los receptores acoplados a proteínas G (proteínas que transmiten señales dentro de las células) y se expresa en numerosas áreas cerebrales involucradas en la regulación del sueño y de los ritmos circadianos. Su presencia ha sido documentada en el núcleo supraquiasmático (una pequeña área del cerebro, situada en el hipotálamo), el principal reloj biológico del organismo, pero también en el hipotálamo lateral, en el puente, en la amígdala y en el hipocampo. Esta distribución anatómica sugiere que MT1 no solo está involucrado en la recepción de la señal melatoninérgica, sino que participa directamente en la organización neurobiológica del sueño (Comai y Gobbi, 2024) [15].

Para comprender el papel de este receptor, se puede imaginar la melatonina como una comunicación enviada cada noche por el reloj biológico central. El receptor MT1 representa uno de los principales destinatarios de este mensaje. Cuando se activa, se desencadena una serie de modificaciones celulares y neuronales que preparan progresivamente al cerebro para la transición de la vigilia al sueño.

Las primeras indicaciones sobre el papel específico de MT1 surgieron de estudios realizados en modelos animales genéticamente modificados. Mediante la eliminación selectiva del gen responsable de la producción del receptor, los investigadores pudieron observar qué consecuencias derivaban de su ausencia. Los resultados mostraron que los ratones privados del receptor MT1 presentan una reducción significativa del sueño REM, la fase del sueño asociada a la actividad onírica más intensa, a la consolidación de la memoria y a la regulación de las emociones (Comai et al., 2013) [14].

Esta observación se volvió aún más significativa cuando los investigadores analizaron la actividad eléctrica cerebral durante el sueño. En los animales privados de MT1 se documentó, de hecho, una reducción de las oscilaciones theta (ondas eléctricas rítmicas producidas por las neuronas del cerebro) durante el sueño REM. Las ondas theta representan una de las principales firmas neurofisiológicas de esta fase del sueño y participan en los procesos de consolidación mnemónica y reorganización de la información adquirida durante el día. Su reducción sugiere que MT1 influye no solo en la cantidad de sueño REM, sino también en la calidad funcional de esta fase (Comai et al., 2013) [14].

Las evidencias recopiladas posteriormente han reforzado progresivamente la hipótesis de que el receptor MT1 desempeña un papel fundamental en la estabilización del sueño REM. Diversas revisiones de la literatura han destacado cómo la activación de MT1 está asociada a la consolidación de las fases REM y a la modulación de los circuitos neuronales que regulan su aparición y mantenimiento a lo largo de la noche (Gobbi y Comai, 2019) [12]; (Gobbi y Comai, 2019) [13]; (Comai y Gobbi, 2024) [15].

Un aspecto adicional de gran interés se refiere a la relación entre MT1 y la regulación circadiana. Numerosas evidencias sugieren que este receptor participa en los mecanismos a través de los cuales el núcleo supraquiasmático sincroniza las funciones biológicas del organismo con el ciclo ambiental luz-oscuridad. En otras palabras, MT1 podría representar uno de los principales puntos de conexión entre la información temporal proveniente del entorno y la organización interna del sueño (Gobbi y Comai, 2019) [13]; (Comai y Gobbi, 2024) [15].

Las observaciones provenientes de los modelos knockout refuerzan aún más esta interpretación. Los animales privados de MT1 muestran, de hecho, no solo alteraciones del sueño REM, sino también una mayor fragmentación del sueño, una reducción de la continuidad del descanso y una menor estabilidad de la organización circadiana. Estos resultados sugieren que el receptor contribuye al mantenimiento de una estructura del sueño estable y fisiológicamente eficiente (Comai y Gobbi, 2024) [15].

Desde el punto de vista terapéutico, estos descubrimientos han abierto perspectivas particularmente interesantes. La mayoría de los preparados actualmente disponibles activan simultáneamente MT1 y MT2. Sin embargo, si los dos receptores desempeñan funciones diferentes, resulta plausible imaginar fármacos capaces de actuar selectivamente sobre uno solo de los dos objetivos. Bajo esta perspectiva, agonistas específicos de MT1 podrían resultar útiles en condiciones caracterizadas por alteraciones del sueño REM, fragmentación del sueño y dificultades en el inicio de los procesos fisiológicos que conducen al descanso nocturno (Gobbi y Comai, 2019) [12]; (Gobbi y Comai, 2019) [13]; (Comai y Gobbi, 2024) [15].

En conjunto, las evidencias disponibles definen al receptor MT1 como mucho más que un simple mediador de los efectos de la melatonina. Aparece como un sofisticado regulador neurobiológico que conecta la señal temporal de la noche con la organización de las fases del sueño, la estabilidad de la vigilancia y el control de los circuitos neuronales involucrados en el sueño REM. Esta visión moderna permite comprender cómo la melatonina no actúa simplemente induciendo el sueño, sino orquestando una compleja red de señales biológicas que preparan al cerebro y al organismo para el descanso nocturno.

El locus coeruleus y la noradrenalina

Para comprender plenamente cómo influye la melatonina en el sueño, es necesario profundizar en uno de los sistemas neurobiológicos más importantes involucrados en la regulación de la vigilancia: el sistema locus coeruleus–noradrenalina. Si la melatonina puede imaginarse como la señal que anuncia la llegada de la noche, el locus coeruleus representa uno de los principales centros cerebrales que deciden cuánto debe permanecer el cerebro alerta, atento y listo para reaccionar a los estímulos del entorno.

El locus coeruleus es un pequeño núcleo localizado en el tronco encefálico que, a pesar de sus dimensiones reducidas, ejerce una influencia extraordinariamente amplia sobre todo el sistema nervioso central. Sus neuronas producen noradrenalina, un neurotransmisor fundamental para la atención, la vigilancia, la memoria, la respuesta al estrés y el mantenimiento del estado de vigilia. En las últimas décadas ha surgido cómo el sistema locus coeruleus–noradrenalina constituye uno de los principales reguladores del ciclo sueño-vigilia, participando no solo en el mantenimiento de la vigilancia, sino también en la organización de las diferentes fases del sueño (Van Egroo et al., 2022) [17].

Los registros electrofisiológicos han demostrado que la actividad de las neuronas del locus coeruleus varía continuamente durante el día. Durante la vigilia activa, la frecuencia de descarga es elevada, permitiendo al cerebro mantener altos niveles de atención y reactividad. Con la proximidad del sueño, la actividad noradrenérgica disminuye progresivamente, alcanzando niveles aún más bajos durante el sueño no REM. La situación cambia radicalmente durante el sueño REM, cuando las neuronas del locus coeruleus se vuelven casi completamente silentes y los niveles extracelulares de noradrenalina se desploman a los valores más bajos observables en todo el ciclo sueño-vigilia (Van Egroo et al., 2022) [17].

Durante muchos años se creyó que el locus coeruleus estaba simplemente "apagado" durante el sueño. Sin embargo, las modernas tecnologías de monitorización de la noradrenalina han modificado profundamente esta visión. Hoy sabemos que durante el sueño no REM el sistema noradrenérgico continúa funcionando a través de oscilaciones rítmicas extremadamente precisas que contribuyen a la organización de la arquitectura del sueño. Los niveles de noradrenalina aumentan y disminuyen cíclicamente cada treinta a cincuenta segundos, sincronizándose con fenómenos fundamentales como los husos del sueño (breves ondas eléctricas producidas por el cerebro durante el sueño ligero), las oscilaciones corticales lentas y las variaciones de la frecuencia cardíaca. Este comportamiento sugiere que el locus coeruleus no es simplemente un centro de la vigilia, sino un sofisticado regulador de la calidad del sueño mismo (Osorio-Forero et al., 2022) [20].

Uno de los aspectos más interesantes se refiere al papel de la noradrenalina en la consolidación de la memoria. Durante el sueño no REM, las oscilaciones controladas del sistema noradrenérgico parecen favorecer la plasticidad sináptica y la transferencia de información desde el hipocampo a la corteza cerebral. Posteriormente, durante el sueño REM, la casi completa desaparición de la noradrenalina crea un entorno neuroquímico completamente diferente que favorece la reorganización de las conexiones neuronales y el procesamiento de la información emocional acumulada durante el día. Esta drástica reducción de la noradrenalina durante el sueño REM no representa un simple efecto secundario del sueño, sino una condición biológica necesaria para que el cerebro pueda entrar correctamente en esta fase. Las observaciones más recientes han mostrado, de hecho, que la caída de los niveles de noradrenalina comienza varios segundos antes del inicio de un episodio REM. En otras palabras, el silenciamiento del locus coeruleus parece representar uno de los eventos que preparan al cerebro para la entrada en el sueño REM (Osorio-Forero et al., 2022) [20].

En este contexto surge la conexión directa con la melatonina y con el receptor MT1 descrito en el párrafo anterior. Un estudio publicado en 2024 demostró que la activación selectiva de los receptores MT1 presentes en las neuronas noradrenérgicas del locus coeruleus reduce de forma dependiente de la dosis su actividad eléctrica. Dicha inhibición se traduce en un aumento significativo del sueño REM sin alterar el sueño no REM. Cuando los investigadores bloquearon farmacológicamente el receptor MT1 o silenciaron genéticamente su expresión en las neuronas del locus coeruleus, el efecto desapareció por completo. Este resultado proporcionó una de las pruebas más sólidas de que la melatonina puede modular directamente el sistema noradrenérgico a través del receptor MT1, facilitando la aparición del sueño REM (López-Canul et al., 2024) [19].

Este descubrimiento permite comprender mejor el papel de la melatonina en la fisiología del sueño. Más que actuar como un simple inductor del sueño, la melatonina parece intervenir en circuitos neuronales específicos que controlan el paso entre los diferentes estados de vigilancia. A través de la activación de los receptores MT1 presentes en el locus coeruleus, contribuye a reducir progresivamente la actividad noradrenérgica, creando las condiciones neuroquímicas necesarias para la entrada en el sueño REM (López-Canul et al., 2024) [19].

La importancia del locus coeruleus emerge con particular evidencia cuando el sueño se altera de forma crónica. Un estudio experimental que simuló una condición muy similar a la vivida por numerosas personas en la vida moderna —pocos días de sueño insuficiente seguidos de breves periodos de recuperación— documentó consecuencias sorprendentes. Tras varias semanas de sueño reducido intermitente, los animales presentaban una pérdida significativa de neuronas noradrenérgicas del locus coeruleus, acompañada de alteraciones persistentes del ciclo sueño-vigilia, reducción de las proyecciones neuronales y marcadores biológicos compatibles con procesos de envejecimiento celular acelerado (Zhu et al., 2016) [18].

La vulnerabilidad del locus coeruleus a la pérdida de sueño encuentra confirmación también en los estudios que han analizado la privación selectiva del sueño REM. En estas condiciones se observa un incremento del estrés oxidativo, de la activación apoptótica y de la degeneración de las neuronas noradrenérgicas. Sin embargo, la administración de melatonina después de la privación del sueño resultó capaz de contrarrestar de manera significativa estos fenómenos. Los investigadores observaron un aumento de los niveles de glutatión reducido, una disminución de la activación de la caspasa-3 y una conservación de la población neuronal noradrenérgica del locus coeruleus. En otras palabras, la melatonina no se limitó a favorecer el sueño, sino que mostró una verdadera acción neuroprotectora frente a uno de los sistemas más importantes para la regulación de la vigilancia (Jameie et al., 2019) [16].

Esta observación adquiere particular relevancia si se considera que el locus coeruleus es hoy reconocido como una de las primeras estructuras cerebrales involucradas en los procesos neurodegenerativos asociados al envejecimiento y a la enfermedad de Alzheimer. Numerosas evidencias sugieren que la acumulación de alteraciones patológicas en esta región puede comenzar muchos años antes de la aparición de los síntomas cognitivos. Paralelamente, la fragmentación crónica del sueño acelera la pérdida de las neuronas noradrenérgicas y favorece la acumulación de proteínas patológicas como tau y β-amiloide, instaurando un círculo vicioso entre el deterioro del sueño y la neurodegeneración (Van Egroo et al., 2022) [17].

En conjunto, las evidencias disponibles describen el sistema locus coeruleus–noradrenalina como uno de los principales orquestadores de la fisiología del sueño. Su actividad regula las transiciones entre vigilia y sueño, contribuye a la consolidación de la memoria, coordina importantes funciones autónomas y participa en los procesos neuroprotectores que mantienen eficiente el cerebro a lo largo de la vida. La melatonina, a través de la interacción con los receptores MT1 presentes en las neuronas noradrenérgicas del locus coeruleus, parece insertarse directamente dentro de esta red de regulación, contribuyendo no solo a la organización del sueño REM, sino también a la protección a largo plazo de uno de los sistemas neuronales más importantes para la salud cerebral.

El hipotálamo lateral, la orexina y el locus coeruleus

En el párrafo anterior vimos cómo el locus coeruleus representa uno de los principales centros cerebrales responsables de la producción de noradrenalina y de la regulación del estado de vigilancia. Sin embargo, para comprender plenamente el funcionamiento de este sistema es necesario remontarse al origen e identificar quién controla la actividad del propio locus coeruleus. Las investigaciones de las últimas décadas han mostrado que uno de sus reguladores más importantes es un pequeño grupo de neuronas localizadas en el hipotálamo lateral: las neuronas productoras de orexina, también conocida como hipocretina.

El descubrimiento de la orexina ha modificado profundamente la comprensión de la fisiología del sueño. Inicialmente, este neuropéptido se asociaba sobre todo al control del apetito y del equilibrio energético. Con el paso de los años, sin embargo, ha surgido que su función principal consiste en coordinar el estado de vigilancia del organismo con las necesidades biológicas del momento. Las neuronas orexinérgicas actúan, de hecho, como una especie de central de integración que recopila información proveniente del metabolismo, de las emociones, del sistema de recompensa y del entorno externo, transformándola en señales capaces de modular el nivel de activación cerebral (Sakurai, 2007) [24].

Esta función parece particularmente lógica desde un punto de vista evolutivo. Un organismo que se encuentra en condiciones de carencia energética, que percibe un peligro o que debe buscar activamente recursos alimentarios no puede permitirse reducir su nivel de vigilancia. En estas circunstancias, el sistema orexinérgico aumenta su actividad, favoreciendo un estado de atención sostenida y promoviendo comportamientos orientados a la supervivencia. Por el contrario, durante el sueño, y en particular durante el sueño REM, la actividad de las neuronas de la orexina se reduce drásticamente (Sakurai, 2007) [24].

A pesar del número relativamente reducido de neuronas orexinérgicas presentes en el hipotálamo lateral, sus proyecciones alcanzan numerosas regiones cerebrales involucradas en la regulación de la vigilancia. Entre todas estas estructuras, el locus coeruleus representa probablemente el objetivo más importante. Los análisis neuroanatómicos han demostrado, de hecho, que el locus coeruleus recibe una de las inervaciones orexinérgicas más densas de todo el cerebro. Las fibras provenientes del hipotálamo lateral forman numerosas sinapsis excitatorias directas sobre las neuronas noradrenérgicas del locus coeruleus, creando una conexión anatómica extremadamente robusta entre ambos sistemas (Horvath et al., 1999) [21].

Las observaciones al microscopio electrónico han evidenciado que prácticamente todas las neuronas noradrenérgicas del locus coeruleus reciben contactos sinápticos provenientes de terminales que contienen orexina. Aún más interesante es el hecho de que estas sinapsis presentan características típicas de las conexiones excitatorias, lo que sugiere que el sistema orexinérgico está diseñado para aumentar directamente la actividad de las neuronas del locus coeruleus; los registros electrofisiológicos posteriores han confirmado esta hipótesis. Cuando la orexina se aplica directamente sobre las neuronas del locus coeruleus, su frecuencia de descarga aumenta de forma rápida y consistente. Tal efecto es el resultado tanto de una despolarización de la membrana celular como de una reducción de los mecanismos que normalmente limitan la excitabilidad neuronal. En otras palabras, la orexina hace que las neuronas noradrenérgicas sean más activas y más propensas a mantener niveles elevados de vigilancia (Horvath et al., 1999) [21].

Estos resultados han sido confirmados posteriormente por estudios que analizaron el papel de la orexina A, una de las dos principales formas biológicamente activas del péptido. Las microinyecciones de orexina A directamente en el locus coeruleus determinan un marcado aumento de la vigilia, acompañado de una reducción significativa del sueño REM y del sueño profundo. En algunos experimentos, el incremento del estado de vigilia alcanzó valores superiores al 70%, demostrando la extraordinaria potencia de este sistema de activación neuronal; resulta particularmente interesante que tales efectos estén mediados principalmente por el receptor orexinérgico de tipo 1 (OX1R). Esto sugiere que la comunicación entre el hipotálamo lateral y el locus coeruleus ocurre a través de un mecanismo altamente especializado, optimizado para promover rápidamente el estado de vigilia cuando las condiciones fisiológicas lo requieren (Hagan et al., 1999) [22].

El papel del circuito orexina–locus coeruleus emerge con particular claridad cuando se analizan las transiciones entre la vigilia y el sueño REM. Como vimos en el párrafo anterior, el locus coeruleus está prácticamente silente durante el sueño REM. La activación orexinérgica, en cambio, produce el efecto opuesto: aumenta la actividad de las neuronas noradrenérgicas y hace más difícil la entrada en esta fase del sueño. Un estudio dedicado específicamente a este fenómeno demostró que la administración local de orexina A en el locus coeruleus suprime el sueño REM de manera dependiente de la dosis, mientras aumenta simultáneamente la duración de la vigilia. Este efecto va acompañado de una marcada activación neuronal documentada tanto electrofisiológicamente como a través del aumento de la expresión de una proteína específica (Bourgin et al., 2000) [23].

Estas observaciones han contribuido a aclarar uno de los mecanismos a través de los cuales el cerebro estabiliza los estados conductuales. Cuando el sistema orexinérgico está activo, el locus coeruleus continúa produciendo noradrenalina, manteniendo elevado el nivel de activación (arousal) e impidiendo la intrusión de fenómenos REM durante la vigilia. Cuando, por el contrario, la actividad orexinérgica se reduce, como ocurre fisiológicamente durante la noche, el locus coeruleus puede disminuir progresivamente su actividad, favoreciendo el paso a las diferentes fases del sueño (Bourgin et al., 2000) [23].

La importancia de este circuito emerge de forma aún más evidente al observar lo que sucede en la narcolepsia (un trastorno neurológico del sueño que provoca una fuerte somnolencia durante el día). Esta patología se caracteriza por la pérdida selectiva de las neuronas orexinérgicas del hipotálamo lateral. En ausencia de la acción estabilizadora de la orexina, el cerebro pierde la capacidad de mantener una separación neta entre el sueño y la vigilia. Como consecuencia, aparecen somnolencia diurna, fragmentación del sueño y fenómenos REM que irrumpen inapropiadamente durante la vigilia, como ocurre en los episodios de cataplejía (una pérdida repentina y temporal de la fuerza muscular) (Sakurai, 2007) [24].

Un estudio particularmente elegante permitió identificar los principales circuitos responsables de estos fenómenos. Al restablecer selectivamente la señalización orexinérgica en diferentes poblaciones neuronales de modelos murinos narcolépticos, los investigadores observaron que la recuperación de la transmisión de la orexina en las neuronas noradrenérgicas del locus coeruleus mejora significativamente la consolidación de la vigilia. El efecto resultó directamente proporcional al número de neuronas del locus coeruleus en las que se había restablecido la sensibilidad a la orexina. Este resultado demostró que el locus coeruleus representa uno de los principales efectores a través de los cuales el sistema orexinérgico mantiene un estado de vigilancia continuo y estable (Hasegawa et al., 2014) [25].

En su conjunto, estas evidencias describen el hipotálamo lateral como una especie de centro de mando capaz de modular continuamente el nivel de vigilancia del organismo. A través de la liberación de orexina, activa el locus coeruleus, aumenta la producción de noradrenalina y sostiene el estado de vigilia cuando el organismo debe permanecer atento al entorno circundante. Este sistema representa el contrapeso fisiológico de los mecanismos que favorecen el sueño descritos en los párrafos anteriores. Por una parte, la melatonina y el receptor MT1 contribuyen a reducir la actividad del locus coeruleus y a facilitar el sueño REM; por otra, la orexina ejerce una acción opuesta, estimulando las neuronas noradrenérgicas y promoviendo la vigilancia. El delicado equilibrio entre estas fuerzas contrapuestas permite al cerebro alternar de forma ordenada y estable los estados de sueño y vigilia.

La melatonina, el hipotálamo lateral y la orexina

En los párrafos anteriores hemos visto cómo el locus coeruleus y el sistema orexinérgico representan algunos de los principales promotores de la vigilancia. Sin embargo, queda una pregunta fundamental: ¿de qué manera la melatonina, la señal biológica de la noche, logra contrarrestar estos potentes sistemas de activación cerebral y favorecer el sueño?

Durante muchos años, la respuesta permaneció incompleta. Se sabía que la melatonina favorecía el sueño y que la orexina sostenía la vigilia, pero la conexión directa entre estos dos sistemas neurobiológicos aún no se había aclarado. No obstante, las investigaciones más recientes han identificado un importante punto de encuentro anatómico y funcional dentro del hipotálamo lateral perifornical, una región que alberga gran parte de las neuronas orexinérgicas responsables del mantenimiento del estado de vigilancia (Sharma et al., 2018) [26].

Para comprender la importancia de este descubrimiento, es útil recordar que las neuronas de la orexina funcionan como una especie de acelerador de la conciencia. Cuando están activas, estimulan numerosos sistemas de activación (arousal), entre ellos el locus coeruleus, los núcleos serotoninérgicos del rafe, los sistemas colinérgicos del tronco encefálico y otras estructuras involucradas en la vigilancia. A través de estas conexiones difusas, contribuyen a mantener el cerebro en un estado de activación estable y coherente con las demandas del entorno circundante (Hung y Yamanaka, 2023) [27].

Las modernas técnicas de inmunofluorescencia han demostrado que estas neuronas expresan receptores MT1 para la melatonina. Esta observación sugiere que el sistema melatoninérgico puede ejercer un control directo sobre las principales neuronas promotoras de la vigilia a través de un mecanismo altamente selectivo. La verificación experimental de esta hipótesis ha producido resultados particularmente interesantes. Cuando la melatonina se administra directamente en el hipotálamo lateral perifornical, se observa un aumento significativo del sueño no REM acompañado de una reducción de la vigilia. Paralelamente, la actividad de las neuronas orexinérgicas disminuye drásticamente, como lo demuestra la marcada reducción de la expresión del marcador neuronal c-Fos (proteína utilizada como marcador de la activación neuronal). En otras palabras, la melatonina parece bajar literalmente el volumen de uno de los principales sistemas cerebrales responsables del mantenimiento de la vigilancia (Sharma et al., 2018) [26].

Resulta particularmente significativo el hecho de que el efecto opuesto se observe cuando se bloquea la señalización melatoninérgica. La inhibición farmacológica de los receptores de la melatonina en el hipotálamo lateral determina, de hecho, un aumento de la vigilia y una reducción de la propensión al sueño. Este resultado sugiere que el control ejercido por la melatonina sobre las neuronas de la orexina no representa un fenómeno artificial observable solo en el laboratorio, sino que constituye un mecanismo fisiológico normalmente activo durante la noche (Sharma et al., 2018) [26].

Este descubrimiento ha contribuido a redefinir la forma en que se interpreta la acción de la melatonina. Durante mucho tiempo se imaginó que la hormona actuaba principalmente como una señal circadiana capaz de informar al cerebro de la llegada de la noche. Hoy parece cada vez más evidente que la melatonina también desempeña un papel activo en la modulación de los circuitos neuronales que gobiernan los estados de conciencia. Bajo esta perspectiva, el sueño no derivaría solo de la presencia de una señal temporal favorable, sino también de la progresiva desactivación de los sistemas que sostienen la vigilia.

La importancia de este mecanismo se vuelve aún más evidente al observar el comportamiento fisiológico de las neuronas orexinérgicas durante el ciclo sueño-vigilia. Los registros electrofisiológicos y las modernas técnicas de imagen han mostrado que estas neuronas alcanzan su máxima actividad durante la vigilia activa, la exploración del entorno, la exposición a nuevos estímulos y los comportamientos motivados. Por el contrario, su actividad disminuye progresivamente durante la vigilia tranquila y se vuelve mínima durante el sueño no REM. Tal tendencia sugiere que la inhibición de la orexina representa uno de los pasos fundamentales que permiten al cerebro transitar de la vigilancia al sueño (Hung y Yamanaka, 2023) [27].

Las evidencias genéticas refuerzan aún más esta interpretación. Los modelos animales carentes de orexina o de sus receptores muestran, de hecho, una marcada inestabilidad de los estados de conciencia, con fragmentación de la vigilia, episodios de sueño REM precoz y manifestaciones similares a la narcolepsia humana. Estas observaciones demuestran que el sistema orexinérgico representa uno de los principales mecanismos a través de los cuales el cerebro mantiene la continuidad del estado de vigilia (Hung y Yamanaka, 2023) [27].

Desde esta perspectiva emerge un cuadro particularmente elegante de la fisiología del sueño. Durante el día, la actividad de las neuronas orexinérgicas contribuye a sostener la vigilancia y a activar sistemas como el locus coeruleus y la transmisión noradrenérgica. Con la llegada de la noche, el aumento de la secreción de melatonina permite reducir progresivamente esta actividad a través de los receptores MT1 expresados en las neuronas de la orexina. La disminución de la actividad orexinérgica se traduce, por tanto, en una menor estimulación de los sistemas de activación, facilitando la entrada en el sueño y su estabilización (Sharma et al., 2018) [26].

La importancia clínica de esta relación ha sido confirmada también por estudios farmacológicos recientes. La observación de que los agonistas de los receptores de la melatonina y los antagonistas de los receptores de la orexina produzcan beneficios similares en diversas condiciones patológicas sugiere, de hecho, que ambos enfoques terapéuticos pueden converger en los mismos circuitos neurobiológicos. En un estudio realizado en pacientes ancianos hospitalizados por ictus, la administración precoz de un agonista del receptor de la melatonina o de antagonistas de los receptores de la orexina resultó asociada a una significativa reducción de la incidencia de síntomas delirantes. Los autores han hipotetizado que tal beneficio deriva, al menos en parte, de la mejora de la calidad del sueño y de la normalización del ritmo sueño-vigilia, confirmando la importancia del equilibrio entre el sistema melatoninérgico y el sistema orexinérgico en la estabilidad de las funciones cognitivas (Miyoshi et al., 2024) [28].

Estas observaciones abren perspectivas terapéuticas particularmente interesantes. Si la melatonina favorece el sueño reduciendo la actividad de las neuronas de la orexina y si los antagonistas de los receptores orexinérgicos producen efectos clínicos similares a través de un mecanismo diferente, resulta plausible considerar estos dos sistemas como partes complementarias de una misma red biológica. En dicho modelo, la melatonina representaría la señal fisiológica que comunica la llegada de la noche, mientras que la orexina constituiría el principal sistema que debe ser progresivamente silenciado para que el sueño pueda emerger de forma estable y eficaz.

En conjunto, las evidencias disponibles indican que la relación entre la melatonina y la orexina representa uno de los principales puntos de encuentro entre el sistema circadiano y los circuitos neuronales de la vigilancia. A través de la activación de los receptores MT1 presentes en el hipotálamo lateral, la melatonina parece, de hecho, inhibir directamente uno de los más potentes promotores de la vigilia presentes en el cerebro. Este mecanismo permite conectar la señal biológica de la noche con la reducción de la activación neuronal, creando las condiciones necesarias para que el sueño pueda desarrollarse de forma fisiológica y coordinada.

Los receptores MT1 en el cuerpo humano

Hasta este momento hemos seguido el recorrido de la melatonina dentro de los circuitos cerebrales que regulan el sueño, observando cómo interactúa con el locus coeruleus, con la noradrenalina y con el sistema orexinérgico del hipotálamo lateral. En este punto podría surgir espontáneamente una convicción errónea: imaginar que los receptores MT1 están confinados casi exclusivamente al cerebro y que su función principal es la de regular el sueño. En realidad, las investigaciones de los últimos años han revelado una realidad mucho más fascinante y compleja. Los receptores MT1 están distribuidos en numerosos órganos y tejidos del organismo y participan en la regulación de procesos biológicos que involucran el metabolismo, el sistema cardiovascular, la inmunidad, la función endocrina e incluso la protección celular contra el estrés oxidativo (Jockers et al., 2016) [29]; (Slominski et al., 2012) [31].

Desde el punto de vista estructural, el receptor MT1 pertenece a la gran familia de los receptores acoplados a proteínas G. Cuando la melatonina se une a este receptor, se activa una cascada de señales intracelulares que modifica el comportamiento de la célula. Entre los efectos más importantes se encuentran la reducción de los niveles intracelulares de AMP cíclico (molécula que transmite señales dentro de las células, regulando funciones importantes), la modulación de las proteínas quinasas (enzima que regula la actividad de otras proteínas añadiendo grupos fosfato), el control de los flujos iónicos (movimiento de partículas eléctricamente cargadas (iones) a través de la membrana celular) y la regulación de la expresión génica. En algunos tejidos, el receptor puede además activar la vía de la fosfolipasa C (un enzima que transforma algunas grasas de la membrana celular en señales químicas) y de la proteína quinasa C, ampliando aún más la variedad de las respuestas biológicas posibles (Jockers et al., 2016) [29]; (Tripathy y Bhattamisra, 2025) [33].

Uno de los sistemas periféricos más ricos en señalización melatoninérgica está representado por el tracto gastrointestinal. Durante muchos años se creyó que la glándula pineal era la principal fuente de melatonina del organismo. Hoy sabemos que el intestino produce cantidades de melatonina extremadamente elevadas, a menudo superiores a las presentes en el torrente sanguíneo. Los estudios realizados en tejidos humanos han identificado el receptor MT1 a lo largo de todo el tracto gastrointestinal, incluido el epitelio intestinal, el plexo mientérico, el plexo submucoso (red de neuronas situada entre las capas musculares del intestino) y las estructuras vasculares de la pared intestinal (Söderquist et al., 2015) [30].

Esta distribución sugiere que la melatonina participa directamente en la regulación de la motilidad intestinal, de la secreción digestiva, de la función barrera y de la comunicación entre el sistema nervioso entérico y el aparato digestivo. En otras palabras, el tracto gastrointestinal no representa solo un órgano diana de la melatonina, sino un verdadero sistema melatoninérgico periférico dotado de una notable autonomía funcional (Söderquist et al., 2015) [30]; (Slominski et al., 2012) [31].

Particularmente interesante es la presencia de los receptores MT1 también en el páncreas endocrino. Las células de los islotes pancreáticos expresan, de hecho, componentes completos de la señalización melatoninérgica. Esta observación ha atraído la atención de los investigadores, ya que vincula directamente la melatonina con el control del metabolismo glucídico. A través de sus receptores, la melatonina contribuye a la modulación de la secreción insulínica y a la sincronización circadiana del metabolismo energético. Alteraciones de la señalización melatoninérgica se han asociado a insulinorresistencia, alteración de la función de las células β y mayor riesgo de diabetes mellitus de tipo 2 (Söderquist et al., 2015) [30]; (Tripathy y Bhattamisra, 2025) [33].

También el sistema cardiovascular posee una significativa expresión de receptores MT1. Estos receptores han sido identificados en la pared de los vasos sanguíneos, tanto a nivel de las células musculares lisas como del endotelio. Las investigaciones indican que la activación de MT1 está generalmente asociada a fenómenos vasoconstrictores mediados por la reducción del AMP cíclico y por la modulación de los canales de potasio calcio-dependientes. Este mecanismo contribuye a la regulación fina del tono vascular y de la presión arterial, integrando las señales circadianas con las necesidades hemodinámicas del organismo (da Rocha-Carvalho et al., 2025) [32]; (Slominski et al., 2012) [31].

El interés por estos efectos ha aumentado al observar que la expresión de los receptores MT1 tiende a disminuir con el envejecimiento y en diversas condiciones cardiovasculares patológicas. Algunos investigadores han hipotetizado que la progresiva pérdida de sensibilidad a la melatonina puede contribuir a las alteraciones vasculares asociadas a la edad, favoreciendo la disfunción endotelial, el aumento de la rigidez arterial y la reducida capacidad de adaptación a los ritmos circadianos (da Rocha-Carvalho et al., 2025) [32].

Otro ámbito particularmente relevante se refiere al sistema inmunitario. Numerosas células inmunitarias expresan receptores MT1 y responden directamente a la presencia de la melatonina. A través de estos mecanismos, la melatonina puede influir en la proliferación linfocitaria, la producción de citocinas y la regulación de las respuestas inflamatorias. En particular, el receptor MT1 parece estar involucrado en la modulación de la inmunidad adaptativa, contribuyendo a la producción de interleucina-2 (una proteína del sistema inmunitario que estimula el crecimiento y la multiplicación de los linfocitos T) y al control de la actividad de los linfocitos T (Jockers et al., 2016) [29]; (Slominski et al., 2012) [31].

La distribución periférica de MT1 se extiende además al riñón, al tejido óseo, a la piel, a los órganos reproductivos y a la placenta. En el riñón contribuye a la regulación de la homeostasis hidroelectrolítica y a la protección contra los procesos inflamatorios. En el tejido óseo favorece la actividad de los osteoblastos y el mantenimiento de la masa esquelética. En la piel participa en la protección contra el estrés oxidativo y en la regulación de la proliferación celular. Durante el embarazo, la presencia de receptores melatoninérgicos en la placenta y en el útero contribuye a la protección fetal y a la regulación de los procesos gestacionales (Slominski et al., 2012) [31].

Un aspecto que está suscitando creciente interés se refiere al papel de los receptores MT1 en las enfermedades crónicas. Se han observado alteraciones de la expresión receptorial en la enfermedad de Alzheimer, en la enfermedad de Parkinson, en la enfermedad de Huntington y en algunos trastornos del neurodesarrollo. En muchas de estas condiciones se observan simultáneamente alteraciones del sueño, de los ritmos circadianos y de la función metabólica, lo que sugiere que la disfunción de la señalización melatoninérgica puede contribuir a la progresión de la enfermedad (Jockers et al., 2016) [29].

En conjunto, el conjunto de las evidencias disponibles modifica profundamente la tradicional imagen de la melatonina como simple hormona del sueño. El receptor MT1 emerge, de hecho, como un componente de una vasta red biológica distribuida en todo el organismo. A través de su presencia en el cerebro, en el intestino, en el páncreas, en los vasos sanguíneos, en el sistema inmunitario y en numerosos otros tejidos, contribuye a coordinar funciones que van desde la regulación circadiana al metabolismo energético, desde la inmunidad a la protección celular. Esta visión sistémica permite comprender cómo la señal nocturna de la melatonina no está destinada exclusivamente al cerebro, sino que representa un mensaje biológico global capaz de sincronizar todo el organismo con el ritmo del día.

Melatonina y autofagia

Para comprender plenamente muchas de las funciones atribuidas a la melatonina, es necesario introducir un proceso biológico fundamental para la supervivencia celular: la autofagia. El término deriva del griego y significa literalmente "comerse a sí mismo", pero esta definición puede resultar engañosa. La autofagia no representa, de hecho, un mecanismo autodestructivo, sino un extraordinario sistema de mantenimiento interno a través del cual la célula identifica, secuestra y degrada componentes dañados, proteínas mal plegadas y orgánulos que ya no funcionan, para luego reutilizar sus constituyentes en la producción de nuevas estructuras celulares (Coto-Montes et al., 2012) [34]; (Boga et al., 2019) [35].

Se podría comparar este proceso con lo que sucede en una ciudad bien organizada. Cada día se recogen residuos, se eliminan materiales dañados y se recuperan materias primas útiles para nuevas construcciones. Si este sistema de recolección y reciclaje se interrumpiera, las calles terminarían progresivamente llenándose de escombros, comprometiendo el funcionamiento de toda la ciudad. Del mismo modo, cuando la autofagia se altera, las células acumulan estructuras dañadas que favorecen la inflamación, la disfunción metabólica, el envejecimiento y la enfermedad (Coto-Montes et al., 2012) [34].

En los últimos años ha surgido que la melatonina representa uno de los reguladores fisiológicos más importantes de este sistema. Inicialmente se creía que su papel se limitaba a la neutralización directa de los radicales libres y a la regulación del ritmo sueño-vigilia. Las evidencias más recientes han demostrado, en cambio, que la melatonina interviene a un nivel mucho más profundo, coordinando numerosos mecanismos celulares involucrados en el control de la calidad intracelular (Boga et al., 2019) [35]; (Lei et al., 2024) [38].

Uno de los elementos que conecta estrechamente la melatonina y la autofagia es el estrés oxidativo. Durante el metabolismo celular normal se generan continuamente especies reactivas del oxígeno, comúnmente llamadas ROS. En cantidades fisiológicas, estas moléculas desempeñan importantes funciones de señalización. Sin embargo, cuando su producción supera la capacidad defensiva de la célula, se acumulan daños en proteínas, lípidos, ADN y mitocondrias. En estas condiciones, la autofagia se activa como un mecanismo de emergencia para eliminar las estructuras comprometidas y restablecer la homeostasis celular (Coto-Montes et al., 2012) [34]; (Lei et al., 2024) [38].

La melatonina participa activamente en este proceso a través de numerosas vías moleculares. Entre las más importantes se encuentran la activación de AMPK, uno de los principales sensores energéticos celulares, y la inhibición de mTOR, una proteína que normalmente suprime la autofagia cuando los recursos energéticos son abundantes. A través de esta regulación, la melatonina favorece la activación de ULK1 (una proteína que inicia la autofagia) y el comienzo de la formación de los autofagosomas, las estructuras que engloban el material que debe degradarse (Qiu et al., 2026) [40]; (Zhu et al., 2025) [39].

Entre las diversas formas de autofagia, una de las más importantes es la mitofagia, un proceso selectivo dedicado exclusivamente a la eliminación de las mitocondrias dañadas. Las mitocondrias constituyen las principales centrales energéticas de la célula, pero también son una de las mayores fuentes intracelulares de radicales libres. Cuando se vuelven disfuncionales, pueden transformarse de productoras de energía a generadoras de daño celular. Por este motivo, el organismo ha desarrollado sofisticados sistemas de control de la calidad mitocondrial que permiten eliminar selectivamente los orgánulos comprometidos y sustituirlos por nuevas mitocondrias funcionales (Coto-Montes et al., 2012) [34]; (Lei et al., 2024) [38].

Las evidencias más recientes sugieren que la melatonina desempeña un papel particularmente importante precisamente en el control de la calidad mitocondrial. Además de proteger directamente las mitocondrias de los daños oxidativos, regula la fusión y la fisión mitocondrial, promueve la biogénesis de nuevos orgánulos y estimula la mitofagia a través de sistemas específicos. Este conjunto coordinado de mecanismos permite preservar la eficiencia energética de la célula y limitar la acumulación de estructuras disfuncionales (Lei et al., 2024) [38]; (Zhu et al., 2025) [39].

Un aspecto particularmente fascinante que ha surgido de las investigaciones es que la melatonina no se comporta como un simple interruptor que activa siempre la autofagia. Por el contrario, actúa como un regulador adaptativo: cuando el flujo autofágico es insuficiente y la célula acumula estructuras dañadas, la melatonina tiende a potenciarlo; cuando, en cambio, la autofagia se vuelve excesiva y corre el riesgo de transformarse en un mecanismo autodestructivo, la melatonina puede limitarla. En otras palabras, su objetivo no es aumentar o reducir la autofagia de forma indiscriminada, sino mantener el equilibrio óptimo necesario para la supervivencia celular (Boga et al., 2019) [35]; (Zhu et al., 2025) [39]; (Lei et al., 2024) [38].

Esta naturaleza bidireccional aparece particularmente evidente en el sistema nervioso. Las enfermedades neurodegenerativas como el Alzheimer y el Parkinson se caracterizan por la acumulación progresiva de proteínas agregadas y mitocondrias dañadas. En estos contextos, la melatonina favorece la autofagia y la mitofagia, facilitando la eliminación de las estructuras patológicas, mejorando la función mitocondrial y reduciendo la neuroinflamación. En otros escenarios neurológicos, sin embargo, una activación excesiva de la autofagia puede contribuir a la muerte neuronal; en tales condiciones, la melatonina parece ejercer un efecto moderador, contribuyendo a restablecer el equilibrio celular (Zhu et al., 2025) [39]; (Boga et al., 2019) [35].

La misma capacidad reguladora se ha observado en el hígado. En un modelo murino de esteatohepatitis asociada a obesidad e hipoxia intermitente crónica, una condición observada frecuentemente en sujetos afectados por el síndrome de apnea obstructiva del sueño, la melatonina redujo el daño hepático restableciendo la actividad autofágica. La recuperación del flujo autofágico se asoció a una reducción de la inflamación, a una mejora de la estructura del hígado y a una menor progresión de la enfermedad metabólica (Ren et al., 2019) [36].

También el tejido óseo parece beneficiarse de esta regulación. En modelos de osteoporosis diabética, la hiperglucemia crónica compromete la capacidad regenerativa de las células madre mesenquimales (células inmaduras capaces de transformarse en diferentes tipos de células, como las de los huesos, el cartílago y el tejido adiposo) y favorece un estado inflamatorio persistente. La melatonina resultó capaz de activar la vía NRF2-autofagia, reducir el estrés oxidativo y promover la polarización de los macrófagos hacia el fenotipo antiinflamatorio M2. Este cambio del microambiente celular favoreció la diferenciación osteogénica y la mejora de la formación ósea (Zhang et al., 2026) [41].

Particularmente interesante es el papel de la autofagia también en el ámbito oncológico. Las células tumorales utilizan frecuentemente los mecanismos autofágicos para sobrevivir en entornos hostiles caracterizados por carencia de nutrientes, hipoxia y estrés metabólico. En algunos contextos, la melatonina parece aprovechar precisamente este sistema para contrarrestar el crecimiento neoplásico. En las células de neuroblastoma, por ejemplo, induce una forma de autofagia citotóxica a través de la activación del eje Pak2/AMPK/mTOR y la modulación del estrés del retículo endoplásmico, contribuyendo a la supresión del crecimiento tumoral (Qiu et al., 2026) [40].

Resultados análogos se han observado en el carcinoma colorrectal. En este modelo, la melatonina aumenta la producción de especies reactivas del oxígeno, activa la respuesta al estrés del retículo endoplásmico e induce la expresión de proteínas autofágicas específicas. También han surgido modificaciones de las vías AMPK y PI3K/AKT/mTOR. El resultado final es una activación de la autofagia asociada a la muerte de las células tumorales, lo que sugiere un posible papel de la melatonina como coadyuvante en las estrategias terapéuticas oncológicas (Chok et al., 2021) [37].

En conjunto, las evidencias actualmente disponibles muestran que la melatonina representa mucho más que un simple regulador del sueño. A través del control de la autofagia y de la mitofagia, interviene en algunos de los mecanismos más importantes de mantenimiento de la homeostasis celular. La capacidad de modular AMPK, mTOR y numerosas otras vías de señalización permite a la melatonina adaptar la respuesta celular a las necesidades específicas de cada tejido y de cada condición patológica. En esta perspectiva, la autofagia aparece como uno de los principales instrumentos a través de los cuales la melatonina protege al organismo del envejecimiento, de la disfunción metabólica, de la neurodegeneración y del daño celular crónico.

AMPK y la autofagia

En el párrafo anterior vimos cómo la melatonina puede influir en la autofagia a través de numerosas vías de señalización intracelulares, entre ellas AMPK y mTOR. Para comprender a fondo este mecanismo, es necesario detenerse en uno de los sensores metabólicos más importantes presentes en el organismo: la proteína quinasa activada por AMP, más conocida como AMPK.

Cada célula del cuerpo humano se enfrenta constantemente a un desafío fundamental: equilibrar el consumo y la producción de energía. Cuando la energía disponible es abundante, la célula puede invertir recursos en el crecimiento, la síntesis proteica y la proliferación. Cuando, por el contrario, las reservas energéticas disminuyen, resulta necesario adoptar estrategias de ahorro y recuperación. En este contexto, AMPK desempeña el papel de una verdadera centralita de control metabólico, capaz de monitorizar continuamente la relación entre AMP y ATP (dos moléculas vinculadas a la disponibilidad de energía celular) y de adaptar el comportamiento celular a las condiciones energéticas del momento (Smiles et al., 2024) [43]; (Mandic et al., 2025) [45].

Se podría comparar a AMPK con un sofisticado sistema de gestión de emergencias instalado en una gran ciudad. Cuando los recursos energéticos son suficientes, las actividades proceden con normalidad. Si, en cambio, se produce una carencia de energía, el sistema interviene inmediatamente reduciendo los consumos no esenciales y activando mecanismos destinados a restablecer el equilibrio. Este principio representa el fundamento biológico de la acción de AMPK (Mandic et al., 2025) [45].

Para desempeñar esta función, AMPK opera en estrecha colaboración con otro importante regulador metabólico: mTORC1. Si AMPK representa el sensor de la escasez energética, mTORC1 puede considerarse el promotor del crecimiento celular. Cuando los nutrientes y la energía son abundantes, mTORC1 favorece la síntesis proteica, la proliferación y el anabolismo. Cuando, por el contrario, la energía disminuye, AMPK interviene suprimiendo la actividad de mTORC1 y orientando el metabolismo hacia procesos de conservación y recuperación de recursos (Smiles et al., 2024) [43]; (Al-Kuraishy et al., 2025) [46].

Esta relación antagonista representa uno de los puntos de control metabólico más importantes de todo el organismo. A través de la fosforilación de proteínas como TSC2, AMPK es capaz de reducir la actividad de mTORC1, interrumpiendo temporalmente programas celulares de alto consumo energético y favoreciendo la activación de vías catabólicas orientadas a la supervivencia (Smiles et al., 2024) [43]; (Mandic et al., 2025) [45].

Entre los principales objetivos de esta regulación se encuentra ULK1, una quinasa considerada el punto de partida del programa autofágico. ULK1 representa el nodo de convergencia a través del cual AMPK y mTOR se comunican con el sistema de la autofagia. En presencia de nutrientes abundantes, mTORC1 fosforila ULK1 en sitios inhibidores, impidiendo el inicio de la autofagia. Cuando, en cambio, los recursos energéticos disminuyen, AMPK modifica ULK1 a través de diferentes eventos de fosforilación que permiten la activación del programa autofágico y el inicio de la formación de los autofagosomas (Smiles et al., 2024) [43].

Durante muchos años, esta relación se interpretó según un modelo relativamente sencillo: carencia energética, activación de AMPK, inhibición de mTOR, activación de ULK1 y consecuente inducción de la autofagia. Este paradigma ha dominado la literatura científica durante más de dos décadas y ha sido confirmado por numerosos estudios experimentales realizados en células, modelos animales y tejidos humanos (Kim, 2024) [44]; (Mandic et al., 2025) [45].

Según esta visión clásica, la autofagia representa una herramienta a través de la cual la célula recupera nutrientes y sustratos energéticos durante periodos de estrés metabólico. Al eliminar orgánulos dañados, agregados proteicos y otros componentes que ya no son funcionales, la célula puede reciclar materiales valiosos y utilizarlos para sostener sus propias funciones vitales (Mandic et al., 2025) [45].

De estas observaciones nació un nuevo modelo interpretativo. Según esta perspectiva, AMPK no sería simplemente un activador de la autofagia, sino un regulador dinámico capaz de decidir cuándo y en qué medida debe activarse el proceso. Durante una fase inicial de severa depleción energética, AMPK podría preservar la maquinaria autofágica manteniendo proteínas como ULK1 en un estado funcionalmente listo pero temporalmente inactivo. Una vez restablecidas condiciones energéticas más favorables, la autofagia podría iniciarse de manera más eficiente y sostenible (Kim, 2024) [44].

Este concepto ha sido definido por algunos autores como mantenimiento de la "competencia autofágica". En otras palabras, AMPK no controlaría solamente el encendido o el apagado de la autofagia, sino que garantizaría que todo el sistema permanezca listo para responder cuando las condiciones metabólicas lo permitan (Kim, 2024) [44]; (Mandic et al., 2025) [45].

También en el músculo esquelético el eje AMPK/mTOR/autofagia desempeña un papel central. Durante el ejercicio físico, el aumento del consumo energético determina la activación de AMPK, la supresión de mTORC1 y la estimulación coordinada de la autofagia y de la biogénesis lisosómica (el proceso mediante el cual las células producen nuevos lisosomas, pequeños orgánulos que degradan y reciclan sustancias de desecho). Este proceso favorece la eliminación de proteínas dañadas y mitocondrias disfuncionales, mejorando la calidad celular, la sensibilidad insulínica y la flexibilidad metabólica. En la obesidad sarcopénica, tales adaptaciones contribuyen simultáneamente a la conservación de la masa muscular y a la reducción de la acumulación adiposa (Zhang et al., 2026) [42].

La importancia de AMPK emerge también en las enfermedades cardiovasculares. En la aterosclerosis, la activación crónica de mTOR y el compromiso de la autofagia favorecen la disfunción endotelial, la inflamación vascular y la progresión de la placa aterosclerótica. Por el contrario, la activación de AMPK mejora el metabolismo lipídico, reduce la producción de citoquinas inflamatorias y favorece el restablecimiento de la autofagia fisiológica, contribuyendo a la protección de la pared vascular (Al-Kuraishy et al., 2025) [46].

En conjunto, las evidencias actuales muestran que AMPK representa mucho más que un simple sensor energético. Constituye uno de los principales directores de orquesta de la homeostasis celular, capaz de coordinar el crecimiento, la supervivencia, el metabolismo y la autofagia a través de una red de regulaciones extremadamente sofisticada. La visión moderna ya no describe a AMPK como un simple activador de la autofagia, sino como un regulador contextual que adapta continuamente la respuesta celular a las condiciones energéticas del momento. A través del diálogo con mTOR, AMPK contribuye a mantener ese equilibrio dinámico que permite a las células sobrevivir, adaptarse y funcionar correctamente incluso en presencia de estrés metabólico significativo.

La vía MT1 → AMPK ↑ → mTORC1 ↓

A lo largo de los párrafos anteriores hemos visto cómo la melatonina es mucho más que una simple hormona involucrada en la regulación del sueño. Las evidencias científicas muestran, de hecho, que participa en el control del metabolismo energético, la autofagia, la función mitocondrial, la respuesta al estrés oxidativo y la supervivencia celular. En el centro de muchas de estas funciones emerge una vía de señalización común, constituida por el eje MT1–AMPK–mTORC1, que representa uno de los principales mecanismos a través de los cuales la melatonina traduce la señal circadiana en adaptaciones biológicas concretas.

Cuando la melatonina se une a sus receptores, en particular al MT1, se inicia una cascada de eventos intracelulares que conduce a la activación de AMPK, el principal sensor energético celular. La activación de AMPK señala a la célula la necesidad de optimizar el uso de los recursos disponibles, reduciendo los procesos anabólicos de alto consumo energético y favoreciendo mecanismos de adaptación y mantenimiento celular. Uno de los principales objetivos de esta regulación es mTORC1, un complejo proteico que promueve el crecimiento, la síntesis proteica y la acumulación de nutrientes cuando las condiciones metabólicas son favorables (Chen et al., 2020) [47]; (Zhang et al., 2019) [50].

En términos sencillos, se podría imaginar a AMPK y mTORC1 como los dos extremos de una balanza metabólica. Cuando prevalece mTORC1, la célula invierte energía en el crecimiento y en la construcción de nuevas estructuras. Cuando, por el contrario, se activa AMPK, el organismo privilegia la conservación de los recursos, el reciclaje de los componentes dañados y la protección celular. La melatonina parece poseer la capacidad de desplazar esta balanza hacia programas metabólicos más orientados a la resiliencia celular, sobre todo durante las horas nocturnas (Wang et al., 2019) [51]; (Chen et al., 2020) [47].

Uno de los ejemplos más claros de este mecanismo proviene de los estudios sobre la calcificación vascular. En esta condición patológica, las células musculares lisas de los vasos sanguíneos tienden progresivamente a adquirir características similares a las de las células óseas, favoreciendo la deposición de calcio en la pared arterial. Chen y colaboradores han demostrado que la melatonina activa AMPK, inhibe mTORC1 y aumenta la actividad de ULK1, promoviendo la autofagia y reduciendo simultáneamente la deposición de calcio y la actividad apoptótica de las células vasculares. Cuando los investigadores bloquearon AMPK o reactivaron artificialmente mTOR, gran parte de los efectos protectores de la melatonina desaparecieron, confirmando el papel central del eje AMPK–mTORC1 (Chen et al., 2020) [47].

La misma arquitectura molecular se ha observado también en el sistema nervioso. En las células de neuroblastoma, una forma tumoral particularmente agresiva, la melatonina resultó capaz de aumentar la expresión de la proteína Pak2, que a su vez activa AMPK y suprime la señalización de mTOR. En este contexto, la autofagia no desempeña una función protectora para la célula tumoral, sino que contribuye a su eliminación, lo que sugiere que la melatonina puede aprovechar el eje AMPK–mTORC1 para limitar el crecimiento neoplásico (Qiu et al., 2026) [40].

Las evidencias recopiladas en el sistema reproductivo muestran una notable coherencia con estos resultados. En el cuerpo lúteo de las ovejas, la fase caracterizada por la mayor producción de progesterona coincide con la expresión más elevada de los receptores MT1 y MT2 y con el flujo autofágico más intenso, lo que sugiere que la melatonina puede sostener la esteroidogénesis (el proceso mediante el cual el organismo transforma el colesterol en hormonas esteroideas) precisamente a través de la modulación de la autofagia mediada por el eje AMPK–mTOR. En este escenario, la autofagia no aparece como un mecanismo de degradación como fin en sí mismo, sino como una herramienta con la que la célula luteal optimiza su propio metabolismo para sostener la síntesis hormonal (Duan et al., 2024) [48].

Un cuadro análogo emerge en el ovario senescente. Con el avance de la edad, la acumulación de especies reactivas del oxígeno, el deterioro de la función mitocondrial y la alteración de la homeostasis energética comprometen progresivamente la calidad ovocitaria. Los estudios realizados en modelos murinos han demostrado que la administración crónica de melatonina aumenta el número de ovocitos recuperables, mejora la calidad embrionaria e incrementa la fertilidad. Estos efectos resultan estrictamente dependientes de la activación del receptor MT1 y de la vía AMPK, como lo demuestra la marcada reducción de la fertilidad observada en los animales carentes del receptor MT1. La activación de este eje se asocia además a una reducción del estrés oxidativo, a una mayor actividad antioxidante y a una mejor conservación de la función mitocondrial (Zhang et al., 2019) [50].

También el sistema reproductivo masculino parece beneficiarse de la misma regulación biológica. Durante la crioconservación de los espermatozoides, la congelación y la descongelación provocan una producción masiva de especies reactivas del oxígeno que compromete la motilidad, la integridad celular y la capacidad fecundante. Zhu y colaboradores han observado que la melatonina aumenta significativamente la fosforilación de AMPK, reduce los niveles intracelulares de ROS, limita la peroxidación lipídica y mejora la supervivencia de los espermatozoides tras la descongelación. El hecho de que tales efectos se vean atenuados por el bloqueo de los receptores de la melatonina sugiere, una vez más, la existencia de una conexión funcional entre MT1, AMPK y los mecanismos de protección celular (Zhu et al., 2019) [49].

Uno de los aspectos más interesantes surgidos de las investigaciones se refiere al metabolismo lipídico. En las células epiteliales mamarias bovinas, la melatonina induce un aumento de la expresión del receptor MT1 y una marcada reducción de la fosforilación de mTOR y de sus principales efectores. Este cambio se acompaña de una disminución de la síntesis de triglicéridos, de la formación de gotitas lipídicas intracelulares y de la acumulación de grasa en la leche. Cuando mTOR se reactiva experimentalmente, los efectos de la melatonina se anulan, demostrando que la supresión de mTOR representa el paso crucial de este mecanismo (Wang et al., 2019) [51].

Considerando en su conjunto estos resultados, emerge un modelo biológico sorprendentemente coherente. En tejidos y condiciones muy diferentes entre sí —vasos sanguíneos, cerebro, ovario, cuerpo lúteo, espermatozoides y glándula mamaria—, la melatonina tiende a converger en los mismos nodos reguladores. La activación de los receptores MT1 favorece la activación de AMPK; AMPK reduce la actividad de mTORC1; la disminución de la señalización de mTORC1 permite la activación de programas adaptativos como la autofagia, la protección mitocondrial, el control del estrés oxidativo y la regulación metabólica.

Esta observación sugiere que la melatonina no actúa simplemente como una señal de oscuridad, sino como un coordinador sistémico de la economía energética celular. Durante la noche, cuando el organismo reduce muchas de las actividades asociadas al entorno externo, la melatonina parece favorecer procesos de mantenimiento, reparación, reciclaje y optimización metabólica. A través del eje MT1–AMPK–mTORC1, contribuye a mantener el equilibrio entre crecimiento y conservación, entre síntesis y reciclaje, entre consumo energético y supervivencia celular.

A la luz de las evidencias actualmente disponibles, la vía MT1–AMPK–mTORC1 puede considerarse uno de los principales mecanismos biológicos a través de los cuales la melatonina ejerce sus efectos sistémicos. La extraordinaria conservación de este eje en tejidos diversos sugiere que representa un elemento central de la fisiología melatoninérgica y un posible objetivo terapéutico para numerosas condiciones caracterizadas por disfunción metabólica, alteración de la autofagia, estrés oxidativo y envejecimiento celular.

Conclusiones

El recorrido abordado en este capítulo nos ha permitido comprender que la melatonina es mucho más que la hormona del sueño. Producida principalmente por la glándula pineal, pero también por numerosos tejidos periféricos, esta molécula participa en la regulación de los ritmos circadianos y en la protección celular. Las investigaciones describen sus propiedades antioxidantes, antiinflamatorias e inmunomoduladoras. La melatonina contribuye además a preservar la funcionalidad de las mitocondrias, apoyando la producción energética y limitando los daños provocados por el estrés oxidativo. Estas actividades demuestran cómo una molécula asociada al descanso puede, en realidad, influir en numerosos procesos fundamentales para la salud.

Hemos profundizado, por tanto, en su papel en la regulación del sueño. Los estudios clínicos muestran beneficios en la calidad del descanso y en el tiempo necesario para conciliar el sueño, aunque los efectos varían según las condiciones individuales. Se han observado resultados favorables en adultos con trastornos del sueño, en pacientes con Parkinson, en niños con trastornos del neurodesarrollo y en algunas condiciones hospitalarias. La melatonina, por tanto, no actúa simplemente provocando somnolencia, sino que contribuye a sincronizar los mecanismos biológicos que regulan el paso de la vigilia al descanso.

Para comprender este proceso, hemos examinado el receptor MT1, a través del cual la melatonina transmite parte de sus señales a las células nerviosas. Las investigaciones experimentales indican que MT1 contribuye a la organización del sueño REM, a la estabilidad de sus fases y a la regulación de los ritmos circadianos. Un papel particularmente importante emerge en el locus coeruleus, una región cerebral que produce noradrenalina, fundamental para mantener la atención y la vigilancia. Durante la vigilia este sistema está activo, mientras que en el sueño REM su actividad disminuye drásticamente. La activación de MT1 puede favorecer dicha reducción, facilitando la entrada en el sueño REM.

Pero el locus coeruleus no actúa de forma aislada. Su actividad está sostenida también por la orexina, una molécula producida por las neuronas del hipotálamo lateral. Cuando la orexina aumenta, estimula la liberación de noradrenalina y favorece el mantenimiento de la vigilia. Esta conexión permite comprender la relación entre dos sistemas con funciones opuestas. Por una parte, la melatonina contribuye a reducir la actividad de los circuitos de la vigilancia; por otra, la orexina los mantiene activos. Estudios experimentales sugieren además que la melatonina puede actuar directamente sobre las neuronas orexinérgicas a través de MT1, favoreciendo el sueño no-REM.

El papel de MT1, sin embargo, no se limita al cerebro. Las investigaciones documentan su presencia en el intestino, el páncreas, los vasos sanguíneos, las células inmunitarias y en numerosos tejidos más. Esta distribución vincula a la melatonina con la regulación del metabolismo glucídico, de la secreción insulínica, del tono vascular y de las respuestas inflamatorias. La señal circadiana puede, por tanto, influir en funciones que involucran a todo el organismo.

De esta visión sistémica emerge un mecanismo adicional a través del cual la melatonina contribuye a la protección celular: la autofagia. Este proceso permite a las células eliminar y reciclar componentes dañados, manteniendo eficiente su funcionamiento. La melatonina puede regular su actividad, favoreciendo también la eliminación de las mitocondrias comprometidas a través de la mitofagia. Los estudios experimentales han evidenciado efectos protectores en diversos tejidos, mientras que algunos modelos tumorales muestran cómo la autofagia puede contribuir a la muerte de las células neoplásicas.

¿Pero a través de qué mecanismos logra la melatonina controlar este sistema de reciclaje celular? La respuesta involucra principalmente a AMPK y mTORC1, dos proteínas que regulan el equilibrio energético y la autofagia. AMPK favorece el ahorro energético y la recuperación de los recursos, mientras que mTORC1 sostiene el crecimiento y la síntesis celular. En diversos modelos experimentales, la melatonina favorece la activación de AMPK y la reducción de la actividad de mTORC1. Este equilibrio permite modular la autofagia según las necesidades celulares, contribuyendo a la protección de los tejidos y al mantenimiento de la funcionalidad mitocondrial.

Emerge así el principio central del capítulo: la melatonina conecta la regulación del sueño con los mecanismos que mantienen el equilibrio energético y celular. Sus posibles aplicaciones terapéuticas siguen siendo objeto de investigación, pero su papel fisiológico parece mucho más amplio que la simple inducción del sueño.

Referencias

[1] Comprehensive review of melatonin as a promising nutritional and nutraceutical supplement

Kamfar et al., 2024

Heliyon. 2024;10(2):e24266.

[2] Melatonin: beyond circadian regulation— exploring its diverse physiological roles and therapeutic potential

Jia et al., 2025

Sleep Medicine Reviews. 2025;82:102123.

[3] Melatonin, Brain Aging and Neuroprotection: New Evidence on the Role of a Potent Anti-Aging Modulator

Bocheva et al., 2024

International Journal of Molecular Sciences. 2024;25(10):5122.

[4] Melatonin and Mitochondrial Neuroprotection: New Therapeutic Perspectives in Neurodegenerative Diseases

Bao et al., 2026

Biology (Basel). 2026;15(2):189.

[5] Dual Sources of Melatonin and Evidence Supporting Distinct Primary Functions

Reiter et al., 2024

Frontiers in Endocrinology. 2024;15:1414463.

[6] Melatonin Supplementation: New Perspectives on Health and Disease

Minari e Pisani, 2025

Sleep and Breathing. 2025;29(2):169.

[7] The Effects of Melatonin Supplementation on Sleep Quality: A Systematic Review and Meta-Analysis of Randomized Controlled Trials

Fatemeh et al., 2022

Journal of Neurology. 2022;269(1):205-216.

[8] Effect of Melatonin on Insomnia and Daytime Sleepiness in Patients with Obstructive Sleep Apnea and Insomnia (COMISA): A Randomized Double-Blind Placebo-Controlled Trial

Motlaq et al., 2024

Journal of Pharmaceutical Health Care and Sciences. 2024;10(1):25.

[9] The Effect of Melatonin on Sleep Quality and Daytime Sleepiness in Parkinson's Disease: A Systematic Review and Meta-Analysis of Placebo-Controlled Randomized Trials

Zrineh et al., 2025

Sleep Medicine. 2025;131:106540.

[10] Use of Melatonin in Children with Neurodevelopmental Disorders and Impaired Sleep (MENDS): A Randomised, Double-Blind, Placebo-Controlled Parallel Study

Appleton et al., 2012

Health Technology Assessment. 2012;16(40):i-239.

[11] Improving Sleep Quality and Quantity in Hospitalized Patients with Melatonin: A Quality Improvement Project at HCA Oak Hill Hospital

Ren et al., 2025

Cureus. 2025;17(12):e100510.

[12] Sleep Well. Untangling the Role of Melatonin MT1 and MT2 Receptors in Sleep

Gobbi e Comai, 2019

Journal of Pineal Research. 2019;66(3):e12544.

[13] Differential Function of Melatonin MT1 and MT2 Receptors in REM and NREM Sleep

Gobbi e Comai, 2019

Frontiers in Endocrinology. 2019;10:87.

[14] Characterization of the Sleep-Wake Cycle in MT1/MT2 Double Knockout Mice and Comparison with MT1 and MT2 Receptor Knockout Mice

Comai et al., 2013

Behavioural Brain Research. 2013;243:231-238.

[15] Melatonin, Melatonin Receptors and Sleep: Beyond Traditional Views

Comai e Gobbi, 2024

Journal of Pineal Research. 2024;76(7):e13011.

[16] Exogenous Melatonin Neuroprotective Effect on Noradrenergic Neurons of the Locus Coeruleus Following REM Sleep Deprivation in Adult Male Rats

Jameie et al., 2019

Journal of Chemical Neuroanatomy. 2019;100:101656.

[17] Importance of the Locus Coeruleus-Norepinephrine System in Sleep-Wake Regulation: Implications for Aging and Alzheimer's Disease

Van Egroo et al., 2022

Sleep Medicine Reviews. 2022;62:101592.

[18] Chronic Sleep Restriction Causes Enduring Sleep-Wake Disturbances and Degeneration of Locus Coeruleus and Orexinergic Neurons

Zhu et al., 2016

Sleep. 2016;39(8):1601-1611.

[19] Selective Enhancement of REM Sleep in Male Rats by Melatonin MT1 Receptor Activation in Locus Coeruleus Noradrenergic Neurons

López-Canul et al., 2024

Journal of Neuroscience. 2024;44(29):e0914232024.

[20] When the Locus Coeruleus Wakes Up During Sleep: Recent Insights and Emerging Perspectives

Osorio-Forero et al., 2022

International Journal of Molecular Sciences. 2022;23(9):5028.

[21] Hypocretin (orexin) activation and synaptic innervation of the locus coeruleus noradrenergic system

Horvath et al., 1999

Journal of Comparative Neurology. 1999;415(2):145-159. <145::AID-CNE1>3.0.CO;2-2.

[22] Orexin A Activates Locus Coeruleus Cell Firing and Increases Arousal in the Rat

Hagan et al., 1999

Proceedings of the National Academy of Sciences of the United States of America. 1999;96(19):10911-10916.

[23] Hypocretin-1 Modulates Rapid Eye Movement Sleep Through Activation of the Locus Coeruleus Neurons

Bourgin et al., 2000

Journal of Neuroscience. 2000;20(20):7760-7765.

[24] The Neural Circuit of Orexin (Hypocretin): Maintaining Sleep and Wakefulness

Sakurai, 2007

Nature Reviews Neuroscience. 2007; 8(3):171-181.

[25] Orexin Neurons Suppress Narcolepsy via 2 Distinct Effector Pathways

Hasegawa et al., 2014

Journal of Clinical Investigation. 2014;124(2):604-616.

[26] Melatonin Inhibits Orexin Neurons in the Perifornical Lateral Hypothalamus and Promotes Non-Rapid Eye Movement Sleep in Mice

Sharma et al., 2018

Journal of Pineal Research. 2018;65(2):e12498.

[27] The Role of Orexin Neuronal Activity in Sleep-Wake Regulation

Hung e Yamanaka, 2023

Peptides. 2023;165:171007.

[28] Effectiveness of a Melatonin Receptor Agonist and Orexin Receptor Antagonists in Preventing Delirium Symptoms in Elderly Patients With Stroke: A Retrospective Study

Miyoshi et al., 2024

Journal of Pharmaceutical Health Care and Sciences. 2024;10(1):74.

[29] Update on Melatonin Receptors: IUPHAR Review 20

Jockers et al., 2016

British Journal of Pharmacology. 2016;173(18):2702-2725.

[30] Human Gastroenteropancreatic Expression of Melatonin and its MT1 and MT2 Receptors

Söderquist et al., 2015

PLoS One. 2015;10(3):e0120195.

[31] Melatonin Membrane Receptors in Peripheral Tissues: Distribution and Functions

Slominski et al., 2012

Molecular and Cellular Endocrinology. 2012;351(2):152-166.

[32] Melatonin Membrane Receptors in the Vascular System: Function, Modulation and Clinical Relevance

da Rocha-Carvalho et al., 2025

Journal of Pineal Research. 2025;77(6):e70090.

[33] Cellular Signaling of Melatonin and its Role in Metabolic Disorders

Tripathy e Bhattamisra, 2025

Molecular Biology Reports. 2025;52(1):193.

[34] Role of Melatonin in the Regulation of Autophagy and Mitophagy: A Review

Coto-Montes et al., 2012

Molecular and Cellular Endocrinology. 2012;361(1-2):12-23.

[35] Potential Therapeutic Actions of Melatonin in the Regulation of Autophagy: A Review

Boga et al., 2019

Journal of Pineal Research. 2019;66(1):e12534.

[36] Melatonin Prevents Chronic Intermittent Hypoxia-Induced Injury by Inducing Sirtuin 1-Mediated Autophagy in Steatotic Liver of Mice

Ren et al., 2019

Sleep and Breathing. 2019;23(3):825-836.

[37] Melatonin Induces Autophagy via Reactive Oxygen Species-Mediated Endoplasmic Reticulum Stress Pathway in Colorectal Cancer Cells

Chok et al., 2021

Molecules. 2021;26(16):5038.

[38] Potential Influence of Melatonin on Mitochondrial Quality Control: A Review

Lei et al., 2024

Frontiers in Pharmacology. 2024;14:1332567.

[39] Modulation of Autophagy by Melatonin and Its Receptors: Implications in Brain Disorders

Zhu et al., 2025

Acta Pharmacologica Sinica. 2025;46(3):525-538.

[40] Melatonin Induces Autophagy in Neuroblastoma by Alleviating Pak2-Mediated Endoplasmic Reticulum Stress

Qiu et al., 2026

Molecular Medicine Reports. 2026;33(2):74.

[41] Melatonin Improves Osteogenic Differentiation in a High-Glucose Environment by Activating NRF2 to Promote Autophagy Through Regulation of Macrophage–BMSC Crosstalk

Zhang et al., 2026

Inflammation Research. 2026;75(1):112.

[42] Exercise as a Metabolic Regulator: Targeting AMPK/mTOR-Autophagy Crosstalk in Sarcopenic Obesity

Zhang et al., 2026

Aging and Disease. 2026;17(4):1904–1915.

[43] New Developments in the Interplay Between AMPK and mTORC1

Smiles et al., 2024

Essays in Biochemistry. 2024;68(3):321-336.

[44] Contrasting Views on the Role of AMPK in Autophagy

Kim, 2024

BioEssays. 2024;46(3):e2300211.

[45] AMPK and Autophagy: The Dual Nature of an Energy Sensor in the Regulation of Cellular Survival

Mandic et al., 2025

American Journal of Physiology - Cell Physiology. 2025;329(5):C1380-C1397.

[46] Targeting the AMPK/mTOR Signaling Pathway in Atherosclerosis Management: The Ultimate Leverage

Al-Kuraishy et al., 2025

International Journal of Biological Macromolecules. 2025;309(Pt 2):142933.

[47] Melatonin Attenuates Vascular Calcification by Activating Autophagy via an AMPK/mTOR/ULK1 Signaling Pathway

Chen et al., 2020

Experimental Cell Research. 2020;389(1):111883.

[48] Melatonin Promotes Progesterone Secretion in Sheep Luteal Cells by Regulating Autophagy Through the AMPK/mTOR Pathway

Duan et al., 2024

Theriogenology. 2024;214:342-351.

[49] Melatonin Protects Rabbit Sperm During Cryopreservation by Reducing Oxidative Stress Through AMPK Activation

Zhu et al., 2019

Cryobiology. 2019;88:1-8.

[50] Melatonin Regulates Ovarian Activity and Delays Fertility Decline Through the MT1/AMPK Signaling Pathway

Zhang et al., 2019

Journal of Pineal Research. 2019;66(3):e12550.

[51] Melatonin Suppresses Milk Fat Synthesis Through MT1-Mediated Inhibition of mTOR Signaling in Bovine Mammary Epithelial Cells

Wang et al., 2019

Journal of Pineal Research. 2019;67(3):e12593.