
Scientific Book

Melatonin und die Koordination biologischer Rhythmen

Melatonin ist ein Hormon, das hauptsächlich in der Zirbeldrüse produziert wird und eine grundlegende Rolle bei der Regulierung der zirkadianen Rhythmen sowie des Schlaf-Wach-Zyklus spielt. Neben seiner chronobiologischen Funktion untersucht die Forschung seine antioxidativen Eigenschaften sowie mögliche Wechselwirkungen mit Entzündungsprozessen, dem Energiestoffwechsel und der mitochondrialen Funktion. Im Buch „La scelta di Vivere in Salute o in Malattia“ (Die Entscheidung für ein Leben in Gesundheit oder Krankheit) vertiefen Dr. A. Colonnese und R. Panzironi diese Mechanismen und unterscheiden dabei zwischen gesicherten Funktionen und Anwendungen, die noch Gegenstand aktueller Forschung sind.

Diesen Artikel zitieren
Colonnese, A. & Panzironi, R. (2026). Melatonin und die Koordination biologischer Rhythmen. Die Entscheidung, gesund oder krank zu leben. https://lifesciencehub.info/de/la-scelta-di-vivere-in-salute-o-in-malattia/melatonin-und-die-koordination-biologischer-rhythmen
Die Entscheidung, gesund oder krank zu leben · ISBN 979-12-82692-06-9

DOI lsh.de.libro.28

  • Veröffentlichung 05/11/2026
  • Aktualisierung 05/11/2026
  • MELATONIN
  • MT1-REZEPTOR
  • ZIRKADIANE RHYTHMEN
  • OREXIN
  • LOCUS COERULEUS
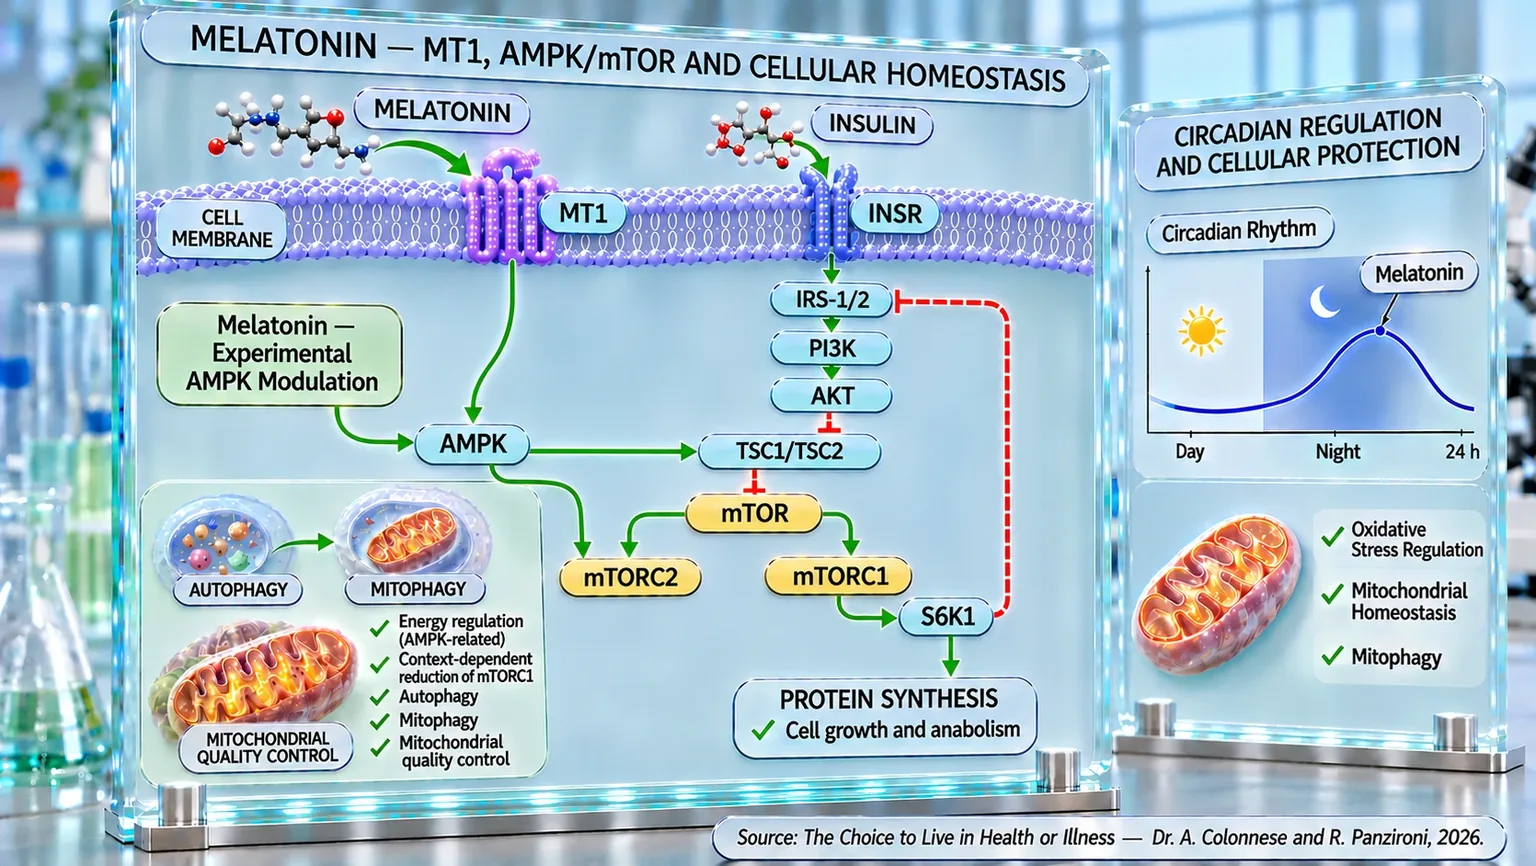
Molekulare Infografik mit Zellmembran, MT1- und INSR-Rezeptoren, AMPK-mTOR-Kaskade und zirkadianem Melatonin-Diagramm.
Schema der Verbindungen zwischen Melatonin, dem MT1-Rezeptor, AMPK und dem Insulin-Signalweg INSR–IRS-1/2–PI3K–AKT, mit Regulierung von TSC1/TSC2, mTORC1/2, S6K1, Proteinsynthese, Autophagie und Mitophagie. Der danebenstehende Kasten zeigt den nächtlichen Melatonin-Peak und verknüpft den zirkadianen Rhythmus mit der mitochondrialen Homöostase, der Kontrolle von oxidativem Stress und dem Zellschutz.

ABSTRACT

Melatonin, das hauptsächlich von der Zirbeldrüse sowie von peripheren Geweben synthetisiert wird, koordiniert zirkadiane Rhythmen und zelluläre Schutzprozesse. Im Buch „La scelta di Vivere in Salute o in Malattia“ vertiefen Dr. A. Colonnese und R. Panzironi ihre Funktionen bei der Schlafregulierung, der Immunmodulation und der Energiehomöostase. Die antioxidativen und entzündungshemmenden Eigenschaften sowie die Unterstützung der Mitochondrienfunktion deuten auf eine physiologische Rolle hin, die weit über die bloße Erleichterung des Einschlafens hinausgeht.

Die Signalübertragung über den MT1-Rezeptor trägt zur zirkadianen Synchronisation und laut experimentellen Studien zur Organisation der Schlafphasen bei. Im Locus coeruleus kann die Aktivierung von MT1 die noradrenerge Aktivität reduzieren, die während des Wachzustands normalerweise hoch ist und im REM-Schlaf stark abgeschwächt wird. Orexin, das im lateralen Hypothalamus produziert wird, unterstützt hingegen die Wachheit und die Freisetzung von Noradrenalin. Weitere experimentelle Beobachtungen legen nahe, dass Melatonin die orexinergen Neuronen direkt modulieren und so den Non-REM-Schlaf fördern kann. Das Vorhandensein von MT1 auch in Bauchspeicheldrüse, Darm, Gefäßen und Immunzellen verbindet diese Signale mit peripheren Stoffwechsel- und Entzündungsprozessen.

Klinische Studien berichten von Verbesserungen der Schlafqualität und der Einschlaflatenz, wobei die Ergebnisse bei Erwachsenen mit Schlafstörungen, Parkinson-Patienten, Kindern mit neurologischen Entwicklungsstörungen und im Krankenhausumfeld variieren. Parallel dazu beschreiben präklinische Studien Effekte auf den Schutz der Mitochondrien und die Regulierung der Autophagie, einschließlich der Mitophagie. In verschiedenen Modellen fördert Melatonin die Aktivierung von AMPK und begrenzt mTORC1, wodurch das Recycling zellulärer Komponenten moduliert wird; einige Tumormodelle deuten zudem auf eine Beteiligung der Autophagie am Zelltod von Neoplasien hin.

Insgesamt integriert Melatonin Wachheitskreisläufe, zirkadiane Signale und Mechanismen der zellulären Instandhaltung. Die Erkenntnisse zum Schlaf erlauben es jedoch nicht, experimentelle molekulare Ergebnisse automatisch auf den Menschen zu übertragen. Die Forschung muss klären, unter welchen Bedingungen die Modulation von MT1, AMPK und mTORC1 über die bereits beobachteten Effekte auf die nächtliche Ruhe hinaus in dokumentierbare klinische Vorteile übersetzt werden kann.

Ihre Eigenschaften

Melatonin ist ein Molekül, das viele Jahre lang fast ausschließlich als Schlafhormon betrachtet wurde. Diese Definition ist zwar korrekt, greift heute jedoch viel zu kurz. Forschungen der letzten Jahrzehnte haben gezeigt, dass Melatonin eines der vielseitigsten Moleküle des menschlichen Körpers ist. Es ist an einem weiten Netzwerk biologischer Prozesse beteiligt, die von der Regulierung der zirkadianen Rhythmen bis zum Zellschutz, von der Kontrolle von Entzündungen bis zur Aufrechterhaltung des Energiegleichgewichts und bis hin zur Wahrung der Integrität des Nervensystems und der Mitochondrien reichen (Kamfar et al., 2024) [1].

Chemisch gesehen ist Melatonin ein Indolamin, eine Aminosäure, die aus Tryptophan über eine Reihe von Reaktionen gewonnen wird, an denen Serotonin als Zwischenprodukt beteiligt ist. Obwohl die Zirbeldrüse das Hauptorgan für seine systemische Sekretion darstellt, wissen wir heute, dass seine Synthese nicht auf das Gehirn beschränkt ist. Zahlreiche Gewebe, darunter der Magen-Darm-Trakt, die Netzhaut, das Immunsystem, das Knochenmark und andere periphere Bereiche, sind in der Lage, Melatonin lokal zu produzieren. Dies deutet darauf hin, dass dieses Molekül weitaus umfassendere Funktionen erfüllt als die bloße Synchronisation des Schlaf-Wach-Rhythmus (Jia et al., 2025) [2].

Um die Bedeutung von Melatonin zu verstehen, kann man sich den Organismus wie eine große Stadt vorstellen, die ständig Ordnung, Kommunikation und Anpassungsfähigkeit aufrechterhalten muss. In dieser Analogie ist Melatonin nicht nur die Uhr, die die Ankunft der Nacht signalisiert, sondern auch ein hochspezialisiertes Wartungsteam, das die zelluläre Infrastruktur schützt, Notfallmaßnahmen koordiniert und die durch tägliche Abnutzung verursachten Schäden begrenzt.

Eine der am besten untersuchten Eigenschaften von Melatonin ist seine antioxidative Wirkung. Während des normalen Zellstoffwechsels werden ständig hochreaktive Moleküle produziert, die als reaktive Sauerstoffspezies (ROS) und reaktive Stickstoffspezies (RNS) bekannt sind. In physiologischen Mengen erfüllen diese Substanzen wichtige Signalfunktionen; wenn ihre Produktion jedoch die Abwehrkapazität des Organismus übersteigt, können sie Proteine, Lipide, Zellmembranen und DNA schädigen. Melatonin besitzt die außergewöhnliche Fähigkeit, diesem Phänomen durch mehrere gleichzeitige Mechanismen entgegenzuwirken. Es neutralisiert direkt zahlreiche freie Radikale und stimuliert gleichzeitig die Aktivität der wichtigsten endogenen antioxidativen Systeme, darunter Superoxid-Dismutase, Katalase und Glutathionperoxidase (Kamfar et al., 2024) [1]; (Bocheva et al., 2024) [3]; (Jia et al., 2025) [2].

Was Melatonin im Vergleich zu anderen Antioxidantien besonders effektiv macht, ist die Tatsache, dass seine Aktivität nicht nach der Neutralisierung einer einzelnen reaktiven Spezies endet. Während des Entgiftungsprozesses entstehen biologisch aktive Metaboliten wie AFMK (eine Substanz, die durch den Abbau von Melatonin entsteht) und AMK, die ihrerseits antioxidative Eigenschaften beibehalten. So entsteht eine echte Schutzkaskade, die in der Lage ist, die Wirkungen des ursprünglichen Moleküls zu verstärken und zu verlängern (Bocheva et al., 2024) [3].

Ein weiteres grundlegendes Merkmal ist seine hohe Lipophilie (die Fähigkeit einer Substanz, sich in Fetten zu lösen). Dank dieser Eigenschaft durchdringt Melatonin leicht Zellmembranen und erreicht Kompartimente, die normalerweise schwer zu schützen sind, wie den Zellkern und vor allem die Mitochondrien. Diese Fähigkeit ist besonders wichtig, da die Mitochondrien der Hauptort der Produktion freier Radikale innerhalb der Zelle sind. Das Vorhandensein von Melatonin in der Nähe der Quelle des oxidativen Stresses ermöglicht ein schnelles und effektives Eingreifen, wodurch der Schaden begrenzt wird, bevor er sich ausbreiten kann (Kamfar et al., 2024) [1]; (Bao et al., 2026) [4]; (Reiter et al., 2024) [5].

In den letzten Jahren ist eine noch faszinierendere Sicht auf die Physiologie von Melatonin entstanden. Lange Zeit nahm man an, dass die Zirbeldrüse die Hauptquelle des Moleküls sei. Heute deuten jedoch zahlreiche Hinweise darauf hin, dass der Großteil des im Körper produzierten Melatonins aus lokalen Synthesen innerhalb peripherer Gewebe und wahrscheinlich direkt in den Mitochondrien stammen könnte. Nach diesem Modell würde das Zirbeldrüsen-Melatonin hauptsächlich als endokrines Signal zur zeitlichen Synchronisation des Organismus fungieren, während das intrazelluläre Melatonin vor allem metabolische, antioxidative und zytoprotektive Funktionen erfüllen würde (Reiter et al., 2024) [5].

Die biologische Bedeutung dieses Moleküls erscheint bei der Betrachtung seiner Evolutionsgeschichte noch deutlicher. Phylogenetische Analysen legen nahe, dass die Fähigkeit zur Synthese von Melatonin lange vor der Entwicklung komplexer Organismen auftrat, wahrscheinlich bei primitiven Prokaryoten, die vor Milliarden von Jahren die Erde bevölkerten. In einer Umgebung, die durch steigende Sauerstoffkonzentrationen und eine daraus resultierende Produktion reaktiver Spezies gekennzeichnet war, stellte Melatonin ein grundlegendes Verteidigungsinstrument dar. Diese antioxidative Funktion scheint daher dem zirkadianen Rollenbild, das heute gemeinhin mit dem Hormon assoziiert wird, weit vorauszugehen (Reiter et al., 2024) [5].

Neben der antioxidativen Aktivität besitzt Melatonin relevante entzündungshemmende Eigenschaften. Entzündungen sind ein wesentlicher Mechanismus für das Überleben des Organismus, aber wenn sie chronisch werden, können sie zur Entstehung zahlreicher Krankheiten beitragen. Melatonin greift ein, indem es verschiedene zentrale Knotenpunkte der Entzündungsreaktion moduliert. Von besonderer Bedeutung ist dabei der Transkriptionsfaktor NF-κB, der als einer der Hauptregulatoren für die Expression proinflammatorischer Gene gilt. Durch die Hemmung dieses Signalwegs reduziert Melatonin die Produktion von Mediatoren wie TNF-α, IL-1β und IL-6 und trägt so dazu bei, die Verstärkung der Entzündungsreaktion zu begrenzen (Kamfar et al., 2024) [1]; (Jia et al., 2025) [2]; (Bocheva et al., 2024) [3].

Seine Wirkungen beschränken sich jedoch nicht auf systemische Entzündungen. Verschiedene Studien haben die Fähigkeit von Melatonin hervorgehoben, die Aktivität von Immunzellen zu modulieren, die Zytokinproduktion zu beeinflussen und zur Aufrechterhaltung des Gleichgewichts zwischen Immunaktivierung und Toleranz beizutragen. Spezifische Rezeptoren für Melatonin wurden in Leukozyten, Lymphozyten, Knochenmarkzellen und zahlreichen anderen Immunzellpopulationen identifiziert, was die Rolle des Moleküls als wichtigen Regulator der Immunfunktion bestätigt (Kamfar et al., 2024) [1].

Besonders interessant ist die sogenannte Immun-Zirbeldrüsen-Achse. Bei einem Entzündungsprozess neigt die Produktion von Melatonin in der Zirbeldrüse dazu, sich zu verringern, während gleichzeitig die lokale Synthese durch Makrophagen und andere Immunzellen am Entzündungsort zunimmt. Dieser Mechanismus ermöglicht es, die Produktion des Moleküls genau dort zu konzentrieren, wo es am meisten benötigt wird, was die Auflösung des Entzündungsprozesses und den Schutz der betroffenen Gewebe begünstigt (Reiter et al., 2024) [5].

Die zytoprotektiven Eigenschaften von Melatonin erstrecken sich zudem auf die Aufrechterhaltung der mitochondrialen Funktionalität. Neben der Neutralisierung freier Radikale trägt das Molekül dazu bei, das mitochondriale Membranpotenzial zu bewahren, verbessert die ATP-Produktion, reguliert die Prozesse der mitochondrialen Fusion und Fission und beteiligt sich an der Kontrolle der Mitophagie, dem System, durch das die Zelle beschädigte Mitochondrien eliminiert. Dank dieser Wirkungen trägt Melatonin dazu bei, das zelluläre Energiekraftwerk effizient zu halten und das Risiko einer Ansammlung metabolischer Schäden im Laufe der Zeit zu verringern (Bao et al., 2026) [4]; (Bocheva et al., 2024) [3]; (Jia et al., 2025) [2].

Die Gesamtheit dieser Eigenschaften hat Forscher dazu veranlasst, Melatonin als pleiotropes Molekül zu betrachten, das heißt als ein Molekül, das in der Lage ist, gleichzeitig zahlreiche biologische Systeme zu beeinflussen. Seine Wirkungen umfassen die Regulierung zirkadianer Rhythmen, die Kontrolle von oxidativem Stress, die Modulation von Entzündungen, die Aufrechterhaltung der Energiehomöostase, den Schutz des Nervensystems und die Regulierung der Immunantwort. Mit anderen Worten: Melatonin agiert nicht als einfaches Hormon, das auf eine einzige Funktion spezialisiert ist, sondern als biologischer Koordinator, der in der Lage ist, scheinbar entfernte Prozesse miteinander zu verbinden und so zur Aufrechterhaltung des Gleichgewichts des gesamten Organismus beizutragen (Minari und Pisani, 2025) [6].

Melatonin und Schlaf

Von allen Funktionen, die dem Melatonin zugeschrieben werden, ist die schlaffördernde Wirkung zweifellos die bekannteste. Es wäre jedoch zu kurz gegriffen, Melatonin lediglich als ein Hormon zu bezeichnen, das das Einschlafen erleichtert. Wissenschaftliche Erkenntnisse zeigen vielmehr, dass dieses Molekül eine weitaus komplexere Rolle spielt, indem es zur Regulierung der gesamten Schlafarchitektur und zur Synchronisation der biologischen Rhythmen beiträgt, die den Wechsel zwischen Wachzustand und Ruhe steuern.

Um seine Funktion zu verstehen, ist es hilfreich, sich den Schlaf wie ein Orchester vorzustellen, das aus zahlreichen Musikern besteht. Jedes Instrument repräsentiert ein anderes physiologisches System: das Gehirn, den Stoffwechsel, das endokrine System, das Immunsystem und das vegetative Nervensystem. Melatonin erzeugt die Musik nicht direkt, sondern fungiert als Dirigent, der den exakten Zeitpunkt koordiniert, an dem jeder Abschnitt einsetzen muss. Wenn diese Koordination nachlässt, wird der Schlaf tendenziell fragmentierter, weniger effizient und weniger regenerativ.

Die in den letzten Jahren gesammelten klinischen Belege bestätigen diese Interpretation immer überzeugender. Eine umfangreiche systematische Übersichtsarbeit mit Meta-Analyse, die dreiundzwanzig randomisierte kontrollierte klinische Studien umfasste, hat gezeigt, dass eine Melatonin-Supplementierung die allgemeine Schlafqualität bei Erwachsenen signifikant verbessert. Die Vorteile wurden bei zahlreichen klinischen Erkrankungen beobachtet, wobei die Effekte bei Personen mit Atemwegserkrankungen, Stoffwechselstörungen und primären Schlafstörungen besonders deutlich waren. Die Analyse zeigte zudem eine signifikante Verringerung der Werte im Pittsburgh Sleep Quality Index, was auf eine klinisch relevante Verbesserung der wahrgenommenen Qualität der nächtlichen Ruhe hindeutet. Einer der interessantesten Aspekte dieser Meta-Analyse ist die Tatsache, dass sich die Verbesserung nicht nur auf einen einzelnen Schlafparameter bezieht. Melatonin scheint gleichzeitig auf mehrere Dimensionen der nächtlichen Ruhe einzuwirken, indem es ein schnelleres Einschlafen, eine bessere Schlafkontinuität und eine Verringerung der nächtlichen Fragmentierung begünstigt. Dies deutet darauf hin, dass seine Rolle nicht auf die Schlafinduktion beschränkt ist, sondern die gesamte zeitliche Organisation der Ruhe umfasst (Fatemeh et al., 2022) [7].

Eine besonders interessante Bestätigung kommt von Patienten mit COMISA, einem Zustand, der durch das gleichzeitige Auftreten von chronischer Insomnie und obstruktiver Schlafapnoe gekennzeichnet ist. Diese Kombination ist in der klinischen Praxis sehr häufig und stellt eine der komplexesten Formen von Schlafstörungen dar. Die ständigen Mikro-Erwachungen durch Apnoe-Episoden beeinträchtigen die Schlafqualität tiefgreifend, während die Insomnie ihrerseits zur Verschlechterung der Schlafstabilität beiträgt. In einer randomisierten, placebokontrollierten Studie führte die Verabreichung von 10 mg Melatonin über vier Wochen zu einer deutlichen Verbesserung der Schlafqualität, einer signifikanten Verringerung des Schweregrads der Insomnie und einer Abnahme der Tagesmüdigkeit. Die Patienten zeigten zudem eine bessere Therapietreue bei der CPAP-Behandlung, was für die Kontrolle der nächtlichen Apnoen besonders wichtig ist (Motlaq et al., 2024) [8].

Diese Ergebnisse sind besonders relevant, da sie zeigen, dass Melatonin nicht ausschließlich während der Nacht wirkt. Durch die Verbesserung der Schlafqualität erzielt es auch tagsüber positive Effekte, indem es Müdigkeit reduziert, die Wachsamkeit verbessert und eine bessere Leistungsfähigkeit bei täglichen Aktivitäten fördert. Mit anderen Worten: Der Nutzen besteht nicht nur darin, besser zu schlafen, sondern auch darin, während der Wachstunden besser zu leben.

Eine weitere Bevölkerungsgruppe, bei der Melatonin auf großes Interesse gestoßen ist, sind Patienten mit Parkinson-Krankheit. Schlafstörungen stellen eine der häufigsten nicht-motorischen Manifestationen der Krankheit dar und können viele Jahre vor den typischen motorischen Veränderungen auftreten. Eine aktuelle Meta-Analyse, die randomisierte kontrollierte Studien einschloss, hat gezeigt, dass Melatonin die Schlafqualität bei Parkinson-Patienten signifikant verbessert und die Tagesmüdigkeit reduziert. Die besten Ergebnisse wurden bei Dosierungen von über 4 mg, mit schnell freisetzenden Formulierungen und bei Behandlungen von relativ kurzer Dauer beobachtet. Die Daten deuten zudem darauf hin, dass das therapeutische Ansprechen sowohl von der verwendeten Dosis als auch von den pharmakokinetischen Eigenschaften der eingesetzten Formulierung abhängen kann (Zrineh et al., 2025) [9].

Die Belege für Melatonin betreffen nicht nur die erwachsene Bevölkerung. Bei Kindern mit neurologischen Entwicklungsstörungen, einschließlich Autismus, geistigen Behinderungen und anderen neurologischen Erkrankungen, stellen Einschlafprobleme eine der Hauptursachen für Stress für das Kind und das gesamte familiäre Umfeld dar. Die MENDS-Studie, eine der größten randomisierten kontrollierten Studien im pädiatrischen Bereich, hat gezeigt, dass schnell freisetzendes Melatonin die zum Einschlafen benötigte Zeit signifikant verkürzt. Im Durchschnitt schliefen die behandelten Kinder etwa fünfundvierzig Minuten früher ein als die Probanden, die ein Placebo erhielten. Der Anstieg der Gesamtschlafdauer fiel bescheidener aus, was darauf hindeutet, dass der Haupteffekt von Melatonin eher mit dem Einleiten des Schlafs als mit dessen Verlängerung zusammenhängt (Appleton et al., 2012) [10].

Diese Beobachtung ist besonders wichtig, da sie hilft, die wahre physiologische Natur von Melatonin zu verstehen. Im Gegensatz zu herkömmlichen Schlafmitteln, die dazu neigen, den Organismus in einen Zustand der Sedierung zu zwingen, scheint Melatonin das korrekte Einleiten der biologischen Prozesse zu erleichtern, die natürlicherweise zum Schlaf führen. Sobald dieser Prozess begonnen hat, hängen die Aufrechterhaltung und die Tiefe der Ruhe von zahlreichen anderen neurobiologischen Systemen ab.

Ähnliche Vorteile wurden auch im Krankenhausumfeld beobachtet. Ein Krankenhausaufenthalt stellt aufgrund von Lärm, pflegerischen Maßnahmen, Schmerzen, psychischem Stress und Störungen der normalen zirkadianen Rhythmen eine besonders ungünstige Bedingung für den Schlaf dar. Eine Studie an hospitalisierten Patienten zeigte, dass die abendliche Verabreichung von Melatonin die Schlafdauer signifikant verbessert, die Einschlafzeit verkürzt, die Anzahl der nächtlichen Erwachen verringert und die subjektive Qualität der Ruhe erhöht. Diese Ergebnisse sind von besonderer Bedeutung, wenn man bedenkt, dass der Schlaf eines der wichtigsten Instrumente ist, mit denen der Organismus die Erholungs- und Heilungsprozesse während einer Krankheit unterstützt (Ren et al., 2025) [11].

Betrachtet man die verfügbaren Belege in ihrer Gesamtheit, ergibt sich ein äußerst konsistentes Bild. Melatonin sollte nicht einfach als eine Substanz betrachtet werden, die den Schlaf induziert, sondern als ein biologischer Regulator, der in der Lage ist, vielfältige Aspekte der nächtlichen Ruhe zu koordinieren. Seine Wirkungen werden bei sehr unterschiedlichen Bevölkerungsgruppen beobachtet – bei Personen mit Insomnie, Patienten mit obstruktiver Schlafapnoe, Menschen mit Parkinson-Krankheit, Kindern mit neurologischen Entwicklungsstörungen und hospitalisierten Patienten –, was auf die Existenz eines gemeinsamen physiologischen Mechanismus hindeutet. In all diesen Kontexten scheint Melatonin eine bessere Synchronisation der Prozesse zu begünstigen, die den Übergang vom Wachzustand zum Schlaf steuern, und trägt dazu bei, die Ruhe stabiler, effizienter und regenerativer zu gestalten.

Die MT1-Rezeptoren

Das Verständnis der Physiologie von Melatonin bedeutet auch, die Mechanismen zu verstehen, durch die dieses Molekül mit den Zellen kommuniziert. Wie jedes Hormon oder Signalmolekül agiert Melatonin nämlich nicht allein. Um seine Wirkung zu entfalten, muss es von spezifischen zellulären Strukturen erkannt werden, die in der Lage sind, die Botschaft zu interpretieren und in eine biologische Antwort zu übersetzen. Diese Strukturen sind die Melatoninrezeptoren, die hauptsächlich in den Subtypen MT1 und MT2 identifiziert wurden.

Viele Jahre lang nahm man an, dass beide Rezeptoren im Wesentlichen überlappende Funktionen erfüllen. Neuere Forschungen haben jedoch eine weitaus komplexere Realität offenbart. Obwohl MT1 und MT2 durch dasselbe Molekül aktiviert werden, scheinen sie an unterschiedlichen und in einigen Fällen sogar gegensätzlichen Prozessen beteiligt zu sein. Diese Entdeckung hat das Verständnis der Neurobiologie des Schlafs grundlegend verändert und neue therapeutische Perspektiven für die Behandlung von Störungen des Schlaf-Wach-Rhythmus eröffnet (Gobbi und Comai, 2019) [12]; (Gobbi und Comai, 2019) [13]; (Comai und Gobbi, 2024) [15].

Der MT1-Rezeptor gehört zur Familie der G-Protein-gekoppelten Rezeptoren (Proteine, die Signale in das Zellinnere übertragen) und wird in zahlreichen Gehirnarealen exprimiert, die an der Regulierung des Schlafs und der zirkadianen Rhythmen beteiligt sind. Sein Vorkommen wurde im Nucleus suprachiasmaticus (einem kleinen Bereich des Gehirns im Hypothalamus), der wichtigsten biologischen Uhr des Organismus, aber auch im lateralen Hypothalamus, in der Brücke (Pons), in der Amygdala und im Hippocampus nachgewiesen. Diese anatomische Verteilung legt nahe, dass MT1 nicht einfach nur an der Aufnahme des melatoninergen Signals beteiligt ist, sondern direkt an der neurobiologischen Organisation des Schlafs mitwirkt (Comai und Gobbi, 2024) [15].

Um die Rolle dieses Rezeptors zu verstehen, kann man sich Melatonin als eine Nachricht vorstellen, die jeden Abend von der zentralen biologischen Uhr gesendet wird. Der MT1-Rezeptor stellt einen der Hauptempfänger dieser Nachricht dar. Wenn er aktiviert wird, werden eine Reihe von zellulären und neuronalen Veränderungen ausgelöst, die das Gehirn schrittweise auf den Übergang vom Wachzustand in den Schlaf vorbereiten.

Die ersten Hinweise auf die spezifische Rolle von MT1 ergaben sich aus Studien an genetisch veränderten Tiermodellen. Durch die selektive Ausschaltung des Gens, das für die Produktion des Rezeptors verantwortlich ist, konnten die Forscher beobachten, welche Konsequenzen dessen Abwesenheit hat. Die Ergebnisse zeigten, dass Mäuse ohne den MT1-Rezeptor eine signifikante Reduktion des REM-Schlafs aufweisen – jener Schlafphase, die mit intensiver Traumaktivität, Gedächtniskonsolidierung und Emotionsregulation assoziiert ist (Comai et al., 2013) [14].

Diese Beobachtung wurde noch bedeutsamer, als die Forscher die elektrische Gehirnaktivität während des Schlafs analysierten. Bei Tieren ohne MT1 wurde tatsächlich eine Verringerung der Theta-Oszillationen (rhythmische elektrische Wellen, die von den Neuronen des Gehirns erzeugt werden) während des REM-Schlafs dokumentiert. Theta-Wellen stellen eine der wichtigsten neurophysiologischen Signaturen dieser Schlafphase dar und sind an Prozessen der Gedächtniskonsolidierung sowie der Reorganisation der tagsüber erworbenen Informationen beteiligt. Ihre Verringerung deutet darauf hin, dass MT1 nicht nur die Menge des REM-Schlafs beeinflusst, sondern auch die funktionelle Qualität dieser Phase (Comai et al., 2013) [14].

Die anschließend gesammelten Erkenntnisse haben die Hypothese zunehmend gestärkt, dass der MT1-Rezeptor eine grundlegende Rolle bei der Stabilisierung des REM-Schlafs spielt. Verschiedene Literaturübersichten haben hervorgehoben, dass die Aktivierung von MT1 mit der Konsolidierung der REM-Phasen und der Modulation der neuronalen Schaltkreise assoziiert ist, die deren Auftreten und Aufrechterhaltung im Laufe der Nacht regulieren (Gobbi und Comai, 2019) [12]; (Gobbi und Comai, 2019) [13]; (Comai und Gobbi, 2024) [15].

Ein weiterer Aspekt von großem Interesse betrifft die Beziehung zwischen MT1 und der zirkadianen Regulation. Zahlreiche Belege deuten darauf hin, dass dieser Rezeptor an den Mechanismen beteiligt ist, durch die der Nucleus suprachiasmaticus die biologischen Funktionen des Organismus mit dem Hell-Dunkel-Zyklus der Umgebung synchronisiert. Mit anderen Worten: MT1 könnte eine der wichtigsten Verbindungsstellen zwischen den zeitlichen Informationen aus der Umwelt und der internen Organisation des Schlafs darstellen (Gobbi und Comai, 2019) [13]; (Comai und Gobbi, 2024) [15].

Die Beobachtungen aus den Knockout-Modellen untermauern diese Interpretation zusätzlich. Tiere ohne MT1 zeigen nämlich nicht nur Veränderungen des REM-Schlafs, sondern auch eine stärkere Fragmentierung des Schlafs, eine verringerte Kontinuität der Ruhephasen und eine geringere Stabilität der zirkadianen Organisation. Diese Ergebnisse legen nahe, dass der Rezeptor zur Aufrechterhaltung einer stabilen und physiologisch effizienten Schlafstruktur beiträgt (Comai und Gobbi, 2024) [15].

Aus therapeutischer Sicht haben diese Entdeckungen besonders interessante Perspektiven eröffnet. Die meisten derzeit verfügbaren Präparate aktivieren gleichzeitig MT1 und MT2. Wenn die beiden Rezeptoren jedoch unterschiedliche Funktionen erfüllen, wird es plausibel, sich Medikamente vorzustellen, die selektiv auf nur eines der beiden Ziele wirken können. In dieser Hinsicht könnten spezifische MT1-Agonisten bei Erkrankungen nützlich sein, die durch Veränderungen des REM-Schlafs, Schlaffragmentierung und Schwierigkeiten beim Einleiten der physiologischen Prozesse, die zum nächtlichen Ruhen führen, gekennzeichnet sind (Gobbi und Comai, 2019) [12]; (Gobbi und Comai, 2019) [13]; (Comai und Gobbi, 2024) [15].

Insgesamt zeichnen die verfügbaren Erkenntnisse den MT1-Rezeptor als weit mehr als einen einfachen Vermittler der Melatoninwirkungen aus. Er erscheint als ein hochkomplexer neurobiologischer Regulator, der das zeitliche Signal der Nacht mit der Organisation der Schlafphasen, der Stabilität der Wachheit und der Kontrolle der am REM-Schlaf beteiligten neuronalen Schaltkreise verbindet. Diese moderne Sichtweise ermöglicht es zu verstehen, dass Melatonin nicht einfach nur den Schlaf induziert, sondern ein komplexes Netzwerk biologischer Signale orchestriert, die das Gehirn und den Organismus auf die nächtliche Ruhe vorbereiten.

Der Locus coeruleus und Noradrenalin

Um vollständig zu verstehen, wie Melatonin den Schlaf beeinflusst, ist es notwendig, eines der wichtigsten neurobiologischen Systeme zu untersuchen, das an der Regulierung der Wachsamkeit beteiligt ist: das Locus-coeruleus-Noradrenalin-System. Wenn man sich Melatonin als das Signal vorstellen kann, das den Einbruch der Nacht ankündigt, so stellt der Locus coeruleus eines der wichtigsten Gehirnzentren dar, das darüber entscheidet, wie wach, aufmerksam und reaktionsbereit das Gehirn gegenüber Umgebungsreizen bleiben soll.

Der Locus coeruleus ist ein kleiner Kern im Hirnstamm, der trotz seiner geringen Größe einen außerordentlich großen Einfluss auf das gesamte Zentralnervensystem ausübt. Seine Neuronen produzieren Noradrenalin, einen Neurotransmitter, der für Aufmerksamkeit, Wachsamkeit, Gedächtnis, Stressreaktion und die Aufrechterhaltung des Wachzustands von grundlegender Bedeutung ist. In den letzten Jahrzehnten hat sich gezeigt, dass das Locus-coeruleus-Noradrenalin-System einer der Hauptregulatoren des Schlaf-Wach-Rhythmus ist und nicht nur zur Aufrechterhaltung der Wachsamkeit beiträgt, sondern auch an der Organisation der verschiedenen Schlafphasen beteiligt ist (Van Egroo et al., 2022) [17].

Elektrophysiologische Aufzeichnungen haben gezeigt, dass die Aktivität der Neuronen im Locus coeruleus im Laufe des Tages kontinuierlich schwankt. Während des aktiven Wachzustands ist die Entladungsfrequenz hoch, was es dem Gehirn ermöglicht, ein hohes Maß an Aufmerksamkeit und Reaktionsfähigkeit aufrechtzuerhalten. Mit dem Herannahen des Schlafs nimmt die noradrenerge Aktivität progressiv ab und erreicht während des Non-REM-Schlafs noch niedrigere Werte. Die Situation ändert sich radikal während des REM-Schlafs, wenn die Neuronen des Locus coeruleus fast vollständig verstummen und die extrazellulären Noradrenalinspiegel auf die niedrigsten Werte sinken, die im gesamten Schlaf-Wach-Zyklus beobachtet werden können (Van Egroo et al., 2022) [17].

Viele Jahre lang glaubte man, der Locus coeruleus sei während des Schlafs einfach „ausgeschaltet“. Moderne Technologien zur Überwachung von Noradrenalin haben diese Sichtweise jedoch grundlegend verändert. Heute wissen wir, dass das noradrenerge System während des Non-REM-Schlafs durch extrem präzise rhythmische Oszillationen weiterarbeitet, die zur Organisation der Schlafarchitektur beitragen. Die Noradrenalinspiegel steigen und fallen zyklisch alle dreißig bis fünfzig Sekunden und synchronisieren sich mit grundlegenden Phänomenen wie Schlafspindeln (kurze elektrische Wellen, die vom Gehirn während des Leichtschlafs erzeugt werden), langsamen kortikalen Oszillationen und Schwankungen der Herzfrequenz. Dieses Verhalten legt nahe, dass der Locus coeruleus nicht einfach nur ein Wachzentrum ist, sondern ein hoch entwickelter Regulator der Schlafqualität selbst (Osorio-Forero et al., 2022) [20].

Einer der interessantesten Aspekte betrifft die Rolle von Noradrenalin bei der Gedächtniskonsolidierung. Während des Non-REM-Schlafs scheinen die kontrollierten Oszillationen des noradrenergen Systems die synaptische Plastizität und den Transfer von Informationen vom Hippocampus zur Großhirnrinde zu fördern. Während des REM-Schlafs schafft das fast vollständige Verschwinden von Noradrenalin anschließend ein völlig anderes neurochemisches Umfeld, das die Reorganisation neuronaler Verbindungen und die Verarbeitung der am Tag gesammelten emotionalen Informationen begünstigt. Diese drastische Reduktion von Noradrenalin während des REM-Schlafs ist kein bloßer Nebeneffekt des Schlafs, sondern eine biologische Voraussetzung dafür, dass das Gehirn korrekt in diese Phase eintreten kann. Jüngste Beobachtungen haben tatsächlich gezeigt, dass der Abfall der Noradrenalinspiegel mehrere Sekunden vor Beginn einer REM-Phase einsetzt. Mit anderen Worten: Das Verstummen des Locus coeruleus scheint eines der Ereignisse zu sein, die das Gehirn auf den Eintritt in den REM-Schlaf vorbereiten (Osorio-Forero et al., 2022) [20].

In diesem Zusammenhang ergibt sich die direkte Verbindung zu Melatonin und dem im vorangegangenen Abschnitt beschriebenen MT1-Rezeptor. Eine im Jahr 2024 veröffentlichte Studie hat gezeigt, dass die selektive Aktivierung der MT1-Rezeptoren auf den noradrenergen Neuronen des Locus coeruleus deren elektrische Aktivität dosisabhängig reduziert. Diese Hemmung führt zu einer signifikanten Zunahme des REM-Schlafs, ohne den Non-REM-Schlaf zu beeinträchtigen. Als die Forscher den MT1-Rezeptor pharmakologisch blockierten oder dessen Expression in den Neuronen des Locus coeruleus genetisch ausschalteten, verschwand dieser Effekt vollständig. Dieses Ergebnis lieferte einen der stärksten Beweise dafür, dass Melatonin das noradrenerge System direkt über den MT1-Rezeptor modulieren und so das Auftreten des REM-Schlafs erleichtern kann (López-Canul et al., 2024) [19].

Diese Entdeckung ermöglicht ein besseres Verständnis der Rolle von Melatonin in der Schlafphysiologie. Anstatt nur als einfacher Schlafinduktor zu wirken, scheint Melatonin auf spezifische neuronale Schaltkreise einzuwirken, die den Übergang zwischen den verschiedenen Wachzuständen steuern. Durch die Aktivierung der MT1-Rezeptoren im Locus coeruleus trägt es dazu bei, die noradrenerge Aktivität schrittweise zu reduzieren und so die neurochemischen Bedingungen zu schaffen, die für den Eintritt in den REM-Schlaf erforderlich sind (López-Canul et al., 2024) [19].

Die Bedeutung des Locus coeruleus wird besonders deutlich, wenn der Schlaf chronisch gestört ist. Eine experimentelle Studie, die eine Situation simulierte, die der vieler Menschen im modernen Leben sehr ähnlich ist – wenige Tage mit unzureichendem Schlaf, gefolgt von kurzen Erholungsphasen –, dokumentierte überraschende Folgen. Nach mehreren Wochen mit intermittierendem Schlafmangel wiesen die Tiere einen signifikanten Verlust an noradrenergen Neuronen im Locus coeruleus auf, begleitet von anhaltenden Störungen des Schlaf-Wach-Rhythmus, einer Verringerung der neuronalen Projektionen und biologischen Markern, die mit Prozessen beschleunigter Zellalterung vereinbar sind (Zhu et al., 2016) [18].

Die Anfälligkeit des Locus coeruleus gegenüber Schlafmangel wird auch durch Studien bestätigt, die den selektiven REM-Schlafentzug analysiert haben. Unter diesen Bedingungen beobachtet man einen Anstieg von oxidativem Stress, apoptotischer Aktivierung und Degeneration der noradrenergen Neuronen. Die Verabreichung von Melatonin nach dem Schlafentzug konnte diesen Phänomenen jedoch signifikant entgegenwirken. Die Forscher beobachteten einen Anstieg des reduzierten Glutathionspiegels, eine Abnahme der Caspase-3-Aktivierung und eine Erhaltung der noradrenergen Neuronenpopulation des Locus coeruleus. Mit anderen Worten: Melatonin förderte nicht nur den Schlaf, sondern zeigte eine echte neuroprotektive Wirkung gegenüber einem der wichtigsten Systeme zur Regulierung der Wachsamkeit (Jameie et al., 2019) [16].

Diese Beobachtung ist besonders relevant, wenn man bedenkt, dass der Locus coeruleus heute als eine der ersten Gehirnstrukturen anerkannt ist, die an neurodegenerativen Prozessen im Zusammenhang mit dem Altern und der Alzheimer-Krankheit beteiligt sind. Zahlreiche Hinweise deuten darauf hin, dass die Ansammlung pathologischer Veränderungen in dieser Region viele Jahre vor dem Auftreten kognitiver Symptome beginnen kann. Parallel dazu beschleunigt die chronische Schlaffragmentierung den Verlust noradrenerger Neuronen und begünstigt die Ansammlung pathologischer Proteine wie Tau und β-Amyloid, wodurch ein Teufelskreis aus Schlafstörungen und Neurodegeneration entsteht (Van Egroo et al., 2022) [17].

Insgesamt beschreiben die verfügbaren Erkenntnisse das Locus-coeruleus-Noradrenalin-System als einen der Hauptorchestratoren der Schlafphysiologie. Seine Aktivität reguliert die Übergänge zwischen Wachsein und Schlaf, trägt zur Gedächtniskonsolidierung bei, koordiniert wichtige autonome Funktionen und beteiligt sich an neuroprotektiven Prozessen, die das Gehirn ein Leben lang leistungsfähig halten. Melatonin scheint sich durch die Interaktion mit den MT1-Rezeptoren in den noradrenergen Neuronen des Locus coeruleus direkt in dieses Regulationsnetzwerk einzufügen und trägt nicht nur zur Organisation des REM-Schlafs bei, sondern auch zum langfristigen Schutz eines der wichtigsten neuronalen Systeme für die Gesundheit des Gehirns.

Der laterale Hypothalamus, Orexin und der Locus Coeruleus

Im vorangegangenen Abschnitt haben wir gesehen, dass der Locus coeruleus eines der wichtigsten Gehirnzentren für die Produktion von Noradrenalin und die Regulierung des Wachzustands darstellt. Um die Funktionsweise dieses Systems jedoch vollständig zu verstehen, muss man einen Schritt zurückgehen und identifizieren, wer die Aktivität des Locus coeruleus selbst steuert. Forschungen der letzten Jahrzehnte haben gezeigt, dass einer seiner wichtigsten Regulatoren eine kleine Gruppe von Neuronen im lateralen Hypothalamus ist: die Neuronen, die Orexin produzieren, auch bekannt als Hypocretin.

Die Entdeckung von Orexin hat das Verständnis der Schlafphysiologie grundlegend verändert. Ursprünglich wurde dieses Neuropeptid vor allem mit der Kontrolle des Appetits und des Energiehaushalts in Verbindung gebracht. Im Laufe der Jahre zeigte sich jedoch, dass seine Hauptfunktion darin besteht, den Wachzustand des Organismus mit den biologischen Bedürfnissen des Augenblicks zu koordinieren. Die orexinergen Neuronen fungieren dabei als eine Art Integrationszentrale, die Informationen aus dem Stoffwechsel, den Emotionen, dem Belohnungssystem und der Außenwelt sammelt und diese in Signale umwandelt, die das Niveau der zerebralen Aktivierung modulieren können (Sakurai, 2007) [24].

Diese Funktion erscheint aus evolutionärer Sicht besonders logisch. Ein Organismus, der sich in einem Zustand des Energiemangels befindet, eine Gefahr wahrnimmt oder aktiv nach Nahrungsressourcen suchen muss, kann es sich nicht leisten, sein Wachsamkeitsniveau zu senken. Unter diesen Umständen erhöht das orexinerge System seine Aktivität, was einen Zustand anhaltender Aufmerksamkeit begünstigt und überlebensorientiertes Verhalten fördert. Im Gegensatz dazu sinkt die Aktivität der Orexin-Neuronen während des Schlafs, insbesondere während des REM-Schlafs, drastisch (Sakurai, 2007) [24].

Trotz der relativ geringen Anzahl orexinerger Neuronen im lateralen Hypothalamus erreichen ihre Projektionen zahlreiche Gehirnregionen, die an der Regulierung der Wachsamkeit beteiligt sind. Unter all diesen Strukturen stellt der Locus coeruleus wahrscheinlich das wichtigste Ziel dar. Neuroanatomische Analysen haben gezeigt, dass der Locus coeruleus eine der dichtesten orexinergen Innervationen des gesamten Gehirns erhält. Die Fasern aus dem lateralen Hypothalamus bilden zahlreiche direkte exzitatorische Synapsen an den noradrenergen Neuronen des Locus coeruleus und schaffen so eine äußerst robuste anatomische Verbindung zwischen den beiden Systemen (Horvath et al., 1999) [21].

Elektronenmikroskopische Beobachtungen haben ergeben, dass praktisch alle noradrenergen Neuronen des Locus coeruleus synaptische Kontakte von Orexin-haltigen Endigungen erhalten. Noch interessanter ist, dass diese Synapsen Merkmale typischer exzitatorischer Verbindungen aufweisen, was darauf hindeutet, dass das orexinerge System darauf ausgelegt ist, die Aktivität der Neuronen des Locus coeruleus direkt zu erhöhen; spätere elektrophysiologische Aufzeichnungen haben diese Hypothese bestätigt. Wenn Orexin direkt auf die Neuronen des Locus coeruleus appliziert wird, steigt deren Entladungsfrequenz schnell und konsistent an. Dieser Effekt ist das Ergebnis sowohl einer Depolarisation der Zellmembran als auch einer Reduzierung der Mechanismen, die normalerweise die neuronale Erregbarkeit begrenzen. Mit anderen Worten: Orexin macht die noradrenergen Neuronen aktiver und fördert die Aufrechterhaltung eines hohen Wachsamkeitsniveaus (Horvath et al., 1999) [21].

Diese Ergebnisse wurden durch spätere Studien, die die Rolle von Orexin A, einer der beiden biologisch aktiven Hauptformen des Peptids, untersuchten, weiter bestätigt. Mikroinjektionen von Orexin A direkt in den Locus coeruleus führen zu einer deutlichen Zunahme des Wachzustands, begleitet von einer signifikanten Reduzierung des REM-Schlafs und des Tiefschlafs. In einigen Experimenten erreichte die Zunahme des Wachzustands Werte von über 70 %, was die außergewöhnliche Potenz dieses neuronalen Aktivierungssystems demonstriert; besonders interessant ist, dass diese Effekte hauptsächlich durch den Orexin-Rezeptor Typ 1 (OX1R) vermittelt werden. Dies deutet darauf hin, dass die Kommunikation zwischen dem lateralen Hypothalamus und dem Locus coeruleus über einen hochspezialisierten Mechanismus erfolgt, der darauf optimiert ist, den Wachzustand schnell zu fördern, wenn die physiologischen Bedingungen dies erfordern (Hagan et al., 1999) [22].

Die Rolle des Orexin-Locus-coeruleus-Schaltkreises wird besonders deutlich, wenn man die Übergänge zwischen Wachzustand und REM-Schlaf analysiert. Wie im vorangegangenen Abschnitt erläutert, ist der Locus coeruleus während des REM-Schlafs praktisch stumm. Die orexinerge Aktivierung bewirkt hingegen das Gegenteil: Sie erhöht die Aktivität der noradrenergen Neuronen und erschwert den Eintritt in diese Schlafphase. Eine Studie, die sich speziell diesem Phänomen widmete, zeigte, dass die lokale Verabreichung von Orexin A im Locus coeruleus den REM-Schlaf dosisabhängig unterdrückt, während gleichzeitig die Dauer des Wachzustands zunimmt. Dieser Effekt wird von einer deutlichen neuronalen Aktivierung begleitet, die sowohl elektrophysiologisch als auch durch die erhöhte Expression eines spezifischen Proteins dokumentiert wurde (Bourgin et al., 2000) [23].

Diese Beobachtungen haben dazu beigetragen, einen der Mechanismen zu klären, durch die das Gehirn Verhaltenszustände stabilisiert. Wenn das orexinerge System aktiv ist, produziert der Locus coeruleus weiterhin Noradrenalin, hält das Arousal-Niveau hoch und verhindert das Eindringen von REM-Phänomenen während des Wachzustands. Wenn die orexinerge Aktivität hingegen abnimmt, wie es physiologisch während der Nacht geschieht, kann der Locus coeruleus seine Aktivität schrittweise verringern, was den Übergang in die verschiedenen Schlafphasen begünstigt (Bourgin et al., 2000) [23].

Die Bedeutung dieses Schaltkreises wird noch deutlicher, wenn man betrachtet, was bei Narkolepsie (einer neurologischen Schlafstörung, die tagsüber starke Schläfrigkeit verursacht) geschieht. Diese Pathologie ist durch den selektiven Verlust der orexinergen Neuronen im lateralen Hypothalamus gekennzeichnet. Ohne die stabilisierende Wirkung von Orexin verliert das Gehirn die Fähigkeit, eine klare Trennung zwischen Schlaf und Wachzustand aufrechtzuerhalten. Infolgedessen treten Tagesmüdigkeit, Schlaffragmentierung und REM-Phänomene auf, die unangemessen während des Wachzustands einbrechen, wie es bei Kataplexie-Episoden (einem plötzlichen und vorübergehenden Verlust der Muskelkraft) der Fall ist (Sakurai, 2007) [24].

Eine besonders elegante Studie ermöglichte es, die Hauptschaltkreise zu identifizieren, die für diese Phänomene verantwortlich sind. Durch die selektive Wiederherstellung der orexinergen Signalübertragung in verschiedenen neuronalen Populationen von narkoleptischen Mausmodellen beobachteten die Forscher, dass die Wiederherstellung der Orexin-Übertragung in den noradrenergen Neuronen des Locus coeruleus die Konsolidierung des Wachzustands signifikant verbessert. Der Effekt war direkt proportional zur Anzahl der Neuronen im Locus coeruleus, bei denen die Empfindlichkeit gegenüber Orexin wiederhergestellt wurde. Dieses Ergebnis zeigte, dass der Locus coeruleus einer der wichtigsten Effektoren ist, durch die das orexinerge System einen kontinuierlichen und stabilen Wachzustand aufrechterhält (Hasegawa et al., 2014) [25].

Zusammengenommen beschreiben diese Erkenntnisse den lateralen Hypothalamus als eine Art Kommandozentrale, die in der Lage ist, das Wachsamkeitsniveau des Organismus kontinuierlich zu modulieren. Durch die Freisetzung von Orexin aktiviert er den Locus coeruleus, erhöht die Produktion von Noradrenalin und unterstützt den Wachzustand, wenn der Organismus aufmerksam gegenüber seiner Umgebung bleiben muss. Dieses System stellt das physiologische Gegengewicht zu den in den vorangegangenen Abschnitten beschriebenen schlaffördernden Mechanismen dar. Einerseits tragen Melatonin und der MT1-Rezeptor dazu bei, die Aktivität des Locus coeruleus zu reduzieren und den REM-Schlaf zu erleichtern; andererseits übt Orexin eine entgegengesetzte Wirkung aus, indem es die noradrenergen Neuronen stimuliert und die Wachsamkeit fördert. Das empfindliche Gleichgewicht zwischen diesen gegensätzlichen Kräften ermöglicht es dem Gehirn, die Schlaf- und Wachzustände geordnet und stabil abzuwechseln.

Melatonin, der laterale Hypothalamus und Orexin

In den vorangegangenen Abschnitten haben wir gesehen, wie der Locus coeruleus und das Orexin-System einige der wichtigsten Förderer der Wachheit darstellen. Es bleibt jedoch eine grundlegende Frage: Wie schafft es Melatonin, das biologische Signal der Nacht, diesen leistungsstarken Systemen der Gehirnaktivierung entgegenzuwirken und den Schlaf zu fördern?

Viele Jahre lang blieb die Antwort unvollständig. Es war bekannt, dass Melatonin den Schlaf fördert und Orexin die Wachheit unterstützt, aber die direkte Verbindung zwischen diesen beiden neurobiologischen Systemen war noch nicht geklärt. Neuere Forschungen haben jedoch einen wichtigen anatomischen und funktionellen Treffpunkt innerhalb des lateralen perifornikalen Hypothalamus identifiziert, einer Region, die einen Großteil der Orexin-Neuronen beherbergt, die für die Aufrechterhaltung des Wachzustands verantwortlich sind (Sharma et al., 2018) [26].

Um die Bedeutung dieser Entdeckung zu verstehen, ist es hilfreich, sich daran zu erinnern, dass Orexin-Neuronen wie eine Art Beschleuniger des Bewusstseins fungieren. Wenn sie aktiv sind, stimulieren sie zahlreiche Arousal-Systeme, darunter den Locus coeruleus, die serotonergen Raphe-Kerne, die cholinergen Systeme des Hirnstamms und andere Strukturen, die an der Wachheit beteiligt sind. Durch diese weit verzweigten Verbindungen tragen sie dazu bei, das Gehirn in einem Zustand der Aktivierung zu halten, der stabil und auf die Anforderungen der Umgebung abgestimmt ist (Hung und Yamanaka, 2023) [27].

Moderne Immunfluoreszenztechniken haben gezeigt, dass diese Neuronen MT1-Rezeptoren für Melatonin exprimieren. Diese Beobachtung legt nahe, dass das Melatonin-System eine direkte Kontrolle über die wichtigsten wachheitsfördernden Neuronen durch einen hochselektiven Mechanismus ausüben kann. Die experimentelle Überprüfung dieser Hypothese lieferte besonders interessante Ergebnisse. Wenn Melatonin direkt in den lateralen perifornikalen Hypothalamus verabreicht wird, beobachtet man eine signifikante Zunahme des Non-REM-Schlafs, begleitet von einer Verringerung der Wachheit. Parallel dazu nimmt die Aktivität der Orexin-Neuronen drastisch ab, was durch die deutliche Reduzierung der Expression des neuronalen Markers c-Fos (ein Protein, das als Marker für neuronale Aktivierung verwendet wird) belegt wird. Mit anderen Worten: Melatonin scheint buchstäblich die Lautstärke eines der wichtigsten Gehirnsysteme zu senken, die für die Aufrechterhaltung der Wachheit verantwortlich sind (Sharma et al., 2018) [26].

Besonders bedeutsam ist die Tatsache, dass der gegenteilige Effekt beobachtet wird, wenn die Melatonin-Signalübertragung blockiert wird. Die pharmakologische Hemmung der Melatonin-Rezeptoren im lateralen Hypothalamus führt nämlich zu einer Zunahme der Wachheit und einer Verringerung der Schlafbereitschaft. Dieses Ergebnis deutet darauf hin, dass die von Melatonin auf die Orexin-Neuronen ausgeübte Kontrolle kein künstliches Phänomen ist, das nur im Labor beobachtet werden kann, sondern einen physiologischen Mechanismus darstellt, der normalerweise während der Nacht aktiv ist (Sharma et al., 2018) [26].

Diese Entdeckung hat dazu beigetragen, die Interpretation der Wirkung von Melatonin neu zu definieren. Lange Zeit nahm man an, dass das Hormon hauptsächlich als zirkadianes Signal fungiert, das dem Gehirn das Einsetzen der Nacht signalisiert. Heute wird immer deutlicher, dass Melatonin auch eine aktive Rolle bei der Modulation der neuronalen Schaltkreise spielt, die die Bewusstseinszustände steuern. Aus dieser Perspektive würde der Schlaf nicht nur aus dem Vorhandensein eines günstigen Zeitsignals resultieren, sondern auch aus der fortschreitenden Deaktivierung der Systeme, die die Wachheit aufrechterhalten.

Die Bedeutung dieses Mechanismus wird noch deutlicher, wenn man das physiologische Verhalten der Orexin-Neuronen während des Schlaf-Wach-Zyklus betrachtet. Elektrophysiologische Aufzeichnungen und moderne bildgebende Verfahren haben gezeigt, dass diese Neuronen ihre maximale Aktivität während der aktiven Wachheit, der Erkundung der Umgebung, der Exposition gegenüber neuen Reizen und motivierten Verhaltensweisen erreichen. Im Gegensatz dazu nimmt ihre Aktivität während der ruhigen Wachheit progressiv ab und wird während des Non-REM-Schlafs minimal. Dieser Verlauf legt nahe, dass die Hemmung von Orexin einen der grundlegenden Schritte darstellt, die es dem Gehirn ermöglichen, von der Wachheit in den Schlaf überzugehen (Hung und Yamanaka, 2023) [27].

Genetische Belege untermauern diese Interpretation zusätzlich. Tiermodelle, denen Orexin oder seine Rezeptoren fehlen, zeigen eine ausgeprägte Instabilität der Bewusstseinszustände mit Fragmentierung der Wachheit, Episoden von frühem REM-Schlaf und Manifestationen, die der menschlichen Narkolepsie ähneln. Diese Beobachtungen zeigen, dass das Orexin-System einen der wichtigsten Mechanismen darstellt, durch die das Gehirn die Kontinuität des Wachzustands aufrechterhält (Hung und Yamanaka, 2023) [27].

Aus dieser Perspektive ergibt sich ein besonders elegantes Bild der Schlafphysiologie. Während des Tages trägt die Aktivität der Orexin-Neuronen dazu bei, die Wachheit zu stützen und Systeme wie den Locus coeruleus sowie die noradrenerge Übertragung zu aktivieren. Mit Einbruch der Nacht ermöglicht der Anstieg der Melatonin-Sekretion eine schrittweise Reduzierung dieser Aktivität über die auf den Orexin-Neuronen exprimierten MT1-Rezeptoren. Die Abnahme der Orexin-Aktivität führt somit zu einer geringeren Stimulation der Arousal-Systeme, was den Eintritt in den Schlaf und dessen Stabilisierung erleichtert (Sharma et al., 2018) [26].

Die klinische Bedeutung dieses Zusammenhangs wurde auch durch aktuelle pharmakologische Studien bestätigt. Die Beobachtung, dass Melatonin-Rezeptor-Agonisten und Orexin-Rezeptor-Antagonisten bei verschiedenen pathologischen Zuständen ähnliche Vorteile bewirken, legt nahe, dass beide therapeutischen Ansätze auf denselben neurobiologischen Schaltkreisen konvergieren könnten. In einer Studie an älteren Patienten, die wegen eines Schlaganfalls hospitalisiert waren, war die frühzeitige Verabreichung eines Melatonin-Rezeptor-Agonisten oder von Orexin-Rezeptor-Antagonisten mit einer signifikanten Verringerung des Auftretens von deliranten Symptomen verbunden. Die Autoren vermuteten, dass dieser Nutzen zumindest teilweise aus der Verbesserung der Schlafqualität und der Normalisierung des Schlaf-Wach-Rhythmus resultiert, was die Bedeutung des Gleichgewichts zwischen dem Melatonin-System und dem Orexin-System für die Stabilität der kognitiven Funktionen bestätigt (Miyoshi et al., 2024) [28].

Diese Beobachtungen eröffnen besonders interessante therapeutische Perspektiven. Wenn Melatonin den Schlaf durch die Reduzierung der Aktivität der Orexin-Neuronen fördert und wenn Orexin-Rezeptor-Antagonisten ähnliche klinische Effekte durch einen anderen Mechanismus erzielen, wird es plausibel, diese beiden Systeme als komplementäre Teile desselben biologischen Netzwerks zu betrachten. In diesem Modell würde Melatonin das physiologische Signal darstellen, das das Einsetzen der Nacht kommuniziert, während Orexin das Hauptsystem bilden würde, das schrittweise zum Schweigen gebracht werden muss, damit der Schlaf stabil und effektiv eintreten kann.

Insgesamt deuten die verfügbaren Belege darauf hin, dass die Beziehung zwischen Melatonin und Orexin einen der wichtigsten Treffpunkte zwischen dem zirkadianen System und den neuronalen Schaltkreisen der Wachheit darstellt. Durch die Aktivierung der MT1-Rezeptoren im lateralen Hypothalamus scheint Melatonin einen der stärksten Förderer der Wachheit im Gehirn direkt zu hemmen. Dieser Mechanismus ermöglicht es, das biologische Signal der Nacht mit der Reduzierung des neuronalen Arousals zu verknüpfen und so die notwendigen Bedingungen zu schaffen, damit der Schlaf auf physiologische und koordinierte Weise entstehen kann.

Die MT1-Rezeptoren im menschlichen Körper

Bisher haben wir den Weg des Melatonins innerhalb der Gehirnschaltkreise verfolgt, die den Schlaf regulieren, und beobachtet, wie es mit dem Locus coeruleus, mit Noradrenalin und mit dem orexinergen System des lateralen Hypothalamus interagiert. An dieser Stelle könnte spontan ein Irrtum entstehen: die Vorstellung, dass MT1-Rezeptoren fast ausschließlich auf das Gehirn beschränkt seien und ihre Hauptfunktion in der Schlafregulierung bestehe. Tatsächlich haben Forschungen der letzten Jahre eine weitaus faszinierendere und komplexere Realität offenbart. MT1-Rezeptoren sind in zahlreichen Organen und Geweben des Körpers verteilt und an der Regulierung biologischer Prozesse beteiligt, die den Stoffwechsel, das Herz-Kreislauf-System, die Immunität, die endokrine Funktion und sogar den Zellschutz gegen oxidativen Stress umfassen (Jockers et al., 2016) [29]; (Slominski et al., 2012) [31].

Strukturell gehört der MT1-Rezeptor zur großen Familie der G-Protein-gekoppelten Rezeptoren. Wenn Melatonin an diesen Rezeptor bindet, wird eine Kaskade intrazellulärer Signale aktiviert, die das Verhalten der Zelle verändert. Zu den wichtigsten Effekten gehören die Verringerung der intrazellulären Spiegel von cyclischem AMP (ein Molekül, das Signale innerhalb der Zellen überträgt und wichtige Funktionen reguliert), die Modulation von Proteinkinasen (Enzyme, die die Aktivität anderer Proteine durch das Hinzufügen von Phosphatgruppen regulieren), die Kontrolle von Ionenflüssen (Bewegung elektrisch geladener Teilchen (Ionen) durch die Zellmembran) und die Regulierung der Genexpression. In einigen Geweben kann der Rezeptor zudem den Weg der Phospholipase C (ein Enzym, das bestimmte Fette der Zellmembran in chemische Signale umwandelt) und der Proteinkinase C aktivieren, was die Vielfalt der möglichen biologischen Reaktionen weiter erweitert (Jockers et al., 2016) [29]; (Tripathy und Bhattamisra, 2025) [33].

Eines der peripheren Systeme mit der reichhaltigsten melatoninergen Signalgebung ist der Magen-Darm-Trakt. Viele Jahre lang nahm man an, dass die Zirbeldrüse die Hauptquelle für das Melatonin des Körpers sei. Heute wissen wir, dass der Darm extrem hohe Mengen an Melatonin produziert, die oft über denen im Blutkreislauf liegen. Studien an menschlichem Gewebe haben den MT1-Rezeptor entlang des gesamten Magen-Darm-Trakts identifiziert, einschließlich des Darmepithels, des Plexus myentericus, des Plexus submucosus (ein Netzwerk von Neuronen, das sich zwischen den Muskelschichten des Darms befindet) und der Gefäßstrukturen der Darmwand (Söderquist et al., 2015) [30].

Diese Verteilung legt nahe, dass Melatonin direkt an der Regulierung der Darmmotilität, der Verdauungssekretion, der Barrierefunktion und der Kommunikation zwischen dem enterischen Nervensystem und dem Verdauungsapparat beteiligt ist. Mit anderen Worten: Der Magen-Darm-Trakt ist nicht nur ein Zielorgan für Melatonin, sondern ein eigenständiges peripheres melatoninerges System, das über eine beachtliche funktionelle Autonomie verfügt (Söderquist et al., 2015) [30]; (Slominski et al., 2012) [31].

Besonders interessant ist das Vorhandensein von MT1-Rezeptoren auch in der endokrinen Bauchspeicheldrüse. Die Zellen der Pankreasinseln exprimieren tatsächlich vollständige Komponenten der melatoninergen Signalgebung. Diese Beobachtung hat die Aufmerksamkeit der Forscher auf sich gezogen, da sie Melatonin direkt mit der Kontrolle des Glukosestoffwechsels verbindet. Über seine Rezeptoren trägt Melatonin zur Modulation der Insulinausschüttung und zur circadianen Synchronisation des Energiestoffwechsels bei. Veränderungen der melatoninergen Signalgebung wurden mit Insulinresistenz, veränderter Funktion der β-Zellen und einem erhöhten Risiko für Diabetes mellitus Typ 2 in Verbindung gebracht (Söderquist et al., 2015) [30]; (Tripathy und Bhattamisra, 2025) [33].

Auch das Herz-Kreislauf-System weist eine signifikante Expression von MT1-Rezeptoren auf. Diese Rezeptoren wurden in der Wand von Blutgefäßen identifiziert, sowohl in den glatten Muskelzellen als auch im Endothel. Die Forschung zeigt, dass die Aktivierung von MT1 im Allgemeinen mit gefäßverengenden Phänomenen assoziiert ist, die durch die Verringerung von cyclischem AMP und die Modulation von Calcium-abhängigen Kaliumkanälen vermittelt werden. Dieser Mechanismus trägt zur Feinregulierung des Gefäßtonus und des Blutdrucks bei, indem er circadiane Signale mit den hämodynamischen Bedürfnissen des Körpers integriert (da Rocha-Carvalho et al., 2025) [32]; (Slominski et al., 2012) [31].

Das Interesse an diesen Effekten ist gestiegen, da beobachtet wurde, dass die Expression von MT1-Rezeptoren mit zunehmendem Alter und bei verschiedenen pathologischen Herz-Kreislauf-Erkrankungen tendenziell abnimmt. Einige Forscher haben die Hypothese aufgestellt, dass der fortschreitende Verlust der Melatonin-Sensitivität zu den altersbedingten Gefäßveränderungen beitragen könnte, was eine endotheliale Dysfunktion, eine Zunahme der arteriellen Steifigkeit und eine verringerte Anpassungsfähigkeit an circadiane Rhythmen begünstigt (da Rocha-Carvalho et al., 2025) [32].

Ein weiterer besonders relevanter Bereich betrifft das Immunsystem. Zahlreiche Immunzellen exprimieren MT1-Rezeptoren und reagieren direkt auf das Vorhandensein von Melatonin. Durch diese Mechanismen kann Melatonin die Lymphozytenproliferation, die Zytokinproduktion und die Regulierung von Entzündungsreaktionen beeinflussen. Insbesondere scheint der MT1-Rezeptor an der Modulation der adaptiven Immunität beteiligt zu sein, indem er zur Produktion von Interleukin-2 (ein Protein des Immunsystems, das das Wachstum und die Vermehrung von T-Lymphozyten stimuliert) und zur Kontrolle der Aktivität von T-Lymphozyten beiträgt (Jockers et al., 2016) [29]; (Slominski et al., 2012) [31].

Die periphere Verteilung von MT1 erstreckt sich zudem auf die Niere, das Knochengewebe, die Haut, die Fortpflanzungsorgane und die Plazenta. In der Niere trägt er zur Regulierung der Wasser-Elektrolyt-Homöostase und zum Schutz vor Entzündungsprozessen bei. Im Knochengewebe fördert er die Aktivität der Osteoblasten und die Erhaltung der Knochenmasse. In der Haut ist er am Schutz gegen oxidativen Stress und an der Regulierung der Zellproliferation beteiligt. Während der Schwangerschaft trägt das Vorhandensein von Melatonin-Rezeptoren in der Plazenta und im Uterus zum Schutz des Fötus und zur Regulierung der Schwangerschaftsprozesse bei (Slominski et al., 2012) [31].

Ein Aspekt, der zunehmend Interesse weckt, betrifft die Rolle der MT1-Rezeptoren bei chronischen Krankheiten. Veränderungen der Rezeptorexpression wurden bei der Alzheimer-Krankheit, der Parkinson-Krankheit, der Huntington-Krankheit und bei einigen neurologischen Entwicklungsstörungen beobachtet. Bei vielen dieser Erkrankungen treten gleichzeitig Störungen des Schlafs, der circadianen Rhythmen und der Stoffwechselfunktion auf, was darauf hindeutet, dass eine Fehlfunktion der melatoninergen Signalgebung zum Fortschreiten der Krankheit beitragen könnte (Jockers et al., 2016) [29].

Insgesamt verändern die vorliegenden Erkenntnisse das traditionelle Bild von Melatonin als bloßem „Schlafhormon“ grundlegend. Der MT1-Rezeptor erweist sich als Bestandteil eines riesigen biologischen Netzwerks, das im gesamten Körper verteilt ist. Durch seine Präsenz im Gehirn, im Darm, in der Bauchspeicheldrüse, in den Blutgefäßen, im Immunsystem und in zahlreichen anderen Geweben trägt er dazu bei, Funktionen zu koordinieren, die von der circadianen Regulierung bis zum Energiestoffwechsel und von der Immunität bis zum Zellschutz reichen. Diese systemische Sichtweise ermöglicht es zu verstehen, dass das nächtliche Signal des Melatonins nicht ausschließlich für das Gehirn bestimmt ist, sondern eine globale biologische Botschaft darstellt, die in der Lage ist, den gesamten Organismus mit dem Rhythmus des Tages zu synchronisieren.

Melatonin und Autophagie

Um viele der Melatonin zugeschriebenen Funktionen vollständig zu verstehen, ist es notwendig, einen für das Zellüberleben grundlegenden biologischen Prozess einzuführen: die Autophagie. Der Begriff stammt aus dem Griechischen und bedeutet wörtlich „sich selbst essen“, doch diese Definition kann irreführend sein. Die Autophagie stellt nämlich keinen selbstzerstörerischen Mechanismus dar, sondern ein außergewöhnliches internes Wartungssystem, durch das die Zelle beschädigte Bestandteile, falsch gefaltete Proteine und nicht mehr funktionierende Organellen identifiziert, isoliert und abbaut, um deren Bestandteile anschließend für die Produktion neuer Zellstrukturen wiederzuverwenden (Coto-Montes et al., 2012) [34]; (Boga et al., 2019) [35].

Man könnte diesen Prozess mit dem vergleichen, was in einer gut organisierten Stadt geschieht. Jeden Tag wird Müll gesammelt, beschädigtes Material beseitigt und Rohstoffe für neue Bauvorhaben zurückgewonnen. Würde dieses Sammel- und Recyclingsystem unterbrochen, würden sich die Straßen allmählich mit Trümmern füllen und das Funktionieren der gesamten Stadt beeinträchtigen. Auf die gleiche Weise sammeln Zellen bei einer gestörten Autophagie beschädigte Strukturen an, die Entzündungen, Stoffwechselstörungen, Alterung und Krankheiten begünstigen (Coto-Montes et al., 2012) [34].

In den letzten Jahren hat sich herausgestellt, dass Melatonin einer der wichtigsten physiologischen Regulatoren dieses Systems ist. Anfangs nahm man an, seine Rolle beschränke sich auf die direkte Neutralisierung freier Radikale und die Regulierung des Schlaf-Wach-Rhythmus. Neuere Erkenntnisse haben jedoch gezeigt, dass Melatonin auf einer viel tieferen Ebene eingreift und zahlreiche zelluläre Mechanismen koordiniert, die an der intrazellulären Qualitätskontrolle beteiligt sind (Boga et al., 2019) [35]; (Lei et al., 2024) [38].

Eines der Elemente, das Melatonin und Autophagie eng miteinander verbindet, ist oxidativer Stress. Während des normalen Zellstoffwechsels werden kontinuierlich reaktive Sauerstoffspezies, allgemein als ROS bezeichnet, erzeugt. In physiologischen Mengen erfüllen diese Moleküle wichtige Signalfunktionen. Wenn ihre Produktion jedoch die Abwehrkapazität der Zelle übersteigt, kommt es zu Schäden an Proteinen, Lipiden, DNA und Mitochondrien. Unter diesen Bedingungen wird die Autophagie als Notfallmechanismus aktiviert, um die beeinträchtigten Strukturen zu beseitigen und die zelluläre Homöostase wiederherzustellen (Coto-Montes et al., 2012) [34]; (Lei et al., 2024) [38].

Melatonin beteiligt sich aktiv an diesem Prozess über zahlreiche molekulare Signalwege. Zu den wichtigsten gehören die Aktivierung von AMPK, einem der wichtigsten zellulären Energiesensoren, und die Hemmung von mTOR, einem Protein, das normalerweise die Autophagie unterdrückt, wenn Energieressourcen im Überfluss vorhanden sind. Durch diese Regulierung fördert Melatonin die Aktivierung von ULK1 (einem Protein, das die Autophagie einleitet) und den Start der Bildung von Autophagosomen, den Strukturen, die das abzubauende Material umschließen (Qiu et al., 2026) [40]; (Zhu et al., 2025) [39].

Unter den verschiedenen Formen der Autophagie ist die Mitophagie eine der wichtigsten; ein selektiver Prozess, der ausschließlich dem Abbau beschädigter Mitochondrien gewidmet ist. Mitochondrien bilden die wichtigsten Energiekraftwerke der Zelle, sind aber auch eine der größten intrazellulären Quellen für freie Radikale. Wenn sie dysfunktional werden, können sie sich von Energieerzeugern zu Verursachern von Zellschäden entwickeln. Aus diesem Grund hat der Organismus hochentwickelte Systeme zur mitochondrialen Qualitätskontrolle entwickelt, die es ermöglichen, beeinträchtigte Organellen selektiv zu eliminieren und durch neue, funktionstüchtige Mitochondrien zu ersetzen (Coto-Montes et al., 2012) [34]; (Lei et al., 2024) [38].

Neuere Erkenntnisse deuten darauf hin, dass Melatonin gerade bei der Kontrolle der mitochondrialen Qualität eine besonders wichtige Rolle spielt. Neben dem direkten Schutz der Mitochondrien vor oxidativen Schäden reguliert es die mitochondriale Fusion und Fission, fördert die Biogenese neuer Organellen und stimuliert die Mitophagie durch spezifische Systeme. Dieses koordinierte Zusammenspiel von Mechanismen ermöglicht es, die Energieeffizienz der Zelle zu bewahren und die Ansammlung dysfunktionaler Strukturen zu begrenzen (Lei et al., 2024) [38]; (Zhu et al., 2025) [39].

Ein besonders faszinierender Aspekt, der aus der Forschung hervorgegangen ist, ist, dass Melatonin nicht wie ein einfacher Schalter fungiert, der die Autophagie immer aktiviert. Im Gegenteil, es wirkt als adaptiver Regulator: Wenn der autophagische Fluss unzureichend ist und die Zelle beschädigte Strukturen ansammelt, neigt Melatonin dazu, diesen zu verstärken; wenn die Autophagie hingegen übermäßig wird und Gefahr läuft, zu einem selbstzerstörerischen Mechanismus zu werden, kann Melatonin sie begrenzen. Mit anderen Worten: Sein Ziel ist es nicht, die Autophagie wahllos zu erhöhen oder zu verringern, sondern das für das Zellüberleben notwendige optimale Gleichgewicht aufrechtzuerhalten (Boga et al., 2019) [35]; (Zhu et al., 2025) [39]; (Lei et al., 2024) [38].

Diese bidirektionale Natur zeigt sich besonders deutlich im Nervensystem. Neurodegenerative Erkrankungen wie Alzheimer und Parkinson sind durch die fortschreitende Ansammlung aggregierter Proteine und beschädigter Mitochondrien gekennzeichnet. In diesen Kontexten fördert Melatonin die Autophagie und Mitophagie, erleichtert die Beseitigung pathologischer Strukturen, verbessert die mitochondriale Funktion und reduziert die Neuroinflammation. In anderen neurologischen Szenarien kann eine übermäßige Aktivierung der Autophagie jedoch zum neuronalen Zelltod beitragen; unter solchen Bedingungen scheint Melatonin eine moderierende Wirkung auszuüben und dazu beizutragen, das zelluläre Gleichgewicht wiederherzustellen (Zhu et al., 2025) [39]; (Boga et al., 2019) [35].

Dieselbe regulatorische Fähigkeit wurde in der Leber beobachtet. In einem Mausmodell für Steatohepatitis in Verbindung mit Adipositas und chronischer intermittierender Hypoxie – ein Zustand, der häufig bei Patienten mit obstruktivem Schlafapnoe-Syndrom beobachtet wird – reduzierte Melatonin den Leberschaden durch Wiederherstellung der autophagischen Aktivität. Die Wiederherstellung des autophagischen Flusses war mit einer Verringerung der Entzündung, einer Verbesserung der Leberstruktur und einem geringeren Fortschreiten der Stoffwechselerkrankung verbunden (Ren et al., 2019) [36].

Auch das Knochengewebe scheint von dieser Regulierung zu profitieren. Bei Modellen der diabetischen Osteoporose beeinträchtigt chronische Hyperglykämie die Regenerationsfähigkeit mesenchymaler Stammzellen (unreife Zellen, die sich in verschiedene Zelltypen wie Knochen-, Knorpel- und Fettzellen verwandeln können) und begünstigt einen anhaltenden Entzündungszustand. Melatonin konnte den NRF2-Autophagie-Signalweg aktivieren, oxidativen Stress reduzieren und die Polarisierung von Makrophagen in Richtung des entzündungshemmenden M2-Phänotyps fördern. Diese Veränderung der zellulären Mikroumgebung begünstigte die osteogene Differenzierung und die Verbesserung der Knochenbildung (Zhang et al., 2026) [41].

Besonders interessant ist die Rolle der Autophagie auch im onkologischen Bereich. Tumorzellen nutzen häufig autophagische Mechanismen, um in feindlichen Umgebungen zu überleben, die durch Nährstoffmangel, Hypoxie und metabolischen Stress gekennzeichnet sind. In einigen Kontexten scheint Melatonin genau dieses System zu nutzen, um dem neoplastischen Wachstum entgegenzuwirken. In Neuroblastomzellen induziert es beispielsweise eine Form der zytotoxischen Autophagie durch die Aktivierung der Pak2/AMPK/mTOR-Achse und die Modulation des Stresszustands des endoplasmatischen Retikulums, was zur Unterdrückung des Tumorwachstums beiträgt (Qiu et al., 2026) [40].

Ähnliche Ergebnisse wurden beim kolorektalen Karzinom beobachtet. In diesem Modell erhöht Melatonin die Produktion reaktiver Sauerstoffspezies, aktiviert die Stressantwort des endoplasmatischen Retikulums und induziert die Expression spezifischer autophagischer Proteine. Es zeigten sich auch Veränderungen der AMPK- und PI3K/AKT/mTOR-Signalwege. Das Endergebnis ist eine Aktivierung der Autophagie, die mit dem Tod der Tumorzellen einhergeht, was auf eine mögliche Rolle von Melatonin als Adjuvans bei onkologischen Therapiestrategien hindeutet (Chok et al., 2021) [37].

Insgesamt zeigen die derzeit verfügbaren Erkenntnisse, dass Melatonin weit mehr als nur ein Schlafregulator ist. Durch die Kontrolle der Autophagie und Mitophagie greift es in einige der wichtigsten Mechanismen zur Aufrechterhaltung der zellulären Homöostase ein. Die Fähigkeit, AMPK, mTOR und zahlreiche andere Signalwege zu modulieren, ermöglicht es Melatonin, die zelluläre Antwort an die spezifischen Bedürfnisse jedes Gewebes und jedes pathologischen Zustands anzupassen. In dieser Perspektive erscheint die Autophagie als eines der wichtigsten Instrumente, mit denen Melatonin den Organismus vor Alterung, Stoffwechselstörungen, Neurodegeneration und chronischen Zellschäden schützt.

AMPK und Autophagie

Im vorangegangenen Abschnitt haben wir gesehen, wie Melatonin die Autophagie über zahlreiche intrazelluläre Signalwege beeinflussen kann, darunter AMPK und mTOR. Um diesen Mechanismus vollständig zu verstehen, ist es notwendig, sich mit einem der wichtigsten metabolischen Sensoren im Organismus zu befassen: der AMP-aktivierten Proteinkinase, besser bekannt als AMPK.

Jede Zelle des menschlichen Körpers steht ständig vor einer grundlegenden Herausforderung: dem Ausgleich zwischen Energieverbrauch und Energieproduktion. Wenn ausreichend Energie zur Verfügung steht, kann die Zelle Ressourcen in Wachstum, Proteinsynthese und Proliferation investieren. Wenn die Energiereserven hingegen sinken, müssen Strategien zur Einsparung und Rückgewinnung angewandt werden. In diesem Zusammenhang fungiert AMPK als eine Art zentrale Steuereinheit des Stoffwechsels, die in der Lage ist, das Verhältnis von AMP zu ATP (zwei Moleküle, die mit der zellulären Energieverfügbarkeit verknüpft sind) kontinuierlich zu überwachen und das zelluläre Verhalten an die jeweiligen energetischen Bedingungen anzupassen (Smiles et al., 2024) [43]; (Mandic et al., 2025) [45].

Man könnte AMPK mit einem hochentwickelten Notfallmanagementsystem in einer Großstadt vergleichen. Wenn die Energieressourcen ausreichen, laufen die Aktivitäten normal weiter. Tritt jedoch ein Energiemangel auf, greift das System sofort ein, indem es nicht unbedingt notwendige Verbräuche reduziert und Mechanismen aktiviert, die darauf abzielen, das Gleichgewicht wiederherzustellen. Dieses Prinzip stellt die biologische Grundlage der AMPK-Wirkung dar (Mandic et al., 2025) [45].

Um diese Funktion zu erfüllen, arbeitet AMPK eng mit einem weiteren wichtigen Stoffwechselregulator zusammen: mTORC1. Wenn AMPK der Sensor für Energiemangel ist, kann mTORC1 als Förderer des Zellwachstums betrachtet werden. Wenn Nährstoffe und Energie im Überfluss vorhanden sind, begünstigt mTORC1 die Proteinsynthese, die Proliferation und den Anabolismus. Wenn die Energie hingegen abnimmt, greift AMPK ein, indem es die Aktivität von mTORC1 unterdrückt und den Stoffwechsel auf Prozesse zur Ressourcenschonung und -rückgewinnung ausrichtet (Smiles et al., 2024) [43]; (Al-Kuraishy et al., 2025) [46].

Diese antagonistische Beziehung stellt einen der wichtigsten metabolischen Checkpoints des gesamten Organismus dar. Durch die Phosphorylierung von Proteinen wie TSC2 ist AMPK in der Lage, die Aktivität von mTORC1 zu reduzieren, wodurch energieintensive zelluläre Programme vorübergehend unterbrochen und die Aktivierung kataboler, auf das Überleben ausgerichteter Signalwege gefördert werden (Smiles et al., 2024) [43]; (Mandic et al., 2025) [45].

Zu den Hauptzielen dieser Regulation gehört ULK1, eine Kinase, die als Ausgangspunkt des autophagischen Programms gilt. ULK1 stellt den Konvergenzknoten dar, über den AMPK und mTOR mit dem Autophagiesystem kommunizieren. Bei reichlich vorhandenen Nährstoffen phosphoryliert mTORC1 ULK1 an inhibitorischen Stellen, was den Start der Autophagie verhindert. Wenn die Energieressourcen hingegen abnehmen, modifiziert AMPK ULK1 durch verschiedene Phosphorylierungsereignisse, die die Aktivierung des autophagischen Programms und den Beginn der Autophagosomenbildung ermöglichen (Smiles et al., 2024) [43].

Viele Jahre lang wurde diese Beziehung nach einem relativ einfachen Modell interpretiert: Energiemangel, Aktivierung von AMPK, Hemmung von mTOR, Aktivierung von ULK1 und daraus resultierende Induktion der Autophagie. Dieses Paradigma dominierte die wissenschaftliche Literatur über zwei Jahrzehnte lang und wurde durch zahlreiche experimentelle Studien an Zellen, Tiermodellen und menschlichem Gewebe bestätigt (Kim, 2024) [44]; (Mandic et al., 2025) [45].

Nach dieser klassischen Sichtweise stellt die Autophagie ein Instrument dar, mit dem die Zelle während Perioden metabolischen Stresses Nährstoffe und Energiesubstrate zurückgewinnt. Durch die Beseitigung beschädigter Organellen, Proteinaggregate und anderer nicht mehr funktionsfähiger Komponenten kann die Zelle wertvolle Materialien recyceln und nutzen, um ihre lebenswichtigen Funktionen aufrechtzuerhalten (Mandic et al., 2025) [45].

Aus diesen Beobachtungen ist ein neues Interpretationsmodell entstanden. Dieser Perspektive zufolge wäre AMPK nicht einfach nur ein Aktivator der Autophagie, sondern ein dynamischer Regulator, der entscheiden kann, wann und in welchem Ausmaß der Prozess aktiviert werden muss. Während einer anfänglichen Phase schwerer Energiedepletion könnte AMPK die autophagische Maschinerie bewahren, indem es Proteine wie ULK1 in einem funktionell bereiten, aber vorübergehend inaktiven Zustand hält. Sobald günstigere energetische Bedingungen wiederhergestellt sind, könnte die Autophagie effizienter und nachhaltiger gestartet werden (Kim, 2024) [44].

Dieses Konzept wurde von einigen Autoren als Aufrechterhaltung der „autophagischen Kompetenz“ definiert. Mit anderen Worten: AMPK würde nicht nur das Ein- oder Ausschalten der Autophagie steuern, sondern sicherstellen, dass das gesamte System bereit bleibt, um zu reagieren, wenn die metabolischen Bedingungen dies zulassen (Kim, 2024) [44]; (Mandic et al., 2025) [45].

Auch im Skelettmuskel spielt die AMPK/mTOR/Autophagie-Achse eine zentrale Rolle. Während körperlicher Betätigung führt der erhöhte Energieverbrauch zur Aktivierung von AMPK, zur Unterdrückung von mTORC1 und zur koordinierten Stimulation der Autophagie und der lysosomalen Biogenese (der Prozess, durch den Zellen neue Lysosomen produzieren, kleine Organellen, die Abfallstoffe abbauen und recyceln). Dieser Prozess begünstigt die Entfernung beschädigter Proteine und dysfunktionaler Mitochondrien, was die Zellqualität, die Insulinsensitivität und die metabolische Flexibilität verbessert. Bei sarkopenischer Adipositas tragen diese Anpassungen gleichzeitig zur Erhaltung der Muskelmasse und zur Reduzierung der Fettansammlung bei (Zhang et al., 2026) [42].

Die Bedeutung von AMPK zeigt sich auch bei Herz-Kreislauf-Erkrankungen. Bei Atherosklerose begünstigen die chronische Aktivierung von mTOR und die Beeinträchtigung der Autophagie eine endotheliale Dysfunktion, vaskuläre Entzündungen und das Fortschreiten der atherosklerotischen Plaque. Im Gegensatz dazu verbessert die Aktivierung von AMPK den Lipidstoffwechsel, reduziert die Produktion entzündungsfördernder Zytokine und begünstigt die Wiederherstellung der physiologischen Autophagie, was zum Schutz der Gefäßwand beiträgt (Al-Kuraishy et al., 2025) [46].

Insgesamt zeigen die aktuellen Erkenntnisse, dass AMPK weit mehr als nur ein einfacher Energiesensor ist. Sie stellt einen der wichtigsten Dirigenten der zellulären Homöostase dar, der in der Lage ist, Wachstum, Überleben, Stoffwechsel und Autophagie durch ein extrem ausgeklügeltes Regulationsnetzwerk zu koordinieren. Die moderne Sichtweise beschreibt AMPK nicht mehr als einfachen Aktivator der Autophagie, sondern als kontextuellen Regulator, der die zelluläre Antwort kontinuierlich an die jeweiligen energetischen Bedingungen anpasst. Durch den Dialog mit mTOR trägt AMPK dazu bei, jenes dynamische Gleichgewicht aufrechtzuerhalten, das es den Zellen ermöglicht, auch bei erheblichem metabolischem Stress zu überleben, sich anzupassen und korrekt zu funktionieren.

Der Signalweg MT1 → AMPK ↑ → mTORC1 ↓

In den vorangegangenen Abschnitten haben wir gesehen, dass Melatonin weit mehr ist als nur ein einfaches Hormon, das an der Schlafregulation beteiligt ist. Wissenschaftliche Erkenntnisse zeigen vielmehr, dass es an der Kontrolle des Energiestoffwechsels, der Autophagie, der mitochondrialen Funktion, der Reaktion auf oxidativen Stress und dem Zellüberleben beteiligt ist. Im Zentrum vieler dieser Funktionen steht ein gemeinsamer Signalweg, die MT1–AMPK–mTORC1-Achse, die einen der wichtigsten Mechanismen darstellt, durch den Melatonin das zirkadiane Signal in konkrete biologische Anpassungen übersetzt.

Wenn Melatonin an seine Rezeptoren bindet, insbesondere an MT1, wird eine Kaskade intrazellulärer Ereignisse ausgelöst, die zur Aktivierung von AMPK führt, dem wichtigsten zellulären Energiesensor. Die Aktivierung von AMPK signalisiert der Zelle die Notwendigkeit, die Nutzung der verfügbaren Ressourcen zu optimieren, indem energieintensive anabole Prozesse reduziert und Mechanismen der zellulären Anpassung und Instandhaltung gefördert werden. Eines der Hauptziele dieser Regulation ist mTORC1, ein Proteinkomplex, der Wachstum, Proteinsynthese und Nährstoffspeicherung fördert, wenn die metabolischen Bedingungen günstig sind (Chen et al., 2020) [47]; (Zhang et al., 2019) [50].

Einfach ausgedrückt könnte man sich AMPK und mTORC1 als die beiden Seiten einer metabolischen Waage vorstellen. Wenn mTORC1 überwiegt, investiert die Zelle Energie in Wachstum und den Aufbau neuer Strukturen. Wenn hingegen AMPK aktiviert wird, priorisiert der Organismus die Ressourcenschonung, das Recycling beschädigter Komponenten und den Zellschutz. Melatonin scheint die Fähigkeit zu besitzen, diese Waage in Richtung metabolischer Programme zu verschieben, die stärker auf zelluläre Resilienz ausgerichtet sind, insbesondere während der Nachtstunden (Wang et al., 2019) [51]; (Chen et al., 2020) [47].

Eines der deutlichsten Beispiele für diesen Mechanismus stammt aus Studien zur Gefäßverkalkung. Bei diesem pathologischen Zustand nehmen die glatten Muskelzellen der Blutgefäße zunehmend Eigenschaften an, die denen von Knochenzellen ähneln, was die Ablagerung von Kalzium in der Arterienwand begünstigt. Chen und Mitarbeiter haben gezeigt, dass Melatonin AMPK aktiviert, mTORC1 hemmt und die Aktivität von ULK1 erhöht, wodurch die Autophagie gefördert und gleichzeitig die Kalziumablagerung sowie die apoptotische Aktivität der Gefäßzellen reduziert werden. Als die Forscher AMPK blockierten oder mTOR künstlich reaktivierten, verschwand ein Großteil der schützenden Wirkungen von Melatonin, was die zentrale Rolle der AMPK–mTORC1-Achse bestätigt (Chen et al., 2020) [47].

Dieselbe molekulare Architektur wurde auch im Nervensystem beobachtet. In Neuroblastomzellen, einer besonders aggressiven Tumorform, konnte Melatonin die Expression des Proteins Pak2 erhöhen, das wiederum AMPK aktiviert und die mTOR-Signalübertragung unterdrückt. In diesem Zusammenhang erfüllt die Autophagie keine schützende Funktion für die Tumorzelle, sondern trägt zu deren Eliminierung bei, was darauf hindeutet, dass Melatonin die AMPK–mTORC1-Achse nutzen kann, um das neoplastische Wachstum zu begrenzen (Qiu et al., 2026) [40].

Die im Fortpflanzungssystem gesammelten Erkenntnisse zeigen eine bemerkenswerte Übereinstimmung mit diesen Ergebnissen. Im Gelbkörper (Corpus luteum) von Schafen fällt die Phase der höchsten Progesteronproduktion mit der höchsten Expression der MT1- und MT2-Rezeptoren und dem intensivsten autophagischen Fluss zusammen. Dies deutet darauf hin, dass Melatonin die Steroidogenese (den Prozess, bei dem der Organismus Cholesterin in Steroidhormone umwandelt) gerade durch die Modulation der durch die AMPK–mTOR-Achse vermittelten Autophagie unterstützen könnte. In diesem Szenario erscheint die Autophagie nicht als ein Selbstzweck-Abbaumechanismus, sondern als ein Instrument, mit dem die Lutealzelle ihren Stoffwechsel optimiert, um die Hormonsynthese zu unterstützen (Duan et al., 2024) [48].

Ein ähnliches Bild ergibt sich im alternden Eierstock. Mit zunehmendem Alter beeinträchtigen die Ansammlung reaktiver Sauerstoffspezies, die Verschlechterung der mitochondrialen Funktion und die Störung der Energiehomöostase zunehmend die Eizellqualität. Studien an Mausmodellen haben gezeigt, dass die chronische Verabreichung von Melatonin die Anzahl der gewinnbaren Eizellen erhöht, die Embryoqualität verbessert und die Fruchtbarkeit steigert. Diese Effekte sind eng von der Aktivierung des MT1-Rezeptors und des AMPK-Signalwegs abhängig, wie die ausgeprägte Verringerung der Fruchtbarkeit bei Tieren ohne MT1-Rezeptor zeigt. Die Aktivierung dieser Achse ist zudem mit einer Reduzierung von oxidativem Stress, einer höheren antioxidativen Aktivität und einer besseren Erhaltung der mitochondrialen Funktion verbunden (Zhang et al., 2019) [50].

Auch das männliche Fortpflanzungssystem scheint von derselben biologischen Regulation zu profitieren. Bei der Kryokonservierung von Spermien führt das Einfrieren und Auftauen zu einer massiven Produktion reaktiver Sauerstoffspezies, die die Motilität, die Zellintegrität und die Befruchtungsfähigkeit beeinträchtigt. Zhu und Mitarbeiter beobachteten, dass Melatonin die Phosphorylierung von AMPK signifikant erhöht, die intrazellulären ROS-Spiegel reduziert, die Lipidperoxidation begrenzt und das Überleben der Spermien nach dem Auftauen verbessert. Die Tatsache, dass diese Effekte durch die Blockade der Melatoninrezeptoren abgeschwächt werden, deutet erneut auf eine funktionelle Verbindung zwischen MT1, AMPK und den zellulären Schutzmechanismen hin (Zhu et al., 2019) [49].

Einer der interessantesten Aspekte, die sich aus der Forschung ergeben haben, betrifft den Lipidstoffwechsel. In bovinen Brustepithelzellen induziert Melatonin einen Anstieg der Expression des MT1-Rezeptors und eine deutliche Verringerung der Phosphorylierung von mTOR und seinen Haupteffektoren. Diese Veränderung geht mit einer Abnahme der Triglyceridsynthese, der Bildung intrazellulärer Lipidtröpfchen und der Fettansammlung in der Milch einher. Wenn mTOR experimentell reaktiviert wird, werden die Wirkungen von Melatonin aufgehoben, was beweist, dass die Unterdrückung von mTOR den entscheidenden Schritt dieses Mechanismus darstellt (Wang et al., 2019) [51].

Betrachtet man diese Ergebnisse in ihrer Gesamtheit, so ergibt sich ein überraschend konsistentes biologisches Modell. In sehr unterschiedlichen Geweben und Zuständen – Blutgefäße, Gehirn, Eierstock, Gelbkörper, Spermien und Brustdrüse – tendiert Melatonin dazu, auf denselben regulatorischen Knotenpunkten zu konvergieren. Die Aktivierung der MT1-Rezeptoren begünstigt die Aktivierung von AMPK; AMPK reduziert die Aktivität von mTORC1; die Verringerung der mTORC1-Signalübertragung ermöglicht die Aktivierung adaptiver Programme wie Autophagie, mitochondrialer Schutz, Kontrolle von oxidativem Stress und metabolische Regulation.

Diese Beobachtung legt nahe, dass Melatonin nicht einfach als Signal für Dunkelheit fungiert, sondern als systemischer Koordinator der zellulären Energieökonomie. Während der Nacht, wenn der Organismus viele der mit der Außenwelt verbundenen Aktivitäten reduziert, scheint Melatonin Prozesse der Instandhaltung, Reparatur, des Recyclings und der metabolischen Optimierung zu fördern. Über die MT1–AMPK–mTORC1-Achse trägt es dazu bei, das Gleichgewicht zwischen Wachstum und Erhaltung, zwischen Synthese und Recycling, zwischen Energieverbrauch und Zellüberleben aufrechtzuerhalten.

Angesichts der derzeit verfügbaren Erkenntnisse kann der MT1–AMPK–mTORC1-Signalweg als einer der wichtigsten biologischen Mechanismen angesehen werden, durch den Melatonin seine systemischen Wirkungen ausübt. Die außergewöhnliche Konservierung dieser Achse in verschiedenen Geweben deutet darauf hin, dass sie ein zentrales Element der Melatonin-Physiologie darstellt und ein mögliches therapeutisches Ziel für zahlreiche Erkrankungen ist, die durch metabolische Dysfunktion, gestörte Autophagie, oxidativen Stress und Zellalterung gekennzeichnet sind.

Schlussfolgerungen

Der Weg, den wir in diesem Kapitel beschritten haben, hat uns geholfen zu verstehen, dass Melatonin weit mehr ist als nur das „Schlafhormon“. Dieses Molekül, das hauptsächlich von der Zirbeldrüse, aber auch von zahlreichen peripheren Geweben produziert wird, ist an der Regulierung der zirkadianen Rhythmen und am Zellschutz beteiligt. Die Forschung beschreibt seine antioxidativen, entzündungshemmenden und immunmodulierenden Eigenschaften. Zudem trägt Melatonin dazu bei, die Funktionalität der Mitochondrien zu bewahren, indem es die Energieproduktion unterstützt und die durch oxidativen Stress verursachten Schäden begrenzt. Diese Aktivitäten zeigen, wie ein Molekül, das mit Ruhe assoziiert wird, zahlreiche grundlegende Prozesse für die Gesundheit beeinflussen kann.

Wir haben daher seine Rolle bei der Schlafregulierung vertieft. Klinische Studien zeigen Vorteile für die Schlafqualität und die Einschlafzeit, obwohl die Wirkungen je nach individuellen Bedingungen variieren. Günstige Ergebnisse wurden bei Erwachsenen mit Schlafstörungen, bei Patienten mit Parkinson, bei Kindern mit neurologischen Entwicklungsstörungen sowie unter bestimmten Krankenhausbedingungen beobachtet. Melatonin wirkt also nicht einfach nur schlaffördernd, sondern trägt dazu bei, die biologischen Mechanismen zu synchronisieren, die den Übergang vom Wachzustand zum Schlaf regulieren.

Um diesen Prozess zu verstehen, haben wir den MT1-Rezeptor untersucht, über den Melatonin einen Teil seiner Signale an die Nervenzellen überträgt. Experimentelle Untersuchungen deuten darauf hin, dass MT1 zur Organisation des REM-Schlafs, zur Stabilität seiner Phasen und zur Regulierung der zirkadianen Rhythmen beiträgt. Eine besonders wichtige Rolle zeigt sich im Locus coeruleus, einer Gehirnregion, die Noradrenalin produziert und für die Aufrechterhaltung von Aufmerksamkeit und Wachheit entscheidend ist. Während des Wachzustands ist dieses System aktiv, während seine Aktivität im REM-Schlaf drastisch abnimmt. Die Aktivierung von MT1 kann diese Reduktion begünstigen und so den Eintritt in den REM-Schlaf erleichtern.

Doch der Locus coeruleus agiert nicht isoliert. Seine Aktivität wird auch durch Orexin unterstützt, ein Molekül, das von Neuronen des lateralen Hypothalamus produziert wird. Wenn der Orexinspiegel steigt, stimuliert dies die Freisetzung von Noradrenalin und fördert die Aufrechterhaltung des Wachzustands. Diese Verbindung ermöglicht es, das Verhältnis zwischen zwei Systemen mit gegensätzlichen Funktionen zu verstehen. Einerseits trägt Melatonin dazu bei, die Aktivität der Wachheitskreisläufe zu reduzieren; andererseits hält Orexin diese aktiv. Experimentelle Studien legen zudem nahe, dass Melatonin über MT1 direkt auf orexinerge Neuronen wirken und so den Non-REM-Schlaf fördern kann.

Die Rolle von MT1 beschränkt sich jedoch nicht auf das Gehirn. Die Forschung dokumentiert sein Vorkommen im Darm, in der Bauchspeicheldrüse, in den Blutgefäßen, in Immunzellen und in zahlreichen anderen Geweben. Diese Verteilung verknüpft Melatonin mit der Regulierung des Glukosestoffwechsels, der Insulinausschüttung, des Gefäßtonus und der Entzündungsreaktionen. Das zirkadiane Signal kann somit Funktionen beeinflussen, die den gesamten Organismus betreffen.

Aus dieser systemischen Sicht ergibt sich ein weiterer Mechanismus, durch den Melatonin zum Zellschutz beiträgt: die Autophagie. Dieser Prozess ermöglicht es den Zellen, beschädigte Komponenten zu eliminieren und zu recyceln, wodurch ihre Funktionsfähigkeit erhalten bleibt. Melatonin kann deren Aktivität regulieren und dabei auch die Entfernung beeinträchtigter Mitochondrien durch Mitophagie fördern. Experimentelle Studien haben schützende Wirkungen in verschiedenen Geweben aufgezeigt, während einige Tumormodelle zeigen, wie die Autophagie zum Absterben neoplastischer Zellen beitragen kann.

Doch durch welche Mechanismen gelingt es Melatonin, dieses Zellrecyclingsystem zu steuern? Die Antwort betrifft hauptsächlich AMPK und mTORC1, zwei Proteine, die das Energiegleichgewicht und die Autophagie regulieren. AMPK fördert die Energieeinsparung und die Ressourcenrückgewinnung, während mTORC1 das Zellwachstum und die Proteinsynthese unterstützt. In verschiedenen experimentellen Modellen fördert Melatonin die Aktivierung von AMPK und die Reduktion der Aktivität von mTORC1. Dieses Gleichgewicht ermöglicht es, die Autophagie je nach zellulärem Bedarf zu modulieren, was zum Schutz des Gewebes und zur Aufrechterhaltung der mitochondrialen Funktionalität beiträgt.

So ergibt sich das zentrale Prinzip des Kapitels: Melatonin verbindet die Schlafregulierung mit den Mechanismen, die das Energie- und Zellgleichgewicht aufrechterhalten. Seine möglichen therapeutischen Anwendungen sind weiterhin Gegenstand der Forschung, aber seine physiologische Rolle erscheint weitaus umfassender als die bloße Einleitung des Schlafs.

Quellen

[1] Comprehensive review of melatonin as a promising nutritional and nutraceutical supplement

Kamfar et al., 2024

Heliyon. 2024;10(2):e24266.

[2] Melatonin: beyond circadian regulation— exploring its diverse physiological roles and therapeutic potential

Jia et al., 2025

Sleep Medicine Reviews. 2025;82:102123.

[3] Melatonin, Brain Aging and Neuroprotection: New Evidence on the Role of a Potent Anti-Aging Modulator

Bocheva et al., 2024

International Journal of Molecular Sciences. 2024;25(10):5122.

[4] Melatonin and Mitochondrial Neuroprotection: New Therapeutic Perspectives in Neurodegenerative Diseases

Bao et al., 2026

Biology (Basel). 2026;15(2):189.

[5] Dual Sources of Melatonin and Evidence Supporting Distinct Primary Functions

Reiter et al., 2024

Frontiers in Endocrinology. 2024;15:1414463.

[6] Melatonin Supplementation: New Perspectives on Health and Disease

Minari e Pisani, 2025

Sleep and Breathing. 2025;29(2):169.

[7] The Effects of Melatonin Supplementation on Sleep Quality: A Systematic Review and Meta-Analysis of Randomized Controlled Trials

Fatemeh et al., 2022

Journal of Neurology. 2022;269(1):205-216.

[8] Effect of Melatonin on Insomnia and Daytime Sleepiness in Patients with Obstructive Sleep Apnea and Insomnia (COMISA): A Randomized Double-Blind Placebo-Controlled Trial

Motlaq et al., 2024

Journal of Pharmaceutical Health Care and Sciences. 2024;10(1):25.

[9] The Effect of Melatonin on Sleep Quality and Daytime Sleepiness in Parkinson's Disease: A Systematic Review and Meta-Analysis of Placebo-Controlled Randomized Trials

Zrineh et al., 2025

Sleep Medicine. 2025;131:106540.

[10] Use of Melatonin in Children with Neurodevelopmental Disorders and Impaired Sleep (MENDS): A Randomised, Double-Blind, Placebo-Controlled Parallel Study

Appleton et al., 2012

Health Technology Assessment. 2012;16(40):i-239.

[11] Improving Sleep Quality and Quantity in Hospitalized Patients with Melatonin: A Quality Improvement Project at HCA Oak Hill Hospital

Ren et al., 2025

Cureus. 2025;17(12):e100510.

[12] Sleep Well. Untangling the Role of Melatonin MT1 and MT2 Receptors in Sleep

Gobbi e Comai, 2019

Journal of Pineal Research. 2019;66(3):e12544.

[13] Differential Function of Melatonin MT1 and MT2 Receptors in REM and NREM Sleep

Gobbi e Comai, 2019

Frontiers in Endocrinology. 2019;10:87.

[14] Characterization of the Sleep-Wake Cycle in MT1/MT2 Double Knockout Mice and Comparison with MT1 and MT2 Receptor Knockout Mice

Comai et al., 2013

Behavioural Brain Research. 2013;243:231-238.

[15] Melatonin, Melatonin Receptors and Sleep: Beyond Traditional Views

Comai e Gobbi, 2024

Journal of Pineal Research. 2024;76(7):e13011.

[16] Exogenous Melatonin Neuroprotective Effect on Noradrenergic Neurons of the Locus Coeruleus Following REM Sleep Deprivation in Adult Male Rats

Jameie et al., 2019

Journal of Chemical Neuroanatomy. 2019;100:101656.

[17] Importance of the Locus Coeruleus-Norepinephrine System in Sleep-Wake Regulation: Implications for Aging and Alzheimer's Disease

Van Egroo et al., 2022

Sleep Medicine Reviews. 2022;62:101592.

[18] Chronic Sleep Restriction Causes Enduring Sleep-Wake Disturbances and Degeneration of Locus Coeruleus and Orexinergic Neurons

Zhu et al., 2016

Sleep. 2016;39(8):1601-1611.

[19] Selective Enhancement of REM Sleep in Male Rats by Melatonin MT1 Receptor Activation in Locus Coeruleus Noradrenergic Neurons

López-Canul et al., 2024

Journal of Neuroscience. 2024;44(29):e0914232024.

[20] When the Locus Coeruleus Wakes Up During Sleep: Recent Insights and Emerging Perspectives

Osorio-Forero et al., 2022

International Journal of Molecular Sciences. 2022;23(9):5028.

[21] Hypocretin (orexin) activation and synaptic innervation of the locus coeruleus noradrenergic system

Horvath et al., 1999

Journal of Comparative Neurology. 1999;415(2):145-159. <145::AID-CNE1>3.0.CO;2-2.

[22] Orexin A Activates Locus Coeruleus Cell Firing and Increases Arousal in the Rat

Hagan et al., 1999

Proceedings of the National Academy of Sciences of the United States of America. 1999;96(19):10911-10916.

[23] Hypocretin-1 Modulates Rapid Eye Movement Sleep Through Activation of the Locus Coeruleus Neurons

Bourgin et al., 2000

Journal of Neuroscience. 2000;20(20):7760-7765.

[24] The Neural Circuit of Orexin (Hypocretin): Maintaining Sleep and Wakefulness

Sakurai, 2007

Nature Reviews Neuroscience. 2007; 8(3):171-181.

[25] Orexin Neurons Suppress Narcolepsy via 2 Distinct Effector Pathways

Hasegawa et al., 2014

Journal of Clinical Investigation. 2014;124(2):604-616.

[26] Melatonin Inhibits Orexin Neurons in the Perifornical Lateral Hypothalamus and Promotes Non-Rapid Eye Movement Sleep in Mice

Sharma et al., 2018

Journal of Pineal Research. 2018;65(2):e12498.

[27] The Role of Orexin Neuronal Activity in Sleep-Wake Regulation

Hung e Yamanaka, 2023

Peptides. 2023;165:171007.

[28] Effectiveness of a Melatonin Receptor Agonist and Orexin Receptor Antagonists in Preventing Delirium Symptoms in Elderly Patients With Stroke: A Retrospective Study

Miyoshi et al., 2024

Journal of Pharmaceutical Health Care and Sciences. 2024;10(1):74.

[29] Update on Melatonin Receptors: IUPHAR Review 20

Jockers et al., 2016

British Journal of Pharmacology. 2016;173(18):2702-2725.

[30] Human Gastroenteropancreatic Expression of Melatonin and its MT1 and MT2 Receptors

Söderquist et al., 2015

PLoS One. 2015;10(3):e0120195.

[31] Melatonin Membrane Receptors in Peripheral Tissues: Distribution and Functions

Slominski et al., 2012

Molecular and Cellular Endocrinology. 2012;351(2):152-166.

[32] Melatonin Membrane Receptors in the Vascular System: Function, Modulation and Clinical Relevance

da Rocha-Carvalho et al., 2025

Journal of Pineal Research. 2025;77(6):e70090.

[33] Cellular Signaling of Melatonin and its Role in Metabolic Disorders

Tripathy e Bhattamisra, 2025

Molecular Biology Reports. 2025;52(1):193.

[34] Role of Melatonin in the Regulation of Autophagy and Mitophagy: A Review

Coto-Montes et al., 2012

Molecular and Cellular Endocrinology. 2012;361(1-2):12-23.

[35] Potential Therapeutic Actions of Melatonin in the Regulation of Autophagy: A Review

Boga et al., 2019

Journal of Pineal Research. 2019;66(1):e12534.

[36] Melatonin Prevents Chronic Intermittent Hypoxia-Induced Injury by Inducing Sirtuin 1-Mediated Autophagy in Steatotic Liver of Mice

Ren et al., 2019

Sleep and Breathing. 2019;23(3):825-836.

[37] Melatonin Induces Autophagy via Reactive Oxygen Species-Mediated Endoplasmic Reticulum Stress Pathway in Colorectal Cancer Cells

Chok et al., 2021

Molecules. 2021;26(16):5038.

[38] Potential Influence of Melatonin on Mitochondrial Quality Control: A Review

Lei et al., 2024

Frontiers in Pharmacology. 2024;14:1332567.

[39] Modulation of Autophagy by Melatonin and Its Receptors: Implications in Brain Disorders

Zhu et al., 2025

Acta Pharmacologica Sinica. 2025;46(3):525-538.

[40] Melatonin Induces Autophagy in Neuroblastoma by Alleviating Pak2-Mediated Endoplasmic Reticulum Stress

Qiu et al., 2026

Molecular Medicine Reports. 2026;33(2):74.

[41] Melatonin Improves Osteogenic Differentiation in a High-Glucose Environment by Activating NRF2 to Promote Autophagy Through Regulation of Macrophage–BMSC Crosstalk

Zhang et al., 2026

Inflammation Research. 2026;75(1):112.

[42] Exercise as a Metabolic Regulator: Targeting AMPK/mTOR-Autophagy Crosstalk in Sarcopenic Obesity

Zhang et al., 2026

Aging and Disease. 2026;17(4):1904–1915.

[43] New Developments in the Interplay Between AMPK and mTORC1

Smiles et al., 2024

Essays in Biochemistry. 2024;68(3):321-336.

[44] Contrasting Views on the Role of AMPK in Autophagy

Kim, 2024

BioEssays. 2024;46(3):e2300211.

[45] AMPK and Autophagy: The Dual Nature of an Energy Sensor in the Regulation of Cellular Survival

Mandic et al., 2025

American Journal of Physiology - Cell Physiology. 2025;329(5):C1380-C1397.

[46] Targeting the AMPK/mTOR Signaling Pathway in Atherosclerosis Management: The Ultimate Leverage

Al-Kuraishy et al., 2025

International Journal of Biological Macromolecules. 2025;309(Pt 2):142933.

[47] Melatonin Attenuates Vascular Calcification by Activating Autophagy via an AMPK/mTOR/ULK1 Signaling Pathway

Chen et al., 2020

Experimental Cell Research. 2020;389(1):111883.

[48] Melatonin Promotes Progesterone Secretion in Sheep Luteal Cells by Regulating Autophagy Through the AMPK/mTOR Pathway

Duan et al., 2024

Theriogenology. 2024;214:342-351.

[49] Melatonin Protects Rabbit Sperm During Cryopreservation by Reducing Oxidative Stress Through AMPK Activation

Zhu et al., 2019

Cryobiology. 2019;88:1-8.

[50] Melatonin Regulates Ovarian Activity and Delays Fertility Decline Through the MT1/AMPK Signaling Pathway

Zhang et al., 2019

Journal of Pineal Research. 2019;66(3):e12550.

[51] Melatonin Suppresses Milk Fat Synthesis Through MT1-Mediated Inhibition of mTOR Signaling in Bovine Mammary Epithelial Cells

Wang et al., 2019

Journal of Pineal Research. 2019;67(3):e12593.