
Scientific Book

Polyarthrite rhumatoïde et métabolisme de la réponse articulaire

La polyarthrite rhumatoïde est une maladie auto-immune caractérisée par une inflammation chronique des articulations, dans laquelle les cellules immunitaires et les médiateurs inflammatoires contribuent aux lésions articulaires. Les recherches sur l'immunométabolisme mettent en évidence l'implication des voies PI3K/AKT/mTOR, de la glycolyse et de l'équilibre entre les lymphocytes Th17 et Treg. Dans le livre « La scelta di Vivere in Salute o in Malattia », le Dr A. Colonnese et R. Panzironi approfondissent ces processus afin de comprendre les liens biologiques entre métabolisme, inflammation et auto-immunité.

Citer cet article
Colonnese, A. & Panzironi, R. (2026). Polyarthrite rhumatoïde et métabolisme de la réponse articulaire. Le choix de vivre en santé ou en maladie. https://lifesciencehub.info/fr/la-scelta-di-vivere-in-salute-o-in-malattia/polyarthrite-rhumatoide-et-metabolisme-de-la-reponse-articulaire
Le choix de vivre en santé ou en maladie · ISBN 979-12-82692-04-5

DOI lsh.fr.libro.7

  • Publication 05/11/2026
  • Mise à jour 05/11/2026
  • POLYARTHRITE RHUMATOÏDE
  • IMMUNOMÉTABOLISME
  • LYMPHOCYTES TH17/TREG
  • INSULINORÉSISTANCE
  • MTOR/HIF-1Α
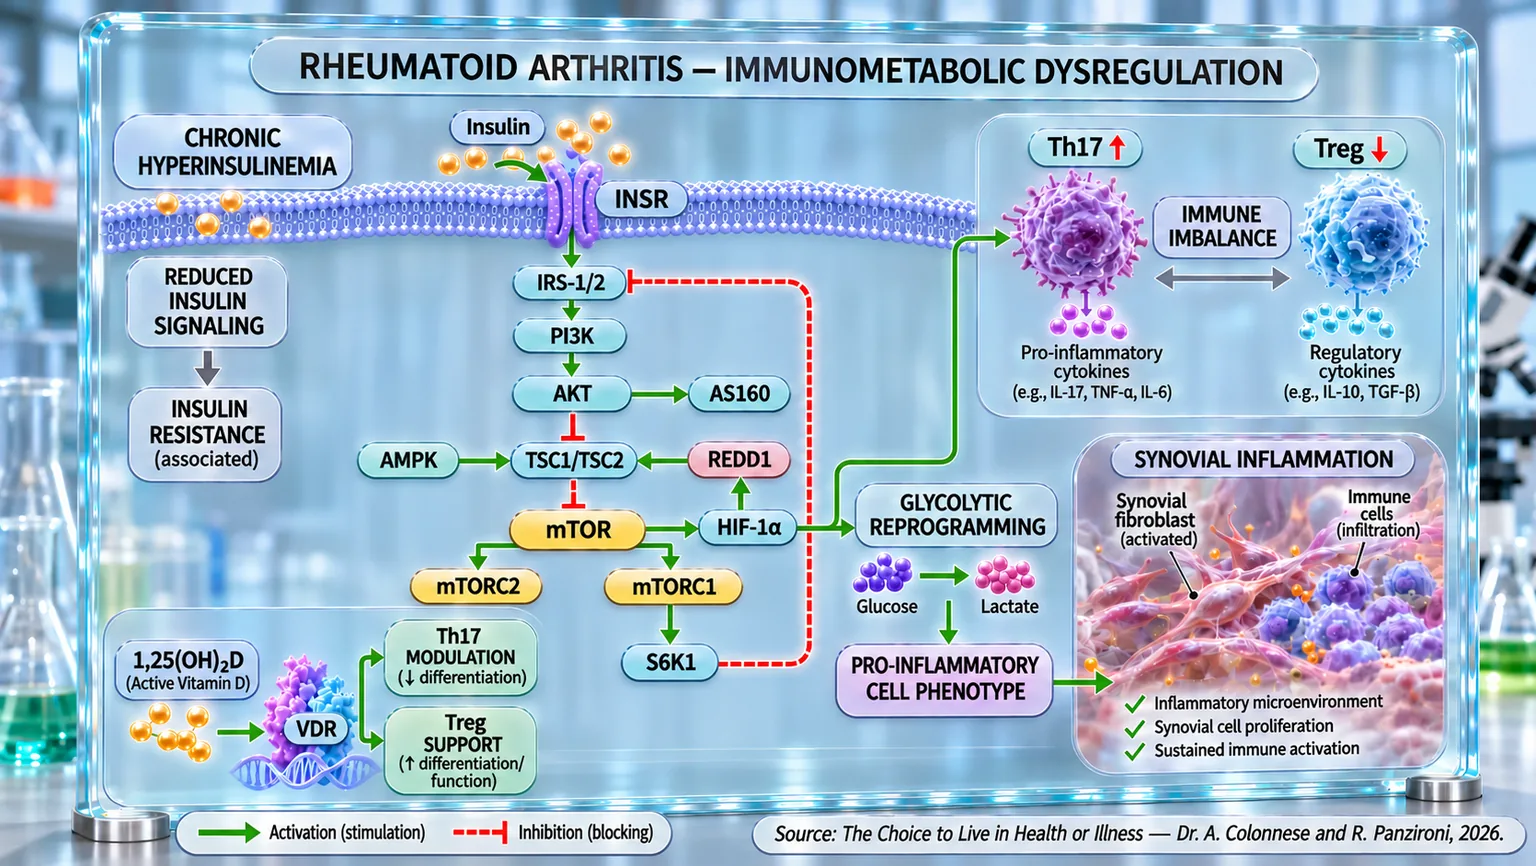
Infographie de flux montrant le récepteur à l'insuline, les nœuds métaboliques, les cellules Th17 et Treg et le tissu synovial infiltré par des cellules immunitaires.
Ce schéma relie l'hyperinsulinémie chronique et la réduction de la signalisation insulinique aux voies INSR–IRS-1/2–PI3K–AKT–mTOR et HIF-1α, à la reprogrammation glycolytique et au déséquilibre Th17/Treg ; il indique également la modulation par la vitamine D/VDR, en soulignant les circuits immunométaboliques associés au phénotype pro-inflammatoire et à l'inflammation synoviale dans la polyarthrite rhumatoïde.

ABSTRACT

La polyarthrite rhumatoïde est une pathologie auto-immune caractérisée par une inflammation articulaire et des altérations métaboliques qui interagissent avec la régulation immunitaire. Dans le livre "La scelta di Vivere in Salute o in Malattia", le Dr A. Colonnese et R. Panzironi examinent ces connexions sous l'angle de l'immunométabolisme, en considérant les mécanismes cellulaires et les futures implications thérapeutiques possibles.

Un élément central du tableau immunopathologique concerne le déséquilibre entre les lymphocytes Th17, associés à la réponse pro-inflammatoire, et les cellules Treg, responsables de la tolérance immunitaire. Les altérations du rapport Tfh/Tfr peuvent également favoriser l'activation des lymphocytes B et la production d'auto-anticorps, contribuant à la perte de la tolérance immunitaire. Parallèlement, une insulinorésistance est fréquemment observée chez les patients, parfois dès les phases initiales et indépendamment de l'exposition aux glucocorticoïdes. La contribution éventuelle d'une hyperinsulinémie préalable, associée à une clairance insulinique réduite, demeure une hypothèse interprétative à vérifier spécifiquement dans le cadre de cette maladie.

La voie mTOR représente un point de convergence possible : elle soutient la différenciation des cellules effectrices, y compris les lymphocytes Th17, et participe à la prolifération synoviale ainsi qu'à l'angiogenèse. Par le biais de HIF-1α, elle peut également favoriser la reprogrammation glycolytique des macrophages, des fibroblastes synoviaux et d'autres populations immunitaires, contribuant au maintien de programmes inflammatoires dans le microenvironnement articulaire. L'inhibition de mTOR par la rapamycine ou le sirolimus a montré, dans les recherches décrites, des modifications favorables des populations régulatrices et des réductions de l'activité de la maladie, tout en nécessitant une évaluation distincte des résultats expérimentaux et cliniques ainsi que de leur applicabilité thérapeutique.

Un autre domaine concerne la vitamine D : des concentrations plus faibles sont fréquemment associées à une activité accrue de la maladie, tandis que le calcitriol peut moduler la différenciation Th17/Treg. Certaines études sur la supplémentation font état d'améliorations cliniques, sans toutefois démontrer un bénéfice universel ou une relation causale directe.

Dans l'ensemble, le métabolisme insulinique, la signalisation mTOR/HIF-1α et la différenciation immunitaire dessinent des processus potentiellement interdépendants. Leur compréhension soutient l'étude de cibles thérapeutiques, tout en évitant d'attribuer à l'hyperinsulinémie un rôle causal déjà démontré dans la polyarthrite rhumatoïde.

Épidémiologie de la polyarthrite rhumatoïde

La polyarthrite rhumatoïde (PR) est une maladie inflammatoire chronique qui touche principalement les articulations, mais qui ne s'y limite pas exclusivement. Sa prévalence dans la population mondiale n'est pas négligeable : on estime qu'environ 0,5 à 1 % des adultes dans les pays développés en souffrent, un pourcentage qui se traduit par plus de 18 millions de personnes à l'échelle mondiale. Cette donnée, apparemment contenue, dissimule toutefois un impact clinique et social extrêmement important, surtout en termes de qualité de vie et de coûts de santé.

D'un point de vue démographique, la maladie touche de manière marquée le sexe féminin : sept patients sur dix sont des femmes, avec un rapport femme/homme variant entre 2:1 et 4:1 selon les cohortes analysées. Ce déséquilibre suggère un rôle possible des hormones sexuelles féminines ou de facteurs génétiques et immunologiques liés au genre.

En ce qui concerne l'âge de début, la polyarthrite rhumatoïde se manifeste le plus fréquemment entre 40 et 60 ans, avec un diagnostic qui survient souvent autour de 50-55 ans. Cependant, le poids clinique de la maladie tend à augmenter avec l'âge, si bien que le pic de prévalence (indice épidémiologique qui indique combien de personnes dans une population ont une certaine maladie ou condition à un moment ou une période donnée) s'observe typiquement dans les tranches les plus âgées de la population, entre 65 et 80 ans. Cette tendance reflète à la fois l'effet cumulatif de la maladie dans le temps et une plus grande vulnérabilité des sujets les plus âgés.

Traditionnellement, la polyarthrite rhumatoïde a été décrite et traitée comme une maladie exclusivement immunologique, dans laquelle le système immunitaire « s'emballe » et attaque ses propres tissus. Cette définition, bien que partiellement correcte, apparaît aujourd'hui limitée. Les découvertes scientifiques les plus récentes ont montré que la maladie n'est pas simplement le fruit d'une réponse immunitaire dérégulée, mais aussi le résultat d'une série d'altérations métaboliques qui alimentent et amplifient le processus auto-immun. Il ne s'agit donc pas seulement d'une erreur du système immunitaire, mais d'un dialogue pathologique entre métabolisme et immunité, qui transforme la PR en une condition à la fois auto-immune et métabolique-hormonale.

Dans ce scénario complexe, les lymphocytes T émergent comme des protagonistes centraux dans la pathogenèse de la polyarthrite rhumatoïde. Il s'agit de cellules clés de la réponse immunitaire adaptative, normalement chargées de la reconnaissance et de l'élimination des agents étrangers. Cependant, dans le contexte de la PR, certains sous-types de lymphocytes T, en particulier les lymphocytes T auxiliaires CD4+, subissent une activation anormale, même en l'absence de danger réel. Ces cellules finissent par reconnaître leurs propres tissus comme des « ennemis », déclenchant une cascade inflammatoire chronique qui implique la synoviale (liquide muqueux contenu dans les articulations), les articulations et, dans de nombreux cas, d'autres zones systémiques.

Mais l'aspect le plus intéressant concerne l'interconnexion profonde entre activation immunitaire et métabolisme hormonal. Les lymphocytes T, pour remplir leur fonction, nécessitent une remodelage métabolique actif : au moment de l'activation, ces cellules passent d'un état classique de métabolisme oxydatif (utilisation de sucres, de graisses et de protéines selon les besoins de l'organisme) à un état de glycolyse aérobie (utilisation exclusive de sucres, processus dépendant du glucose) : ce processus est connu, surtout en oncologie, sous le nom d'« effet Warburg » (du nom d'Otto Heinrich Warburg, qui a reçu le prix Nobel de médecine en 1931 pour avoir été le premier à observer que les cellules tumorales, même en présence d'oxygène suffisant, tendaient à produire de l'énergie en recourant principalement à la glycolyse et non au métabolisme oxydatif). Ce basculement métabolique est fondamental pour soutenir la prolifération rapide et la synthèse de cytokines inflammatoires (molécules de communication qui favorisent et coordonnent l'inflammation).

Dans le cas de la polyarthrite rhumatoïde, cet état métabolique hyperactif se consolide et devient chronique, contribuant à maintenir l'inflammation et à perpétuer l'auto-immunité. Il ne s'agit pas seulement d'une réponse fonctionnelle temporaire, mais d'une véritable « rééducation métabolique » du lymphocyte T, qui adopte un comportement pro-inflammatoire stable et autoréactif. Cet état pathologique est en outre amplifié par des facteurs environnementaux tels que l'alimentation, le stress et le mode de vie en général.

Déséquilibres des lymphocytes T

L'un des piliers immunologiques qui émergent avec force dans la polyarthrite rhumatoïde est le déséquilibre des lymphocytes T, les cellules qui agissent comme les chefs d'orchestre du système immunitaire. En particulier, le rapport délicat entre les cellules effectrices pro-inflammatoires et les cellules régulatrices apparaît profondément altéré. Chez les patients atteints de polyarthrite rhumatoïde active, les cellules Th17 (Teff), connues pour leur production de cytokines inflammatoires telles que l'IL-17, sont augmentées, tandis que les cellules T régulatrices (Treg), chargées de freiner les réponses auto-immunes et de maintenir la tolérance, apparaissent réduites tant en nombre qu'en fonctionnalité. Ce déséquilibre, souvent quantifié comme le rapport Th17/Treg, est fortement déséquilibré en faveur des premières et est directement corrélé à la gravité clinique et aux marqueurs sérologiques de la maladie (Wang et al., 2012) [1]. C'est comme si l'accélérateur de l'auto-immunité était enfoncé au maximum, tandis que le frein régulateur était affaibli.

Les anomalies des Treg ne se limitent pas à leur rareté, mais concernent également un défaut intrinsèque de fonction. Des études ont montré que les Treg chez les patients atteints de PR ne sont pas en mesure de supprimer efficacement l'inflammation articulaire, contribuant à la persistance de la réponse auto-immune. Des défauts similaires, observés dans d'autres maladies auto-immunes comme la sclérose en plaques, confirment que le dysfonctionnement régulateur est un fil conducteur commun de nombreuses pathologies immunitaires (Buckner, 2010) [2]. À l'inverse, l'expansion ou le rétablissement des Treg semble être corrélé à des améliorations cliniques, au point d'être aujourd'hui considéré comme l'une des stratégies thérapeutiques les plus prometteuses (Zhang et al., 2024) [3].

Le rôle des Treg se manifeste dès les phases précoces de la maladie : les patients atteints de polyarthrite rhumatoïde non traitée présentent en effet une réduction significative de ces cellules par rapport aux témoins sains. Il est intéressant de noter que le traitement par méthotrexate, l'un des médicaments de première intention, réduit non seulement l'activité clinique de la maladie mais augmente également le nombre et la fonctionnalité des Treg, suggérant qu'une partie de son bénéfice thérapeutique découle précisément de cette modulation immunorégulatrice (Avdeeva et al., 2020) [4]. En d'autres termes, en plus d'« éteindre » l'inflammation, le méthotrexate semble également « rééduquer » le système immunitaire pour retrouver un équilibre entre les T eff et les T reg.

Un constat similaire s'applique aux cellules T régulatrices folliculaires (Tfr), un sous-groupe spécialisé de Treg qui agit au sein des centres germinatifs (zones spécialisées à l'intérieur des follicules lymphatiques), régulant l'activité des T folliculaires helper (Tfh, une forme de T effecteurs). Ces dernières sont connues pour stimuler les lymphocytes B (cellules immunitaires qui contribuent à la défense de l'organisme en produisant des anticorps) et favoriser la production d'auto-anticorps, une caractéristique clé de la PR. Chez les patients en rémission stable, on observe une augmentation des Tfr et une réduction du rapport Tfh/Tfr, associée à des niveaux plus bas d'auto-anticorps comme le facteur rhumatoïde (auto-anticorps fréquemment associé à la polyarthrite rhumatoïde) et les anti-CCP (auto-anticorps utilisés surtout pour aider à diagnostiquer la polyarthrite rhumatoïde). Cela suggère que le rééquilibrage entre Tfr et Tfh représente un marqueur de rémission et une cible thérapeutique potentielle (Liu et al., 2018) [5] ; (Wang et al., 2019) [6] ; (Cao et al., 2020) [7].

En définitive, le tableau qui émerge est celui d'un système immunitaire qui a perdu l'harmonie entre ses composants. Les cellules effectrices, comme les Th17 et les Tfh, prennent le dessus, alimentant une inflammation chronique qui entraîne des dommages articulaires et des auto-anticorps, tandis que les cellules régulatrices, Treg et Tfr, sont affaiblies ou dysfonctionnelles, incapables de rétablir la tolérance. Les thérapies traditionnelles comme le méthotrexate, et celles plus innovantes basées sur l'inhibition de mTOR ou sur l'expansion des Treg, ont en commun l'objectif de rétablir cet équilibre perdu, transformant un système immunitaire « hors de contrôle » en une machine à nouveau capable de faire une distinction claire. C'est précisément dans cet équilibre retrouvé que réside la clé d'une rémission durable et, peut-être, d'une future guérison.

Altérations métaboliques : hyperinsulinémie et insulinorésistance dans la polyarthrite rhumatoïde

Le lien entre la polyarthrite rhumatoïde et le métabolisme hormonal est apparu clairement lorsque plusieurs études ont documenté la présence précoce et généralisée d'altérations de la voie de signalisation de l'insuline chez les patients atteints de PR. Il est essentiel de souligner que la première étape n'est pas l'insulinorésistance en soi, mais l'hyperinsulinémie : le foie, en réponse à des fluctuations glycémiques mal gérées par la production d'insuline de première phase, réduit sa clairance, provoquant ainsi une hyperinsulinémie, comme nous l'avons vu au chapitre 2. Cette condition précède l'insulinorésistance et en constitue le facteur déclenchant : c'est donc l'hyperinsulinémie chronique qui prépare le terrain à la résistance à l'insuline, et non l'inverse, comme nous l'avons déjà vu dans les chapitres précédents.

Ainsi, cet état d'insulinorésistance, caractérisé par une capacité réduite des tissus périphériques, en particulier les muscles et le tissu adipeux, à répondre à l'action de l'insuline, représente une véritable anomalie métabolique. Chez les patients atteints de polyarthrite rhumatoïde, la résistance à l'insuline a été observée même en l'absence de facteurs de risque classiques tels que l'obésité ou le diabète, ce qui suggère qu'elle n'est pas une simple conséquence du mode de vie, mais une partie intégrante de la physiopathologie de la maladie.

Une étude de 2017 a montré que plus de la moitié des patients atteints de polyarthrite rhumatoïde précoce présentaient déjà des valeurs altérées de l'indice HOMA-IR, un marqueur de la résistance à l'insuline, contre un quart chez les sujets sains. Cette altération était associée à une réduction de la masse maigre appendiculaire, c'est-à-dire de la composante musculaire des membres, et à une activité de la maladie plus intense (Müller et al., 2017) [8]. De même, une autre étude menée en Chine en 2022 a documenté une corrélation directe entre l'insulinorésistance et des marqueurs inflammatoires tels que la CRP et la VS, confirmant que plus la maladie est active, plus l'altération métabolique est importante (Ye et al., 2022) [9].

Il ne s'agit pas d'un phénomène passager : en 2019, d'autres chercheurs ont observé que l'équilibre hyperbolique entre la sensibilité à l'insuline et la sécrétion des cellules β pancréatiques est compromis chez les patients atteints de PR. Dans des conditions normales, lorsque la sensibilité à l'insuline diminue, le pancréas réagit en augmentant la sécrétion pour compenser ; chez les patients atteints de polyarthrite rhumatoïde, cette réponse semble inefficace et instable, signe d'un dysfonctionnement systémique (Tejera-Segura et al., 2019) [10]. Même chez les patients non traités par glucocorticoïdes, connus pour leurs effets diabétogènes, l'IR a été confirmée, démontrant que ce n'est pas le traitement qui la provoque, mais la maladie elle-même qui la détermine (Hoes et al., 2011) [11].

Tout cela nous amène à un concept clé : la polyarthrite rhumatoïde n'est pas seulement une maladie du système immunitaire, mais aussi une maladie métabolique et hormonale, enracinée dans une altération du métabolisme de l'insuline et aggravée par l'insulinorésistance.

mTOR comme nœud central

Au sein de cet entrelacement entre immunité et métabolisme, le véritable protagoniste silencieux et puissant qui émerge dans le contexte de la polyarthrite rhumatoïde est mTOR, notre kinase cellulaire, protéine centrale stimulée par la voie de l'insuline, qui agit comme une unité de contrôle métabolique et immunologique. Dans des conditions normales, comme nous le savons, mTOR régule la croissance et la survie des cellules en répondant aux signaux énergétiques, hormonaux et inflammatoires. Cependant, lorsque l'organisme est chroniquement exposé à une inflammation et à des stimuli métaboliques altérés, comme c'est le cas dans la polyarthrite rhumatoïde, cette voie est hyperactivée, contribuant directement au dysfonctionnement immunitaire (Perl, 2016) [12]. C'est donc dans la voie de l'insuline que se déclenche la cause principale, et c'est là qu'apparaît clairement que l'implication de mTOR dans la progression de la PR est tout sauf marginale ; son action est celle d'une tour de contrôle qui orchestre la différenciation des lymphocytes T, favorisant l'expansion des lymphocytes effecteurs Th1, Th2 et Th17 (cellules actives du système immunitaire) responsables de la production de cytokines inflammatoires, tout en entravant simultanément le développement des lymphocytes T régulateurs (Treg), fondamentaux pour maintenir la tolérance immunologique. Ce déséquilibre entre Teff et Treg est l'un des nœuds centraux de la réponse auto-immune dans la PR (Zhang et al., 2023) [13].

En pratique, c'est comme si mTOR fonctionnait comme un amplificateur des réactions immunitaires, transformant chaque signal métabolique en une impulsion pro-inflammatoire. Lorsque cette voie est hyperactive, même un petit stimulus peut déclencher une réaction disproportionnée, alimentant la synovite chronique (inflammation persistante de la membrane synoviale, le tissu fin qui tapisse les articulations), l'activation des macrophages (rôle essentiel dans la défense contre les infections, la cicatrisation des plaies et le maintien de l'homéostasie tissulaire), la destruction osseuse et la production d'auto-anticorps (anticorps produits par le système immunitaire qui, au lieu d'attaquer les virus ou les bactéries, reconnaissent et agressent par erreur des composants de son propre organisme). Il n'est donc pas surprenant que mTOR soit aujourd'hui considéré comme la cible thérapeutique émergente dans la polyarthrite rhumatoïde (Perl, 2016) [12] ; (Zhang et al., 2023) [13].

Mais la clé n'est pas seulement d'inhiber la prolifération des lymphocytes T, il s'agit plutôt de reprogrammer l'équilibre immunologique : plusieurs études ont en effet démontré que l'inhibition sélective de mTOR, par exemple via le sirolimus (rapamycine, médicament inhibiteur de mTOR), réduit non seulement l'activité des cellules effectrices, mais favorise l'expansion des lymphocytes T régulateurs, rétablissant un rapport plus sain entre Th17 et Treg. Ce rééquilibrage a montré une amélioration de la probabilité de rémission et une réduction des poussées cliniques, même chez les patients déjà traités avec des médicaments conventionnels (Niu et al., 2020) [14].

Il est intéressant de noter que, même in vitro, la rapamycine permet d'étendre efficacement les cellules Treg tout en maintenant intacte leur capacité suppressive, offrant ainsi une base biologique concrète pour une utilisation possible dans des thérapies cellulaires personnalisées pour la PR (Battaglia et al., 2012) [15]. Cette donnée est renforcée par des preuves expérimentales selon lesquelles, en l'absence de mTOR, les lymphocytes T naïfs (cellules précurseurs vierges) ont tendance à se différencier spontanément en Treg plutôt qu'en cellules effectrices inflammatoires, démontrant le rôle déterminant que joue mTOR dans le choix du « type de soldat » que le système immunitaire doit recruter (Delgoffe et al., 2009) [16].

Outre la régulation immunitaire, la voie mTOR participe également à la progression tissulaire de la maladie, favorisant la prolifération synoviale (augmentation anormale du nombre de cellules qui tapissent la membrane synoviale, c'est-à-dire le tissu qui recouvre les articulations) et l'angiogenèse (processus biologique par lequel de nouveaux vaisseaux sanguins se forment à partir de ceux déjà existants). En ce sens, il a été observé que le blocage de la voie PI3K/AKT/mTOR est capable de réduire l'inflammation articulaire, la formation de nouveaux vaisseaux et les dommages structurels, même dans des modèles animaux. C'est comme si l'on parvenait à couper le carburant du moteur inflammatoire local, ramenant l'environnement articulaire à une condition plus silencieuse et contrôlée (Ba et al., 2021) [17].

À la lumière de ces preuves, mTOR n'est pas seulement un figurant mais l'acteur principal de l'inflammation dans la polyarthrite rhumatoïde : c'est un nœud central, un transducteur qui traduit les signaux métaboliques, immunitaires et environnementaux en actions cellulaires concrètes. L'inhiber avec précision ne signifie pas supprimer le système immunitaire, mais le rééduquer à distinguer le danger de la normalité. C'est précisément là que se situe la frontière la plus avancée de la médecine immunométabolique : intervenir non seulement sur les symptômes, mais sur la logique interne de la voie de l'insuline qui les génère.

Inhibiteurs de mTOR

Ces dernières années, l'intérêt pour la cible thérapeutique mTOR a fait un bond en avant, y compris sur le plan pratique, dépassant les limites de la théorie moléculaire pour entrer dans les premiers scénarios cliniques. La rapamycine, également connue sous le nom de sirolimus, est le chef de file de cette nouvelle classe de médicaments immunométaboliques : un inhibiteur sélectif de mTORC1 capable de réduire la prolifération des cellules T effectrices, de soutenir l'expansion des Treg et, par conséquent, de rééquilibrer l'ensemble du microenvironnement immunitaire.

Une confirmation clinique plus récente de l'effet de la rapamycine dans la polyarthrite rhumatoïde a été obtenue en 2019 lors d'une étude randomisée menée sur des patients atteints de la maladie active. L'ajout de sirolimus, dénomination pharmacologique de la rapamycine, à faible dose à la thérapie conventionnelle pendant 24 semaines a été associé à une réduction significative de l'activité de la maladie, documentée par la diminution du DAS28 (score indiquant le niveau d'activité de la polyarthrite rhumatoïde), de la VS (examen pouvant indiquer la présence d'un état inflammatoire dans l'organisme) et du nombre d'articulations douloureuses et gonflées. Parallèlement, chez les patients traités par sirolimus, une augmentation des cellules T régulatrices a été observée par rapport à la thérapie conventionnelle seule : ces résultats fournissent donc une preuve clinique selon laquelle l'inhibition pharmacologique de mTOR peut contribuer à la modulation de la réponse immunitaire dans la polyarthrite rhumatoïde, en favorisant le rétablissement des Treg et en s'accompagnant d'une amélioration des principaux indicateurs d'activité de la maladie (Wen et al., 2019) [18].

Une confirmation clinique supplémentaire a été fournie en 2020 chez des patients atteints de polyarthrite rhumatoïde caractérisés par une faible activité de la maladie ou une rémission selon le DAS28. L'étude a porté sur 55 patients précédemment traités par des médicaments antirhumatismaux conventionnels, dont 35 ont reçu du sirolimus et 20 ont poursuivi la thérapie conventionnelle. Avant le traitement, les patients présentaient des quantités et des proportions de cellules T régulatrices CD4+CD25+FOXP3+ significativement inférieures à celles des témoins sains. Après l'administration de sirolimus, une augmentation des Treg circulantes a été observée, accompagnée d'une réduction significative du rapport Th17/Treg, indiquant un rééquilibrage entre les populations lymphocytaires pro-inflammatoires et régulatrices. De plus, après 12 semaines, une proportion plus importante de patients traités par sirolimus avait atteint la rémission selon le DAS28 : ces résultats renforcent donc l'hypothèse selon laquelle l'inhibition pharmacologique de mTOR par la rapamycine peut favoriser l'expansion des cellules Treg FOXP3+ et contribuer au rétablissement de l'équilibre immunologique dans la polyarthrite rhumatoïde (Niu et al., 2020) [14].

Au-delà de l'administration systémique, les nouvelles technologies de libération ciblée changent le paradigme. Grâce aux nanoparticules, aux hydrogels intelligents et aux nanomoteurs catalytiques, il est aujourd'hui possible de concentrer la rapamycine directement sur le site inflammatoire, augmentant ainsi son efficacité et réduisant ses effets secondaires. Les résultats sont impressionnants : des nano-hydrogels qui libèrent de manière prolongée des peptides auto-antigéniques (antigènes provenant de l'organisme lui-même et qui, dans des conditions normales, ne devraient pas activer le système immunitaire) et de la rapamycine, induisant une tolérance immunitaire active (Cao et al., 2025) [19], aux nanomoteurs intelligents chargés de rapamycine, capables de se diriger de manière autonome vers les macrophages inflammatoires M1 et de favoriser leur reconversion en phénotype anti-inflammatoire M2, contrant de manière synergique l'inflammation, le stress oxydatif et la destruction cartilagineuse (Ma et al., 2025) [20].

Dans des modèles animaux, ces stratégies ont démontré leur capacité à réduire l'inflammation articulaire, à protéger le cartilage et à favoriser la régénération des tissus endommagés. Un résultat obtenu non seulement en supprimant la réponse inflammatoire, mais en rééduquant le système immunitaire à reconnaître comme « non ennemi » son propre tissu articulaire, à travers une action qui n'est plus purement suppressive, mais flexible.

La formulation en nanoparticules stratégiquement conçues a également montré des résultats prometteurs : en plus d'améliorer la biodisponibilité de la rapamycine, ces plateformes permettent une libération contrôlée et une réduction de la toxicité systémique, optimisant l'effet sur le système immunitaire. Il a été démontré, par exemple, que la rapamycine ainsi véhiculée réduit l'activation des cellules dendritiques (cellules du système immunitaire spécialisées dans la « capture » d'antigènes et leur présentation aux lymphocytes T), abaisse les niveaux de cytokines comme l'IL-6, le TNF et l'IL-1β (trois puissantes cytokines pro-inflammatoires, produites surtout par les macrophages, qui coordonnent et amplifient la réponse immunitaire) et améliore les paramètres cliniques de la PR dans les modèles animaux (Shao et al., 2017) [21].

En parallèle, d'autres molécules interférant avec le métabolisme immunitaire émergent également. L'Iguratimod (médicament), par exemple, réduit la fonction des cellules T folliculaires helper (Tfh) par la suppression de l'axe mTOR–HIF1α, limitant la glycolyse nécessaire à leur activation. Le résultat est une diminution de la réponse anticorps et une réduction de l'auto-immunité (Bai et al., 2022) [22].

Ces nouvelles frontières marquent un changement de paradigme : il ne s'agit plus seulement d'éteindre l'inflammation, mais de réorganiser la réponse immunitaire à la racine, en agissant sur le métabolisme cellulaire par la remodulation de la voie de l'insuline. La stratégie passe de l'attaque contre l'ennemi à l'éducation du système de défense, dans le but de rétablir cet équilibre dynamique que nous appelons tolérance immunitaire.

mTOR, HIF-1α et reprogrammation métabolique des cellules du système immunitaire

Dans la polyarthrite rhumatoïde, l’activation persistante de mTOR revêt une importance particulière car elle peut soutenir l’expression de HIF-1α, transformant ainsi le métabolisme des cellules impliquées dans la réponse immunitaire. Comme nous l’avons vu précédemment, HIF-1α favorise en effet le passage vers un métabolisme principalement glycolytique, fournissant aux cellules activées un programme métabolique compatible avec une réponse inflammatoire intense. Les preuves les plus récentes indiquent que, dans la polyarthrite rhumatoïde, cette relation peut concerner différentes populations cellulaires, des macrophages aux lymphocytes Th17, jusqu’aux cellules myéloïdes présentes dans le microenvironnement synovial.

Une première démonstration particulièrement significative a été obtenue en étudiant l’effet de la berbérine (substance naturelle présente dans certaines plantes) dans un modèle murin (utilisation de souris en laboratoire pour étudier une maladie ou un mécanisme biologique) d’arthrite induite par le collagène. Les auteurs ont montré que l’activation de l’AMPK (capteur énergétique de la cellule) détermine l’inhibition de mTORC1 et la réduction conséquente de HIF-1α, limitant la glycolyse des macrophages M1 et favorisant le rééquilibrage de la polarisation M1/M2. L’utilisation de la leucine (acide aminé essentiel qui contribue à la synthèse protéique et à la régulation de mTOR) a également permis d’interférer expérimentalement avec ces effets, confirmant le rôle fonctionnel de l’axe AMPK–mTORC1–HIF-1α dans la reprogrammation métabolique des macrophages pendant l’arthrite (Cheng et al., 2023) [23].

Un deuxième apport important est venu de l’étude des fibroblastes synoviaux (cellules qui tapissent les articulations), des cellules qui, dans la polyarthrite rhumatoïde, acquièrent des caractéristiques métaboliques et fonctionnelles fortement altérées. En 2025, il a été montré que la voie PI3K–AKT–mTOR contribue à l’activation de HIF-1α et à l’induction conséquente de la glycolyse (processus par lequel la cellule utilise le glucose pour produire de l’énergie). La modulation expérimentale de cette cascade au moyen de « Er Miao San » (formule traditionnelle de la médecine chinoise) entraînait une réduction de HIF-1α et d’importants composants du métabolisme glycolytique, dont GLUT1 (transporteur qui permet l’entrée du glucose dans les cellules), s’accompagnant d’une diminution de l’activation, de la migration et de l’invasivité des fibroblastes synoviaux (Zhang et al., 2025) [24].

La pertinence fonctionnelle de HIF-1α émerge également directement chez les macrophages humains exposés au microenvironnement de la polyarthrite rhumatoïde : en 2025, des macrophages dérivés de monocytes humains traités avec du sérum de patients atteints de polyarthrite rhumatoïde ont montré une augmentation de la glycolyse, de l’expression de HIF-1α et de la production de la cytokine pro-inflammatoire IL-1β. L’inhibition de la glycolyse réduisait HIF-1α, tandis que l’inhibition de HIF-1α diminuait la production d’IL-1β. Un circuit glycolyse–HIF-1α–IL-1β capable d’auto-entretenir l’activation inflammatoire des macrophages se dessinait ainsi (Jia et al., 2025) [25].

Une preuve encore plus directe du lien entre mTOR et HIF-1α a été obtenue en 2026 en étudiant les lymphocytes Th17, population centrale dans la pathogenèse de la polyarthrite rhumatoïde. L’accumulation de lactate augmentait l’activité de mTORC1, documentée par la phosphorylation de S6K et 4EBP1 (deux cibles importantes de mTORC1), et augmentait simultanément HIF-1α, favorisant la différenciation Th17. À l’inverse, l’inhibition de LDHA (enzyme qui transforme le pyruvate en lactate) ou du transporteur MCT1 (transporteur qui facilite le passage du lactate à travers la membrane cellulaire) réduisait l’activation de l’axe mTORC1–HIF-1α et la différenciation Th17 (Zhang et al., 2026) [26].

Enfin, une confirmation supplémentaire est arrivée en 2026 à travers l’étude des cellules suppressives d’origine myéloïde (MDSC, cellules qui suppriment la réponse du système immunitaire) provenant de patients atteints de polyarthrite rhumatoïde. Les fibroblastes synoviaux de la PR augmentaient l’expression du récepteur TREM1 (récepteur des cellules immunitaires qui contribue à amplifier l’inflammation) dans les MDSC par le biais du contact cellulaire, déclenchant une séquence moléculaire bien définie : TREM1 → PI3K → AKT → mTOR → HIF-1α. Cette cascade augmentait le flux glycolytique et favorisait l’acquisition de caractéristiques pro-inflammatoires. Le blocage pharmacologique de la voie atténuait en revanche la reprogrammation métabolique et contribuait au rétablissement de la fonction immunorégulatrice des MDSC (Deng et al., 2026) [27].

Dans leur ensemble, ces preuves permettent donc de définir un modèle cohérent. Dans la polyarthrite rhumatoïde, mTOR ne représente pas seulement un régulateur de la croissance cellulaire, mais peut agir en amont de HIF-1α et contribuer à la reprogrammation métabolique des cellules impliquées dans la maladie. Lorsque mTORC1 reste actif, HIF-1α favorise le maintien d’un métabolisme glycolytique compatible avec l’activité des cellules pro-inflammatoires, touchant les macrophages, les lymphocytes Th17 et d’autres populations myéloïdes (familles de cellules du sang, dont beaucoup sont impliquées dans la défense immunitaire). À l’inverse, l’inhibition de mTORC1 est associée à la réduction de HIF-1α et de la glycolyse, avec pour conséquence l’atténuation de divers programmes inflammatoires. Une séquence particulièrement significative dans la pathogenèse de la polyarthrite rhumatoïde se crée ainsi : activation de mTOR → augmentation de HIF-1α → augmentation de la glycolyse → soutien du phénotype immunitaire pro-inflammatoire.

La vitamine D comme modulateur immuno-métabolique

Comme nous l'avons vu dans les chapitres précédents, la vitamine D, sous sa forme active, joue un rôle de coordination fondamental, guidant l'activité du système immunitaire tel un véritable chef d'orchestre. La vitamine D acquiert des fonctions spécifiques qui vont bien au-delà du métabolisme osseux : elle agit en effet comme un modulateur immunitaire, régulant l'activité à la fois de l'immunité innée (première ligne de défense de l'organisme, présente dès la naissance) et de l'immunité adaptative (système de défense acquis par l'organisme après l'exposition à un agent étranger). De nombreuses études ont démontré que les patients atteints de PR présentent en moyenne des taux sériques de vitamine D significativement plus bas que les témoins sains, avec une corrélation inverse entre la concentration de vitamine D et l'activité de la maladie : plus les taux sont bas, plus le tableau clinique est grave (Sukharani et al., 2021) [28] ; (Lee et Bae, 2016) [29] ; (Lin et al., 2016) [30].

La carence en vitamine D n'est pas un phénomène sporadique, mais une condition extrêmement fréquente : en Inde, par exemple, une méta-analyse a estimé une prévalence de 56 % chez les patients atteints de PR, avec 20 % supplémentaires en état d'insuffisance. Ici aussi, les taux sériques montraient une corrélation négative avec l'activité de la maladie, suggérant que la vitamine D puisse représenter un régulateur clé de l'inflammation articulaire (Bose et al., 2023) [31]. De même, d'autres enquêtes transversales ont confirmé que les patients ayant davantage d'articulations touchées ou des formes cliniques plus sévères présentent des concentrations de vitamine D plus faibles (Tv et al., 2023) [32].

D'un point de vue mécanistique, la vitamine D semble exercer un effet protecteur en rééduquant l'équilibre immunitaire : il a été démontré que sa forme active, la 1,25-dihydroxyvitamine D3, inhibe la différenciation des cellules Th17 et favorise l'expansion des cellules T régulatrices (Treg), agissant également par la suppression du signal de l'IL-6 (protéine-signal produite par des cellules du système immunitaire pour amplifier la réponse immunitaire). Dans des modèles animaux, cela se traduit par une réduction de l'incidence et de la gravité de l'arthrite, avec une protection des articulations contre la destruction osseuse (Zhou et al., 2019) [33]. En termes simples, la vitamine D aide à freiner l'action des cellules qui « poussent » l'inflammation, tout en renforçant celles qui la « contiennent ».

Ces données trouvent également un écho dans la pratique clinique : dans une étude randomisée menée sur 150 patients atteints de PR, il a été démontré que la supplémentation en vitamine D à raison de 60 000 UI/mois conduit à une amélioration significative des scores DAS28 et des taux sériques de vitamine D après 12 semaines de traitement (Chandrashekara et Patted, 2017) [34]. Un autre travail a mis en évidence que la supplémentation en vitamine D, associée à la thérapie standard par DMARD (médicament antirhumatismal), améliore non seulement l'activité clinique mais augmente également le nombre de cellules Treg circulantes, suggérant un réel effet immunomodulateur capable de rééquilibrer la réponse immunitaire (El-Banna et Gado, 2020) [35].

Enfin, il ne faut pas oublier que la vitamine D exerce également un impact sur la santé musculaire : dans les maladies rhumatismales inflammatoires, y compris la polyarthrite rhumatoïde, la carence en vitamine D est associée à une réduction de la force, à de la fatigue et à une sarcopénie (condition caractérisée par une perte progressive de masse musculaire), aggravant indirectement la qualité de vie des patients. Cela signifie que corriger la carence n'a pas seulement un effet sur l'inflammation, mais aussi sur la fonctionnalité musculaire, avec des bénéfices plus larges sur la gestion globale de la maladie (Hysa et al., 2024) [36].

Dans leur ensemble, ces preuves nous indiquent que la vitamine D représente un modulateur critique dans le contexte de la polyarthrite rhumatoïde, car elle contribue à contenir l'activation excessive des voies pro-inflammatoires ; en effet, comme nous l'avons vu dans le chapitre 6 consacré au système immunitaire, à travers la modulation de mTOR, elle réduit la production de médiateurs inflammatoires, limite la prolifération anormale des lymphocytes T effecteurs et stimule la production de lymphocytes T régulateurs, des processus centraux dans la pathogenèse de la maladie. Cet effet régulateur favorise un meilleur contrôle de la réponse immunitaire, prévenant l'agression auto-immune contre les tissus articulaires.

De plus, la capacité de la vitamine D à soutenir l'équilibre énergétique cellulaire et à réduire le stress oxydatif contribue à préserver l'intégrité des articulations, ralentissant les processus dégénératifs typiques de la polyarthrite rhumatoïde. Chez les patients carencés, au contraire, l'hyperactivité de mTOR est associée à une plus grande sévérité clinique, à une augmentation de la raideur et de la douleur articulaire, et à une progression plus rapide de la maladie.

Dans ce cadre, la vitamine D se configure comme un élément essentiel non seulement pour le métabolisme osseux, mais aussi comme un allié immunométabolique, capable d'améliorer la qualité de vie des patients atteints de polyarthrite rhumatoïde grâce à la limitation de l'inflammation et à la protection de la fonctionnalité articulaire.

Conclusions

Dans l'ensemble, les recherches analysées décrivent la polyarthrite rhumatoïde comme une pathologie dans laquelle les altérations immunitaires et métaboliques sont profondément interconnectées. La maladie touche environ 0,5 à 1 % des adultes dans les pays développés, affecte principalement les femmes et présente un impact clinique et social important. À l'interprétation traditionnelle exclusivement auto-immune s'ajoute donc une perspective immunométabolique, dans laquelle l'activation des cellules immunitaires s'accompagne d'une modification profonde de leur métabolisme.

Le premier élément caractéristique est le déséquilibre des populations lymphocytaires : chez les patients atteints de polyarthrite rhumatoïde, les cellules pro-inflammatoires Th17 sont augmentées, tandis que les Treg, fondamentales pour maintenir la tolérance immunitaire, sont réduites ou fonctionnellement compromises. Parallèlement, l'altération du rapport Tfh/Tfr peut favoriser l'activation des lymphocytes B et la production d'auto-anticorps. L'amélioration clinique observée lorsque les populations régulatrices sont rétablies, comme cela a été constaté dans plusieurs recherches utilisant des médicaments spécifiques, renforce l'importance de cet équilibre.

À ce tableau immunologique s'associent des altérations du métabolisme insulinique : les études rapportées documentent une insulinorésistance fréquente chez les patients atteints de polyarthrite rhumatoïde, décelable dès les phases précoces de la maladie et même chez des sujets non exposés aux glucocorticoïdes. À la lumière du modèle physiopathologique développé dans les chapitres précédents, cette donnée prend une signification encore plus large : l'hyperinsulinémie chronique, qui peut également provenir d'une réduction de la clairance de l'insuline, ne doit pas être considérée exclusivement comme une réponse compensatoire à l'insulinorésistance, mais peut la précéder et contribuer directement à son apparition, par la désensibilisation progressive des tissus à l'action de l'insuline. Dans cette perspective, la présence documentée d'insulinorésistance dans la polyarthrite rhumatoïde rend plausible le fait que, chez une partie des patients au moins, une condition préalable ou concomitante d'hyperinsulinémie puisse être présente, capable de s'insérer dans l'enchevêtrement métabolique et inflammatoire complexe caractéristique de la maladie.

Le point de convergence entre métabolisme altéré et condition physiopathologique est donc identifié dans mTOR : son activation soutient la différenciation des cellules T effectrices, y compris les Th17, tout en entravant simultanément l'équilibre régulateur des Treg. mTOR participe également à la prolifération synoviale, à l'angiogenèse et au maintien du microenvironnement inflammatoire articulaire. De manière cohérente, l'inhibition de cette voie par la rapamycine/sirolimus a montré des résultats expérimentaux et cliniques : réduction de l'activité de la maladie, augmentation des Treg et diminution du rapport Th17/Treg.

Une étape supplémentaire concerne l'axe mTOR–HIF-1α. Les preuves montrent que l'activation persistante de mTOR peut soutenir HIF-1α et favoriser la glycolyse dans les cellules impliquées dans la polyarthrite rhumatoïde. Ce mécanisme a été observé dans les macrophages, les fibroblastes synoviaux, les lymphocytes Th17 et les cellules myéloïdes. La séquence hyperinsulinémie → mTOR → HIF-1α → glycolyse → phénotype pro-inflammatoire se dessine ainsi, tandis que l'inhibition de la voie réduit la reprogrammation glycolytique et atténue différents programmes inflammatoires.

Enfin, la vitamine D émerge comme un modulateur immunométabolique possible. Chez les patients atteints de polyarthrite rhumatoïde, des niveaux plus bas sont fréquemment associés à une activité accrue de la maladie. Sa forme active peut contrer la différenciation Th17 et favoriser les Treg ; certaines études cliniques sur la supplémentation ont également documenté des améliorations de l'activité de la maladie et une augmentation des cellules régulatrices.

Le parcours global suggère donc une interaction étroite entre altération métabolique, signalisation insulinique, mTOR, HIF-1α, reprogrammation glycolytique et perte de l'équilibre immunitaire. La polyarthrite rhumatoïde apparaît ainsi comme une pathologie dans laquelle métabolisme et auto-immunité peuvent s'alimenter mutuellement, faisant de l'immunométabolisme une clé d'interprétation pertinente pour en comprendre les mécanismes et identifier de nouvelles cibles thérapeutiques.

Références

[1] The Th17/Treg imbalance and cytokine environment in peripheral blood of patients with rheumatoid arthritis

Wang et al., 2012

Rheumatol Int. 2012 Apr;32(4):887-93.

[2] Mechanisms of impaired regulation by CD4+CD25+FOXP3+ regulatory T cells in human autoimmune diseases

Buckner, 2011

Nature Rev Immunol. 2011 Jul 1.2010 Dec; 10(12): 849–859.

[3] Augmenting regulatory T cells: new therapeutic strategy for rheumatoid arthritis

Zhang et al., 2024

Front Immunol. 2024 Jan 23:15:1312919. eCollection 2024.

[4] Regulatory T cells in patients with early untreated rheumatoid arthritis: Phenotypic changes in the course of methotrexate treatment

Avdeeva et al., 2020

Biochimie. 2020 Jul:174:9-17.

[5] Increased Circulating Follicular Treg Cells Are Associated With Lower Levels of Autoantibodies in Patients With Rheumatoid Arthritis in Stable Remission

Liu et al., 2018

Arthritis Rheumatol. 2018 May; 70(5):711-721.

[6] Imbalance of circulating Tfr/Tfh ratio in patients with rheumatoid arthritis

Wang et al., 2019

Clin Exp Med. 2019 Feb;19(1):55-64.

[7] An imbalance between blood CD4+CXCR5+Foxp3+ Tfr cells and CD4+CXCR5+Tfh cells may contribute to the immunopathogenesis of rheumatoid arthritis

Cao et al., 2020

Mol Immunol. 2020 Sep:125:1-8.

[8] Insulin Resistance in Early Rheumatoid Arthritis Is Associated with Low Appendicular Lean Mass

Müller et al., 2017

Biomed Res Int. 2017 Aug 28;2017:9584720.

[9] Insulin resistance and adverse lipid profile in untreated very early rheumatoid arthritis patients: A single-center, cross-sectional study in China

Ye et al., 2022

Arch Rheumatol. 2022 Jun 6;37(4):593-602.

[10] Relationship Between Insulin Sensitivity and β-Cell Secretion in Nondiabetic Subjects with Rheumatoid Arthritis

Tejera-Segura et al., 2019

J Rheumatol. 2019 Mar;46(3):229-236.

[11] Glucose tolerance, insulin sensitivity and β-cell function in patients with rheumatoid arthritis treated with or without low-to-medium dose glucocorticoids

Hoes et al., 2011

Ann Rheum Dis. 2011 Nov;70(11):1887-94.

[12] Activation of mTOR (mechanistic target of rapamycin) in rheumatic diseases

Perl, 2016

Nat Rev Rheumatol. 2016 Mar;12(3):169-82.

[13] Mechanistic target of rapamycin (mTOR): a potential new therapeutic target for rheumatoid arthritis

Zhang et al., 2023

Arthritis Res Ther. 2023 Oct 2;25(1):187.

[14] Sirolimus selectively increases circulating Treg cell numbers and restores the Th17/Treg balance in rheumatoid arthritis patients with low disease activity or in DAS28 remission who previously received conventional disease-modifying anti-rheumatic drugs

Niu et al., 2020

Clin Exp Rheumatol. 2020 Jan-Feb;38(1):58-66. Epub 2019 Apr 29.

[15] Expanding human T regulatory cells with the mTOR-inhibitor rapamycin

Battaglia et al., 2012

Methods Mol Biol. 2012:821:279-93.

[16] The mTOR kinase differentially regulates effector and regulatory T cell lineage commitment

Delgoffe et al., 2009

Immunity. 2009 Jun 19;30(6):832-44.

[17] WTD Attenuating Rheumatoid Arthritis via Suppressing Angiogenesis and Modulating the PI3K/AKT/mTOR/HIF-1α Pathway

Ba et al., 2021

Front Pharmacol. 2021 Sep 27:12:696802.

[18] Low-Dose Sirolimus Immunoregulation Therapy in Patients with Active Rheumatoid Arthritis: A 24-Week Follow-Up of the Randomized, Open-Label, Parallel-Controlled Trial

Wen et al. Journal of Immunology Research, 2019

vol. 2019, 2019, article 7684352.

[19] Sustained codelivery of heat shock protein peptide and rapamycin via nano-in-hydrogel induces immune tolerance in rheumatoid arthritis

Cao et al., 2025

J Control Release. 2025 Jul 10:383:113842.

[20] Mesoporous Silica-Based Nanomotors Loaded with Rapamycin for Synergistic Treatment of Rheumatoid Arthritis

Ma et al., 2025

ACS Nano. 2025 Jul 1;19(25):22914-22930.

[21] Modulation of the immune response in rheumatoid arthritis with strategically released rapamycin

Shao et al., 2017

Mol Med Rep. 2017 Oct;16(4):5257-5262.

[22] Iguratimod Restrains Circulating Follicular Helper T Cell Function by Inhibiting Glucose Metabolism via Hif1α-HK2 Axis in Rheumatoid Arthritis

Bai et al., 2022

Front Immunol. 2022 Jun 1:13:757616.

[23] Berberine Ameliorates Collagen-Induced Arthritis in Mice by Restoring Macrophage Polarization via AMPK/mTORC1 Pathway Switching Glycolytic Reprogramming.

Cheng et al. International Immunopharmacology, 2023

vol. 124, part B, 2023, article 111024.

[24] Ermiao San Attenuating Rheumatoid Arthritis via PI3K/AKT/mTOR Signaling Activate HIF-1α Induced Glycolysis.

Zhang et al. Journal of Ethnopharmacology, 2025

vol. 345, 2025, article 119615.

[25] The Glycolysis-HIF-1α Axis Induces IL-1β of Macrophages in Rheumatoid Arthritis.

Jia et al. Arthritis Research & Therapy, 2025

vol. 27, 2025, article 180.

[26] Triptolide Alleviates Rheumatoid Arthritis by Inhibiting Lactate-Mediated Activation of mTORC1/HIF-1α to Restrain Th17 Cell Differentiation.

Zhang et al. International Immunopharmacology, 2026

vol. 180, 2026, article 116676.

[27] Rheumatoid Arthritis Synovial Fibroblasts Promote the Glycolysis of Myeloid-Derived Suppressor Cells via TREM1/mTOR Axis.

Deng et al. International Immunopharmacology, 2026

vol. 184, 2026, article 116961.

[28] Association Between Rheumatoid Arthritis and Serum Vitamin D Levels

Sukharani et al., 2021

Cureus. 2021 Sep 24;13(9):e18255.

[29] Vitamin D level in rheumatoid arthritis and its correlation with the disease activity: a meta-analysis

Lee e Bae, 2016

Clin Exp Rheumatol. 2016 Sep-Oct;34(5):827-833. Epub 2016 Apr 6.

[30] Serum Vitamin D Level and Rheumatoid Arthritis Disease Activity: Review and Meta-Analysis

Lin et al., 2016

PLoS One. 2016 Jan 11;11(1):e0146351.

[31] Vitamin D deficiency in rheumatoid arthritis patients of India - a single-arm meta-analysis

Bose et al., 2023

Afr Health Sci. 2023 Mar;23(1):795-806.

[32] Correlation of Rheumatoid arthritis disease severity with serum vitamin D levels

Tv et al., 2023

Clin Nutr ESPEN. 2023 Oct:57:697-702.

[33] 1,25-Dihydroxyvitamin D3 Ameliorates Collagen-Induced Arthritis via Suppression of Th17 Cells Through miR-124 Mediated Inhibition of IL-6 Signaling

Zhou et al., 2019

Front Immunol. 2019 Feb 7:10:178.

[34] Role of vitamin D supplementation in improving disease activity in rheumatoid arthritis: An exploratory study

Chandrashekara e Patted, 2017

Int J Rheum Dis. 2017 Jul;20(7):825-831.

[35] Vitamin D: does it help Tregs in active rheumatoid arthritis patients

El-Banna e Gado, 2020

Expert Rev Clin Immunol. 2020 Aug;16(8):847-853.

[36] Vitamin D and Muscle Status in Inflammatory and Autoimmune Rheumatic Diseases: An Update

Hysa et al., 2024

Nutrients. 2024 Jul 19;16(14):2329.