
Scientific Book

Artritis reumatoide y metabolismo de la respuesta articular

La artritis reumatoide es una enfermedad autoinmune caracterizada por la inflamación crónica de las articulaciones, en la que las células inmunitarias y los mediadores inflamatorios contribuyen al daño articular. Las investigaciones sobre el inmunometabolismo destacan la implicación de las vías PI3K/AKT/mTOR, la glucólisis y el equilibrio entre linfocitos Th17 y Treg. En el libro «La scelta di Vivere in Salute o in Malattia» (La elección de vivir en salud o en enfermedad), el Dr. A. Colonnese y R. Panzironi profundizan en estos procesos para comprender las conexiones biológicas entre metabolismo, inflamación y autoinmunidad.

Citar este artículo
Colonnese, A. & Panzironi, R. (2026). Artritis reumatoide y metabolismo de la respuesta articular. La elección de vivir en salud o en enfermedad. https://lifesciencehub.info/es/la-scelta-di-vivere-in-salute-o-in-malattia/artritis-reumatoide-y-metabolismo-de-la-respuesta-articular
La elección de vivir en salud o en enfermedad · ISBN 979-12-82692-05-2

DOI lsh.es.libro.7

  • Publicación 05/11/2026
  • Actualización 05/11/2026
  • ARTRITIS REUMATOIDE
  • INMUNOMETABOLISMO
  • LINFOCITOS TH17/TREG
  • INSULINORRESISTENCIA
  • MTOR/HIF-1Α
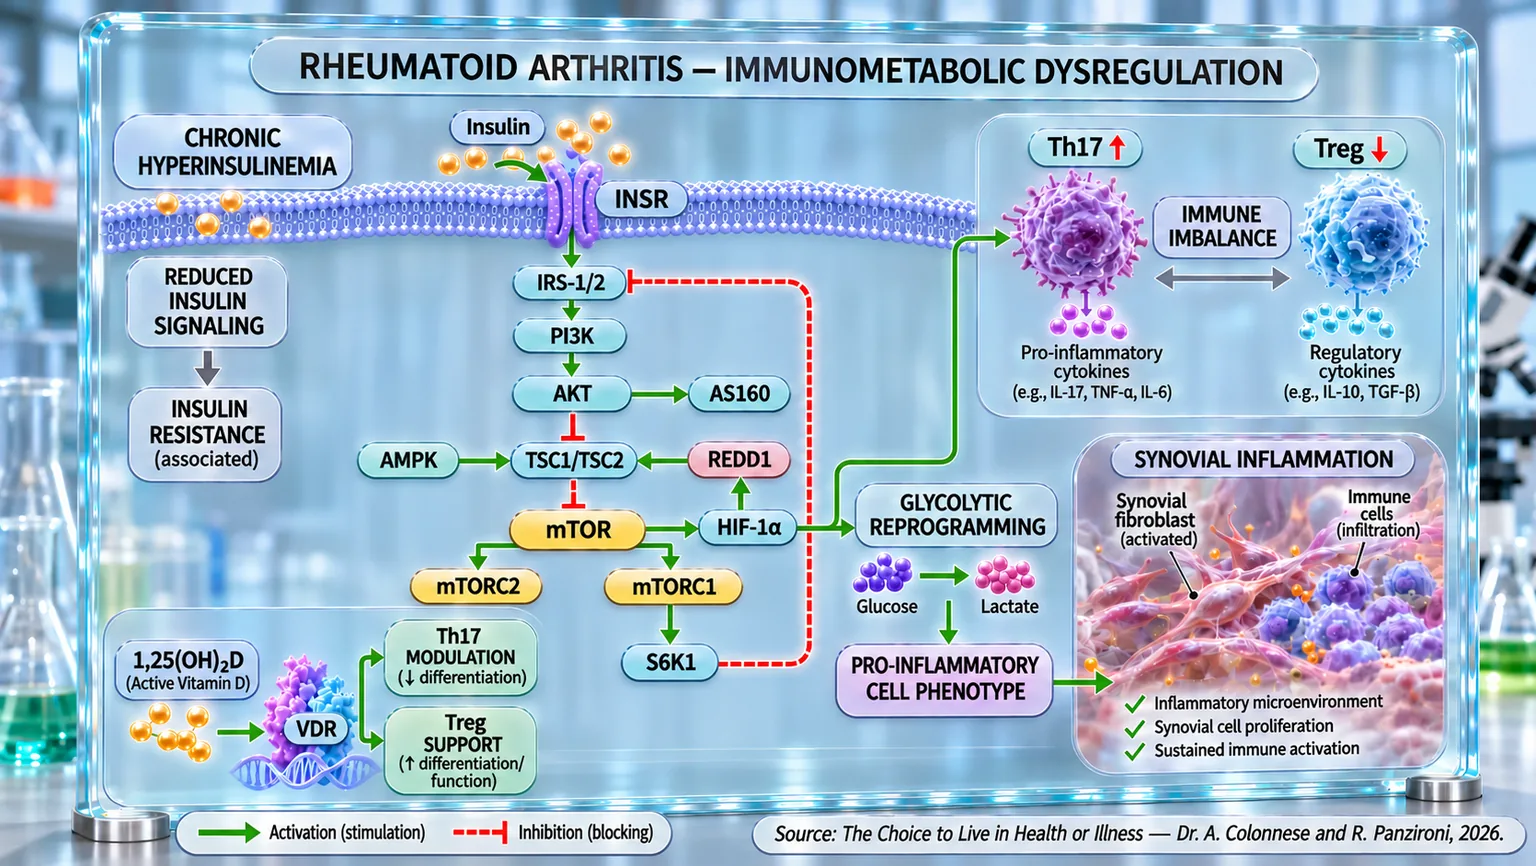
Infografía de flujo con receptor de insulina, nodos metabólicos, células Th17 y Treg y tejido sinovial infiltrado por células inmunitarias.
El esquema vincula la hiperinsulinemia crónica y la señalización insulínica reducida con las vías INSR–IRS-1/2–PI3K–AKT–mTOR y HIF-1α, la reprogramación glucolítica y el desequilibrio Th17/Treg; asimismo, indica la modulación mediante vitamina D/VDR, delineando los circuitos inmunometabólicos asociados al fenotipo proinflamatorio y a la inflamación sinovial en la artritis reumatoide.

ABSTRACT

La artritis reumatoide es una patología autoinmune caracterizada por inflamación articular y alteraciones metabólicas que interactúan con la regulación inmunitaria. En el libro "La scelta di Vivere in Salute o in Malattia", el Dr. A. Colonnese y R. Panzironi examinan estas conexiones a través de la perspectiva del inmunometabolismo, considerando los mecanismos celulares y las posibles implicaciones terapéuticas futuras.

Un elemento central del cuadro inmunopatológico se refiere al desequilibrio entre los linfocitos Th17, asociados a la respuesta proinflamatoria, y las células Treg, responsables de la tolerancia inmunitaria. Asimismo, las alteraciones de la relación Tfh/Tfr pueden favorecer la activación de los linfocitos B y la producción de autoanticuerpos, contribuyendo a la pérdida de la tolerancia inmunitaria. Paralelamente, en los pacientes se observa frecuentemente una resistencia a la insulina, a veces ya en las fases iniciales e independientemente de la exposición a los glucocorticoides. La posible contribución de una hiperinsulinemia previa, incluso asociada a una reducción del aclaramiento de insulina, sigue siendo una hipótesis interpretativa que debe verificarse específicamente en la enfermedad.

La vía mTOR representa un posible punto de convergencia: sostiene la diferenciación de las células efectoras, incluidos los linfocitos Th17, y participa en la proliferación sinovial y la angiogénesis. A través de HIF-1α puede, además, favorecer la reprogramación glucolítica de macrófagos, fibroblastos sinoviales y otras poblaciones inmunitarias, contribuyendo al mantenimiento de programas inflamatorios en el microambiente articular. La inhibición de mTOR mediante rapamicina o sirolimus ha mostrado, en las investigaciones descritas, modificaciones favorables de las poblaciones reguladoras y reducciones de la actividad de la enfermedad, aunque requiere una evaluación diferenciada de los resultados experimentales y clínicos y de su aplicabilidad terapéutica.

Un ámbito adicional se refiere a la vitamina D: concentraciones inferiores se asocian frecuentemente a una mayor actividad de la enfermedad, mientras que el calcitriol puede modular la diferenciación Th17/Treg. Algunos estudios sobre la suplementación reportan mejoras clínicas, sin demostrar un beneficio universal o una relación causal directa.

En conjunto, el metabolismo insulínico, la señalización mTOR/HIF-1α y la diferenciación inmunitaria delinean procesos potencialmente interdependientes. Su comprensión respalda el estudio de dianas terapéuticas, evitando atribuir a la hiperinsulinemia un papel causal ya demostrado en la artritis reumatoide.

Epidemiología de la artritis reumatoide

La artritis reumatoide (AR) es una enfermedad inflamatoria crónica que afecta principalmente a las articulaciones, pero que no se limita exclusivamente a ellas. Su prevalencia en la población mundial no es despreciable: se estima que la padece entre el 0,5 y el 1 % de los adultos en los países desarrollados, un porcentaje que se traduce en más de 18 millones de personas a nivel global. Este dato, aparentemente contenido, esconde sin embargo un impacto clínico y social extremadamente relevante, sobre todo en términos de calidad de vida y costes sanitarios.

Desde el punto de vista demográfico, la enfermedad afecta de forma marcada al sexo femenino: siete de cada diez pacientes son mujeres, con una proporción mujer/hombre que varía entre 2:1 y 4:1 según las cohortes analizadas. Este desequilibrio sugiere un posible papel de las hormonas sexuales femeninas o de factores genéticos e inmunológicos ligados al género.

En cuanto a la edad de inicio, la artritis reumatoide se manifiesta con mayor frecuencia entre los 40 y los 60 años, con un diagnóstico que a menudo llega alrededor de los 50-55 años. Sin embargo, el peso clínico de la enfermedad tiende a aumentar con la edad, hasta el punto de que el pico de prevalencia (índice epidemiológico que indica cuántas personas en una población tienen una determinada enfermedad o afección en un momento o periodo concreto) se observa típicamente en los grupos de mayor edad de la población, entre los 65 y los 80 años. Esta tendencia refleja tanto el efecto acumulativo de la enfermedad a lo largo del tiempo como una mayor vulnerabilidad de los sujetos de edad avanzada.

Tradicionalmente, la artritis reumatoide se ha descrito y tratado como una enfermedad exclusivamente inmunológica, en la que el sistema inmunitario «se vuelve loco» y ataca a sus propios tejidos. Esta definición, aunque correcta en parte, hoy parece limitada. Los hallazgos científicos más recientes han demostrado que la enfermedad no es simplemente el fruto de una respuesta inmunitaria desregulada, sino también el resultado de una serie de alteraciones metabólicas que alimentan y amplifican el proceso autoinmune. Por tanto, no se trata solo de un error del sistema inmunitario, sino de un diálogo patológico entre metabolismo e inmunidad, que transforma la AR en una afección a la vez autoinmune y metabólico-hormonal.

En este escenario complejo, los linfocitos T emergen como protagonistas centrales en la patogenia de la artritis reumatoide. Se trata de células clave de la respuesta inmunitaria adaptativa, normalmente encargadas del reconocimiento y la eliminación de agentes extraños. Sin embargo, en el contexto de la AR, algunos subtipos de linfocitos T, en particular los linfocitos T helper CD4+, experimentan una activación anómala, incluso en ausencia de un peligro real. Estas células terminan reconociendo como «enemigos» a sus propios tejidos, desencadenando una cascada inflamatoria crónica que afecta a la sinovia (líquido mucoso contenido en las articulaciones), las articulaciones y, en muchos casos, también a otros distritos sistémicos.

Pero el aspecto más interesante se refiere a la profunda interconexión entre la activación inmunitaria y el metabolismo hormonal. Los linfocitos T, para desempeñar su función, requieren una remodelación metabólica activa: en el momento de la activación, estas células pasan de un estado clásico de metabolismo oxidativo (utilización de azúcares, grasas y proteínas según las necesidades del organismo) a un estado de glucólisis aeróbica (utilización exclusiva de azúcares, proceso dependiente de la glucosa): este proceso se conoce, sobre todo en el ámbito oncológico, como «efecto Warburg» (del nombre de Otto Heinrich Warburg, quien recibió el Premio Nobel de Medicina en 1931 por ser el primero en observar que las células tumorales, incluso en presencia de oxígeno suficiente, tendían a producir energía recurriendo principalmente a la glucólisis y no al metabolismo oxidativo). Este cambio metabólico es fundamental para apoyar la rápida proliferación y la síntesis de citocinas inflamatorias (moléculas de comunicación que favorecen y coordinan la inflamación).

En el caso de la artritis reumatoide, este perfil metabólico hiperactivo se consolida y se vuelve crónico, contribuyendo a mantener la inflamación y a perpetuar la autoinmunidad. No se trata solo de una respuesta funcional temporal, sino de una verdadera «reeducación metabólica» del linfocito T, que asume un comportamiento proinflamatorio estable y autorreactivo. Este estado patológico se ve amplificado además por factores ambientales como la alimentación, el estrés y el estilo de vida en general.

Desequilibrios de los linfocitos T

Uno de los pilares inmunológicos que emergen con fuerza en la artritis reumatoide es el desequilibrio de los linfocitos T, las células que actúan como directores de orquesta del sistema inmunitario. En particular, la delicada relación entre las células efectoras proinflamatorias y las células reguladoras aparece profundamente alterada. En los pacientes con artritis reumatoide activa, las células Th17 (Teff), conocidas por su producción de citocinas inflamatorias como la IL-17, resultan aumentadas, mientras que las células T reguladoras (Treg), encargadas de frenar las respuestas autoinmunes y mantener la tolerancia, aparecen reducidas tanto en número como en funcionalidad. Este desequilibrio, a menudo cuantificado como la relación Th17/Treg, resulta fuertemente descompensado a favor de las primeras y está directamente relacionado con la gravedad clínica y los marcadores serológicos de la enfermedad (Wang et al., 2012) [1]. Es como si el acelerador de la autoinmunidad estuviera pisado al máximo, mientras que el freno regulador resultara debilitado.

Las anomalías de las Treg no se limitan a su escasez, sino que también afectan a un defecto intrínseco de función. Los estudios han mostrado que las Treg en los pacientes con AR no son capaces de suprimir eficazmente la inflamación articular, contribuyendo a la persistencia de la respuesta autoinmune. Defectos similares, observados en otras enfermedades autoinmunes como la esclerosis múltiple, confirman que la disfunción reguladora es un hilo conductor común de muchas patologías inmunitarias (Buckner, 2010) [2]. Por el contrario, la expansión o el restablecimiento de las Treg parece correlacionarse con mejoras clínicas, hasta el punto de ser considerada hoy una de las estrategias terapéuticas más prometedoras (Zhang et al., 2024) [3].

El papel de las Treg se manifiesta ya en las fases precoces de la enfermedad: los pacientes con artritis reumatoide no tratada muestran, de hecho, una reducción significativa de estas células en comparación con los controles sanos. Es interesante notar que el tratamiento con metotrexato, uno de los fármacos de primera línea, no solo reduce la actividad clínica de la enfermedad, sino que aumenta el número y la funcionalidad de las Treg, lo que sugiere que parte de su beneficio terapéutico deriva precisamente de esta modulación inmunorreguladora (Avdeeva et al., 2020) [4]. En otras palabras, además de "apagar" la inflamación, el metotrexato parece también "reeducar" al sistema inmunitario para que recupere un equilibrio entre las T eff y las T reg.

Un discurso similar se aplica a las células T reguladoras foliculares (Tfr), un subgrupo especializado de Treg que actúa dentro de los centros germinales (áreas especializadas dentro de los folículos linfáticos), regulando la actividad de las T foliculares helper (Tfh, una forma de T efectoras). Estas últimas son conocidas por estimular a los linfocitos B (células inmunitarias que contribuyen a la defensa del organismo produciendo anticuerpos) y favorecer la producción de autoanticuerpos, una característica clave de la AR. En los pacientes en remisión estable se observa un aumento de las Tfr y una reducción de la relación Tfh/Tfr, asociada a niveles más bajos de autoanticuerpos como el factor reumatoide (autoanticuerpo frecuentemente asociado a la artritis reumatoide) y los anti-CCP (autoanticuerpos utilizados sobre todo para ayudar a diagnosticar la artritis reumatoide). Esto sugiere que el reequilibrio entre Tfr y Tfh representa un marcador de remisión y un potencial objetivo terapéutico (Liu et al., 2018) [5]; (Wang et al., 2019) [6]; (Cao et al., 2020) [7].

En definitiva, el panorama que emerge es el de un sistema inmunitario que ha perdido la armonía entre sus componentes. Las células efectoras, como las Th17 y las Tfh, toman el control, alimentando una inflamación crónica que provoca daño articular y autoanticuerpos, mientras que las células reguladoras, Treg y Tfr, resultan debilitadas o disfuncionales, incapaces de restablecer la tolerancia. Las terapias tradicionales como el metotrexato, y aquellas más innovadoras basadas en la inhibición de mTOR o en la expansión de las Treg, tienen en común el objetivo de restablecer este equilibrio perdido, transformando un sistema inmunitario "fuera de control" en una máquina nuevamente capaz de hacer una distinción clara. Es precisamente en este equilibrio reencontrado donde reside la clave para una remisión duradera y, tal vez, para una futura curación.

Alteraciones metabólicas: hiperinsulinemia e insulinorresistencia en la artritis reumatoide

El vínculo entre la artritis reumatoide y el metabolismo hormonal quedó claramente demostrado cuando diversos estudios documentaron la presencia temprana y generalizada de alteraciones en la vía de la insulina en pacientes con AR. Es fundamental subrayar que el primer paso no es la resistencia a la insulina en sí, sino la hiperinsulinemia: el hígado, en respuesta a oscilaciones glucémicas no gestionadas correctamente por la producción de insulina de primera fase, reduce su aclaramiento, lo que provoca hiperinsulinemia, como hemos visto en el capítulo 2. Esta condición precede a la resistencia a la insulina y representa su causa desencadenante: por lo tanto, es la hiperinsulinemia crónica la que prepara el terreno para la resistencia a la insulina, y no al revés, como ya hemos visto en los capítulos anteriores.

Por tanto, esta condición de resistencia a la insulina, caracterizada por una menor capacidad de los tejidos periféricos, en particular los músculos y el tejido adiposo, para responder a la acción de la insulina, representa una verdadera anomalía metabólica. En los pacientes con artritis reumatoide, la resistencia a la insulina se ha observado incluso en ausencia de factores de riesgo clásicos como la obesidad o la diabetes, lo que sugiere que no es una simple consecuencia del estilo de vida, sino una parte integrante de la fisiopatología de la enfermedad.

Un estudio de 2017 mostró que más de la mitad de los pacientes con artritis reumatoide precoz ya presentaban valores alterados del índice HOMA-IR, un marcador de resistencia a la insulina, en comparación con una cuarta parte de los sujetos sanos. Esta alteración estaba asociada a una reducción de la masa magra apendicular, es decir, del componente muscular de las extremidades, y a una actividad de la enfermedad más intensa (Müller et al., 2017) [8]. Del mismo modo, otro estudio de 2022 realizado en China documentó una correlación directa entre la resistencia a la insulina y marcadores inflamatorios como la PCR y la VSG, confirmando que cuanto más activa es la enfermedad, mayor es la alteración metabólica (Ye et al., 2022) [9].

No se trata de un fenómeno pasajero: en 2019, otros investigadores observaron que el equilibrio hiperbólico entre la sensibilidad a la insulina y la secreción de las células β pancreáticas está comprometido en los pacientes con AR. En condiciones normales, cuando la sensibilidad a la insulina disminuye, el páncreas responde aumentando la secreción para compensar; en los pacientes con artritis reumatoide, esta respuesta parece ineficiente e inestable, signo de una disfunción sistémica (Tejera-Segura et al., 2019) [10]. Incluso en pacientes no tratados con glucocorticoides, conocidos por sus efectos diabetogénicos, se confirmó la RI, lo que demuestra que no es la terapia la que la causa, sino que es la propia enfermedad la que la determina (Hoes et al., 2011) [11].

Todo esto nos lleva a un concepto clave: la artritis reumatoide no es solo una enfermedad del sistema inmunitario, sino también una enfermedad metabólica hormonal, arraigada en una alteración del metabolismo de la insulina y agravada por la resistencia a la insulina.

mTOR como nodo central

Dentro de este entrelazado entre inmunidad y metabolismo, el verdadero protagonista silencioso y potente que emerge en el contexto de la artritis reumatoide es mTOR, nuestra quinasa celular, proteína central estimulada por el pathway de la insulina, que actúa como centralita metabólica e inmunológica. En condiciones normales, como sabemos, mTOR regula el crecimiento y la supervivencia de las células, respondiendo a las señales energéticas, hormonales e inflamatorias. Sin embargo, cuando el organismo está crónicamente expuesto a inflamación y estímulos metabólicos alterados, como ocurre en la artritis reumatoide, esta vía se hiperactiva, contribuyendo de forma directa a la disfunción inmunitaria (Perl, 2016) [12]. Es en el pathway de la insulina, por tanto, donde se desencadena la causa principal, y donde se evidencia que la implicación de mTOR en la progresión de la AR es todo menos marginal; su acción es la de una cabina de mando que orquesta la diferenciación de las células T, favoreciendo la expansión de los linfocitos efectores Th1, Th2 y Th17 (células activas del sistema inmunitario) responsables de la producción de citocinas inflamatorias, mientras que al mismo tiempo obstaculiza el desarrollo de las células T reguladoras (Treg), fundamentales para mantener la tolerancia inmunológica. Este desequilibrio entre Teff y Treg es uno de los nodos centrales de la respuesta autoinmune en la AR (Zhang et al., 2023) [13].

En la práctica, es como si mTOR funcionara como un amplificador de las reacciones inmunitarias, transformando cada señal metabólica en un impulso proinflamatorio. Cuando esta vía está hiperactiva, incluso un pequeño estímulo puede desencadenar una reacción desproporcionada, alimentando la sinovitis crónica (inflamación persistente de la membrana sinovial, el fino tejido que recubre las articulaciones), la activación de los macrófagos (células con un papel esencial en la defensa contra infecciones, en la curación de heridas y en el mantenimiento de la homeostasis tisular), la destrucción ósea y la producción de autoanticuerpos (anticuerpos producidos por el sistema inmunitario que, en lugar de atacar virus o bacterias, reconocen y agreden erróneamente componentes del propio organismo). No sorprende, por tanto, que mTOR sea hoy considerado el objetivo terapéutico emergente en la artritis reumatoide (Perl, 2016) [12]; (Zhang et al., 2023) [13].

Pero la clave no es solo inhibir la proliferación de los linfocitos T, sino reprogramar el equilibrio inmunológico: diversos estudios han demostrado, de hecho, que la inhibición selectiva de mTOR, por ejemplo mediante sirolimus (rapamicina, fármaco inhibidor de mTOR), no solo reduce la actividad de las células efectoras, sino que favorece la expansión de las células T reguladoras, restableciendo una relación más sana entre Th17 y Treg. Este reequilibrio ha demostrado mejorar la probabilidad de remisión y reducir las reagudizaciones clínicas, incluso en pacientes ya tratados con fármacos convencionales (Niu et al., 2020) [14].

Es interesante notar que, incluso in vitro, la rapamicina permite expandir eficazmente las células Treg manteniendo intacta su capacidad supresora, ofreciendo así una base biológica concreta para un posible empleo en terapias celulares personalizadas para la AR (Battaglia et al., 2012) [15]. Este dato se ve reforzado por evidencias experimentales según las cuales, en ausencia de mTOR, las células T naive (células precursoras vírgenes) tienden espontáneamente a diferenciarse en Treg en lugar de en células efectoras inflamatorias, lo que demuestra el papel determinante que mTOR juega al decidir "qué tipo de soldado" debe reclutar el sistema inmunitario (Delgoffe et al., 2009) [16].

Además de la regulación inmunitaria, la vía mTOR participa también en la progresión tisular de la enfermedad, favoreciendo la proliferación sinovial (aumento anómalo del número de células que recubren la membrana sinovial, es decir, el tejido que tapiza las articulaciones) y la angiogénesis (proceso biológico a través del cual se forman nuevos vasos sanguíneos a partir de los ya existentes). En este sentido, se ha observado que el bloqueo del pathway PI3K/AKT/mTOR es capaz de reducir la inflamación articular, la formación de nuevos vasos y el daño estructural, incluso en modelos animales. Es como si se lograra quitar gasolina al motor inflamatorio local, devolviendo el entorno articular a una condición más silenciosa y controlada (Ba et al., 2021) [17].

A la luz de estas evidencias, mTOR no es solo un actor secundario, sino el protagonista principal de la inflamación en la artritis reumatoide: es un nodo central, un transductor que traduce las señales metabólicas, inmunitarias y ambientales en acciones celulares concretas. Inhibirlo con precisión no significa suprimir el sistema inmunitario, sino educarlo nuevamente para distinguir entre peligro y normalidad. Esta es precisamente la frontera más avanzada de la medicina inmunometabólica: intervenir no solo en los síntomas, sino en la lógica interna del pathway de la insulina que los genera.

Inhibidores de mTOR

En los últimos años, de hecho, el interés hacia la diana terapéutica mTOR ha dado un salto adelante también en el frente práctico, superando los límites de la teoría molecular para entrar en los primeros escenarios clínicos. La rapamicina, también conocida como sirolimus, es el precursor de esta nueva clase de fármacos inmunometabólicos: un inhibidor selectivo de mTORC1 capaz de reducir la proliferación de las células T efectoras, de favorecer la expansión de las Treg y, en consecuencia, de reequilibrar todo el microambiente inmunitario.

Una confirmación clínica más reciente del efecto de la rapamicina en la artritis reumatoide se obtuvo en 2019 en un estudio aleatorizado realizado en pacientes con enfermedad activa. La adición de sirolimus, denominación farmacológica de la rapamicina, a dosis bajas a la terapia convencional durante 24 semanas se asoció a una reducción significativa de la actividad de la enfermedad, documentada por la disminución del DAS28 (puntuación que indica el grado de actividad de la artritis reumatoide), de la VSG (análisis que puede indicar la presencia de un estado inflamatorio en el organismo) y del número de articulaciones dolorosas e inflamadas. Paralelamente, en los pacientes tratados con sirolimus se observó un aumento de las células T reguladoras en comparación con la terapia convencional sola: estos resultados proporcionan, por tanto, una evidencia clínica de que la inhibición farmacológica de mTOR puede contribuir a la modulación de la respuesta inmunitaria en la artritis reumatoide, favoreciendo la recuperación de las Treg y acompañándose de una mejora de los principales indicadores de actividad de la enfermedad (Wen et al., 2019) [18].

Una confirmación clínica adicional fue proporcionada en 2020 en pacientes con artritis reumatoide caracterizados por baja actividad de la enfermedad o remisión según el DAS28. El estudio incluyó a 55 pacientes tratados previamente con fármacos antirreumáticos convencionales, de los cuales 35 recibieron sirolimus y 20 continuaron con la terapia convencional. Antes del tratamiento, los pacientes presentaban cantidades y proporciones de células T reguladoras CD4+CD25+FOXP3+ significativamente inferiores en comparación con los controles sanos. Tras la administración de sirolimus, se observó un aumento de las Treg circulantes acompañado de una reducción significativa de la relación Th17/Treg, lo que indica un reequilibrio entre las poblaciones linfocitarias proinflamatorias y reguladoras. Además, después de 12 semanas, un porcentaje mayor de los pacientes tratados con sirolimus había alcanzado la remisión según el DAS28: estos resultados refuerzan, por tanto, la hipótesis de que la inhibición farmacológica de mTOR mediante rapamicina puede favorecer la expansión de las células Treg FOXP3+ y contribuir al restablecimiento del equilibrio inmunológico en la artritis reumatoide (Niu et al., 2020) [14].

Más allá de la administración sistémica, las nuevas tecnologías de liberación dirigida están cambiando el paradigma. A través de nanopartículas, hidrogeles inteligentes y nanomotores catalíticos, hoy es posible concentrar la rapamicina directamente en el sitio inflamatorio, aumentando su eficacia y reduciendo sus efectos secundarios. Los resultados son impresionantes: desde los nanohidrogeles que liberan de forma prolongada péptidos autoantigénicos (antígenos que provienen del mismo organismo y que, en condiciones normales, no deberían activar el sistema inmunitario) y rapamicina, induciendo tolerancia inmunitaria activa (Cao et al., 2025) [19], hasta los nanomotores inteligentes cargados con rapamicina, capaces de dirigirse autónomamente hacia los macrófagos inflamatorios M1 y de favorecer su reconversión en el fenotipo antiinflamatorio M2, contrarrestando de forma sinérgica la inflamación, el estrés oxidativo y la destrucción cartilaginosa (Ma et al., 2025) [20].

En modelos animales, estas estrategias han demostrado reducir la inflamación articular, proteger el cartílago y favorecer la regeneración de los tejidos dañados. Un resultado obtenido no solo suprimiendo la respuesta inflamatoria, sino reeducando al sistema inmunitario para que reconozca como “no enemigo” su propio tejido articular, a través de una acción que ya no es puramente supresora, sino flexible.

También la formulación en nanopartículas estratégicamente diseñadas ha demostrado resultados prometedores: además de mejorar la biodisponibilidad de la rapamicina, estas plataformas permiten una liberación controlada y una reducción de la toxicidad sistémica, optimizando el efecto sobre el sistema inmunitario. Se ha demostrado, por ejemplo, que la rapamicina así vehiculizada reduce la activación de las células dendríticas (células del sistema inmunitario especializadas en “capturar” antígenos y presentarlos a los linfocitos T), disminuye los niveles de citoquinas como IL-6, TNF e IL-1β (tres potentes citoquinas proinflamatorias, producidas sobre todo por los macrófagos, que coordinan y amplifican la respuesta inmunitaria) y mejora los parámetros clínicos de la AR en los modelos animales (Shao et al., 2017) [21].

En paralelo, también están emergiendo otras moléculas que interfieren con el metabolismo inmunitario. El Iguratimod (fármaco), por ejemplo, reduce la función de las células T foliculares helper (Tfh) a través de la supresión del eje mTOR–HIF1α, limitando la glucólisis necesaria para su activación. El resultado es una disminución de la respuesta de anticuerpos y una reducción de la autoinmunidad (Bai et al., 2022) [22].

Estas nuevas fronteras marcan un cambio de paradigma: ya no se trata solo de apagar la inflamación, sino de reordenar la respuesta inmunitaria desde la raíz, actuando sobre el metabolismo celular a través de la remodulación de la vía de la insulina. La estrategia se desplaza del ataque al enemigo a la educación del sistema de defensa, en el intento de restablecer ese equilibrio dinámico que llamamos tolerancia inmunitaria.

mTOR, HIF-1α y reprogramación metabólica de las células del sistema inmunitario

En la artritis reumatoide, la activación persistente de mTOR adquiere una importancia particular porque puede sustentar la expresión de HIF-1α, transformando el metabolismo de las células implicadas en la respuesta inmunitaria. Como hemos visto anteriormente, HIF-1α favorece de hecho el paso hacia un metabolismo predominantemente glucolítico, proporcionando a las células activadas un programa metabólico compatible con una respuesta inflamatoria intensa. Las evidencias más recientes indican que, en la artritis reumatoide, esta relación puede afectar a diferentes poblaciones celulares, desde los macrófagos hasta los linfocitos Th17, pasando por las células mieloides presentes en el microambiente sinovial.

Una primera demostración particularmente significativa se obtuvo estudiando el efecto de la berberina (sustancia natural presente en algunas plantas) en un modelo murino (uso de ratones en laboratorio para estudiar una enfermedad o un mecanismo biológico) de artritis inducida por colágeno. Los autores mostraron que la activación de AMPK (sensor energético de la célula) determina la inhibición de mTORC1 y la consiguiente reducción de HIF-1α, limitando la glucólisis de los macrófagos M1 y favoreciendo el reequilibrio de la polarización M1/M2. El uso de leucina (aminoácido esencial que contribuye a la síntesis proteica y a la regulación de mTOR) permitió además interferir experimentalmente con estos efectos, respaldando el papel funcional del eje AMPK–mTORC1–HIF-1α en la reprogramación metabólica de los macrófagos durante la artritis (Cheng et al., 2023) [23].

Un segundo aporte importante provino del estudio de los fibroblastos sinoviales (células que recubren las articulaciones), células que en la artritis reumatoide adquieren características metabólicas y funcionales fuertemente alteradas. En 2025 se mostró que la vía PI3K–AKT–mTOR contribuye a la activación de HIF-1α y a la consiguiente inducción de la glucólisis (proceso mediante el cual la célula utiliza la glucosa para producir energía). La modulación experimental de esta cascada mediante “Er Miao San” (fórmula tradicional de la medicina china) determinaba una reducción de HIF-1α y de componentes importantes del metabolismo glucolítico, entre ellos GLUT1 (transportador que permite la entrada de glucosa en las células), acompañándose de una disminución de la activación, la migración y la invasividad de los fibroblastos sinoviales (Zhang et al., 2025) [24].

La relevancia funcional de HIF-1α emerge también directamente en los macrófagos humanos expuestos al microambiente de la artritis reumatoide: en 2025, macrófagos derivados de monocitos humanos tratados con suero de pacientes con artritis reumatoide mostraron un aumento de la glucólisis, de la expresión de HIF-1α y de la producción de la citocina proinflamatoria IL-1β. La inhibición de la glucólisis reducía HIF-1α, mientras que la inhibición de HIF-1α disminuía la producción de IL-1β. Se perfilaba así un circuito glucólisis–HIF-1α–IL-1β capaz de autoalimentar la activación inflamatoria de los macrófagos (Jia et al., 2025) [25].

Una evidencia aún más directa de la conexión entre mTOR y HIF-1α se obtuvo en 2026 estudiando los linfocitos Th17, población central en la patogenia de la artritis reumatoide. La acumulación de lactato aumentaba la actividad de mTORC1, documentada a través de la fosforilación de S6K y 4EBP1 (dos importantes dianas de mTORC1), y simultáneamente incrementaba HIF-1α, favoreciendo la diferenciación Th17. Por el contrario, la inhibición de LDHA (enzima que transforma el piruvato en lactato) o del transportador MCT1 (transportador que facilita el paso del lactato a través de la membrana celular) reducía la activación del eje mTORC1–HIF-1α y la diferenciación Th17 (Zhang et al., 2026) [26].

Finalmente, una confirmación adicional llegó en 2026 a través del estudio de las células supresoras de origen mieloide (MDSC, células que suprimen la respuesta del sistema inmunitario) provenientes de pacientes con artritis reumatoide. Los fibroblastos sinoviales de la AR aumentaban la expresión del receptor TREM1 (receptor de las células inmunitarias que contribuye a amplificar la inflamación) en las MDSC a través del contacto celular, desencadenando una secuencia molecular bien definida: TREM1 → PI3K → AKT → mTOR → HIF-1α. Esta cascada aumentaba el flujo glucolítico y favorecía la adquisición de características proinflamatorias. El bloqueo farmacológico de la vía atenuaba, en cambio, la reprogramación metabólica y contribuía a la recuperación de la función inmunorreguladora de las MDSC (Deng et al., 2026) [27].

En su conjunto, estas evidencias permiten, por tanto, delinear un modelo coherente. En la artritis reumatoide, mTOR no representa solo un regulador del crecimiento celular, sino que puede actuar aguas arriba de HIF-1α y contribuir a la reprogramación metabólica de las células implicadas en la enfermedad. Cuando mTORC1 permanece activo, HIF-1α favorece el mantenimiento de un metabolismo glucolítico compatible con la actividad de células proinflamatorias, afectando a macrófagos, linfocitos Th17 y otras poblaciones mieloides (familias de células de la sangre, muchas de las cuales están involucradas en la defensa inmunitaria). Por el contrario, la inhibición de mTORC1 se asocia a la reducción de HIF-1α y de la glucólisis, con la consiguiente atenuación de diversos programas inflamatorios. Se crea así una secuencia particularmente significativa en la patogenia de la artritis reumatoide: activación de mTOR → aumento de HIF-1α → aumento de la glucólisis → sustento del fenotipo inmunitario proinflamatorio.

La vitamina D como modulador inmunometabólico

Como hemos visto en los capítulos anteriores, la vitamina D, en su forma activa, desempeña un papel de coordinación fundamental, guiando la actividad del sistema inmunitario como un verdadero director de orquesta. La vitamina D adquiere funciones específicas que van mucho más allá del metabolismo óseo: actúa, de hecho, como un modulador inmunitario, regulando la actividad tanto de la inmunidad innata (primera línea de defensa del organismo, presente desde el nacimiento) como de la adaptativa (sistema de defensa adquirido por el organismo tras la exposición a un agente extraño). Numerosos estudios han demostrado que los pacientes con AR presentan, en promedio, niveles séricos de vitamina D significativamente más bajos en comparación con los controles sanos, con una correlación inversa entre la concentración de vitamina D y la actividad de la enfermedad: cuanto más bajos son los niveles, más grave resulta el cuadro clínico (Sukharani et al., 2021) [28]; (Lee y Bae, 2016) [29]; (Lin et al., 2016) [30].

La carencia de vitamina D no es un fenómeno esporádico, sino una condición extremadamente frecuente: en la India, por ejemplo, un metaanálisis estimó una prevalencia del 56% en pacientes con AR, con un 20% adicional en estado de insuficiencia. También aquí, los niveles séricos mostraban una correlación negativa con la actividad de la enfermedad, lo que sugiere que la vitamina D puede representar un regulador clave de la inflamación articular (Bose et al., 2023) [31]. Del mismo modo, otras investigaciones transversales han confirmado que los pacientes con más articulaciones afectadas o formas clínicas más graves presentan concentraciones de vitamina D más bajas (Tv et al., 2023) [32].

Desde el punto de vista mecanístico, la vitamina D parece ejercer un efecto protector reeducando el equilibrio inmunitario: se ha demostrado que su forma activa, la 1,25-dihidroxivitamina D3, inhibe la diferenciación de las células Th17 y promueve la expansión de las células T reguladoras (Treg), actuando también a través de la supresión de la señal de la IL-6 (proteína señal producida por células del sistema inmunitario para amplificar la respuesta inmunitaria). En modelos animales, esto se traduce en una reducción de la incidencia y la gravedad de la artritis, con protección de las articulaciones frente a la destrucción ósea (Zhou et al., 2019) [33]. En términos sencillos, la vitamina D ayuda a frenar la acción de las células que “impulsan” la inflamación, potenciando en cambio a aquellas que la “contienen”.

Estos datos también encuentran respaldo en la práctica clínica: en un estudio aleatorizado realizado en 150 pacientes con AR, se demostró que la suplementación con vitamina D a razón de 60.000 UI/mes conduce a una mejora significativa de las puntuaciones DAS28 y de los niveles séricos de vitamina D después de 12 semanas de tratamiento (Chandrashekara y Patted, 2017) [34]. Otro trabajo destacó que la suplementación con vitamina D, asociada a la terapia estándar con FAME (fármacos antirreumáticos modificadores de la enfermedad), no solo mejora la actividad clínica, sino que aumenta el número de células Treg circulantes, lo que sugiere un efecto inmunomodulador real capaz de reequilibrar la respuesta inmunitaria (El-Banna y Gado, 2020) [35].

Por último, no hay que olvidar que la vitamina D también ejerce un impacto en la salud muscular: en las enfermedades reumáticas inflamatorias, incluida la artritis reumatoide, la carencia de vitamina D se asocia a una reducción de la fuerza, fatiga y sarcopenia (condición caracterizada por una pérdida progresiva de masa muscular), lo que empeora indirectamente la calidad de vida de los pacientes. Esto significa que corregir la carencia no solo tiene un efecto sobre la inflamación, sino también sobre la funcionalidad muscular, con beneficios más amplios en la gestión global de la enfermedad (Hysa et al., 2024) [36].

En conjunto, estas evidencias nos indican que la vitamina D representa un modulador crítico en el contexto de la artritis reumatoide, ya que contribuye a contener la activación excesiva de las vías proinflamatorias; de hecho, como vimos en el capítulo 6 dedicado al sistema inmunitario, a través de la modulación de mTOR, reduce la producción de mediadores inflamatorios, limita la proliferación anómala de los linfocitos T efectores y estimula la producción de linfocitos T reguladores, procesos centrales en la patogenia de la enfermedad. Este efecto regulador favorece un mejor control de la respuesta inmunitaria, previniendo la agresión autoinmunitaria contra los tejidos articulares.

Además, la capacidad de la vitamina D para mantener el equilibrio energético celular y reducir el estrés oxidativo contribuye a preservar la integridad de las articulaciones, ralentizando los procesos degenerativos típicos de la artritis reumatoide. En los pacientes con carencia, por el contrario, la hiperactividad de mTOR se asocia a una mayor gravedad clínica, a un aumento de la rigidez y del dolor articular y a una progresión más rápida de la enfermedad.

En este marco, la vitamina D se configura como un elemento esencial no solo para el metabolismo óseo, sino también como un aliado inmunometabólico, capaz de mejorar la calidad de vida de los pacientes con artritis reumatoide mediante el control de la inflamación y la protección de la funcionalidad articular.

Conclusiones

En conjunto, las investigaciones analizadas definen la artritis reumatoide como una patología en la que las alteraciones inmunitarias y metabólicas están profundamente interconectadas. La enfermedad afecta aproximadamente al 0,5-1% de los adultos en los países desarrollados, afecta predominantemente a las mujeres y presenta un importante impacto clínico y social. A la interpretación tradicional exclusivamente autoinmunitaria se suma, por tanto, una perspectiva inmunometabólica, en la que la activación de las células inmunitarias va acompañada de una profunda modificación de su metabolismo.

El primer elemento característico es el desequilibrio de las poblaciones linfocitarias: en los pacientes con artritis reumatoide, las células proinflamatorias Th17 están aumentadas, mientras que las Treg, fundamentales para mantener la tolerancia inmunitaria, están reducidas o funcionalmente comprometidas. Paralelamente, la alteración de la relación Tfh/Tfr puede favorecer la activación de los linfocitos B y la producción de autoanticuerpos. La mejoría clínica observada cuando se recuperan las poblaciones reguladoras, como se ha visto en diversas investigaciones con el uso de fármacos específicos, refuerza la importancia de este equilibrio.

A este cuadro inmunológico se asocian alteraciones del metabolismo insulínico: los estudios reportados documentan una frecuente resistencia a la insulina en pacientes con artritis reumatoide, detectable ya en las fases precoces de la enfermedad e incluso en sujetos no expuestos a glucocorticoides. A la luz del modelo fisiopatológico desarrollado en los capítulos anteriores, este dato adquiere un significado aún más amplio: la hiperinsulinemia crónica, que puede originarse también por una reducción del aclaramiento de insulina, no debe considerarse exclusivamente una respuesta compensatoria a la resistencia a la insulina, sino que puede precederla y contribuir directamente a su aparición, a través de la progresiva desensibilización de los tejidos a la acción de la insulina. Desde esta perspectiva, la presencia documentada de resistencia a la insulina en la artritis reumatoide hace plausible que, al menos en una parte de los pacientes, pueda existir también una condición previa o concomitante de hiperinsulinemia, capaz de insertarse en el complejo entramado metabólico e inflamatorio característico de la enfermedad.

El punto de convergencia entre el metabolismo alterado y la condición fisiopatológica se identifica, por tanto, en mTOR: su activación sostiene la diferenciación de las células T efectoras, incluidas las Th17, obstaculizando simultáneamente el equilibrio regulador de las Treg. mTOR participa además en la proliferación sinovial, en la angiogénesis y en el mantenimiento del microambiente inflamatorio articular. Coherentemente, la inhibición de esta vía mediante rapamicina/sirolimus ha mostrado resultados experimentales y clínicos: reducción de la actividad de la enfermedad, aumento de las Treg y disminución de la relación Th17/Treg.

Un paso adicional se refiere al eje mTOR–HIF-1α. Las evidencias muestran que la activación persistente de mTOR puede sostener a HIF-1α y favorecer la glucólisis en las células implicadas en la artritis reumatoide. Este mecanismo se ha observado en macrófagos, fibroblastos sinoviales, linfocitos Th17 y células mieloides. Se delinea, por tanto, la secuencia hiperinsulinemia → mTOR → HIF-1α → glucólisis → fenotipo proinflamatorio, mientras que la inhibición de la vía reduce la reprogramación glucolítica y atenúa diferentes programas inflamatorios.

Finalmente, la vitamina D emerge como un posible modulador inmunometabólico. En los pacientes con artritis reumatoide, niveles más bajos se asocian frecuentemente a una mayor actividad de la enfermedad. Su forma activa puede contrarrestar la diferenciación Th17 y favorecer a las Treg; algunos estudios clínicos sobre la suplementación han documentado, además, mejoras en la actividad de la enfermedad e incremento de las células reguladoras.

El recorrido global sugiere, por tanto, una estrecha interacción entre la alteración metabólica, la señalización insulínica, mTOR, HIF-1α, la reprogramación glucolítica y la pérdida del equilibrio inmunitario. La artritis reumatoide emerge así como una patología en la que el metabolismo y la autoinmunidad pueden alimentarse recíprocamente, convirtiendo al inmunometabolismo en una clave interpretativa relevante para comprender sus mecanismos e identificar nuevas dianas terapéuticas.

Referencias

[1] The Th17/Treg imbalance and cytokine environment in peripheral blood of patients with rheumatoid arthritis

Wang et al., 2012

Rheumatol Int. 2012 Apr;32(4):887-93.

[2] Mechanisms of impaired regulation by CD4+CD25+FOXP3+ regulatory T cells in human autoimmune diseases

Buckner, 2011

Nature Rev Immunol. 2011 Jul 1.2010 Dec; 10(12): 849–859.

[3] Augmenting regulatory T cells: new therapeutic strategy for rheumatoid arthritis

Zhang et al., 2024

Front Immunol. 2024 Jan 23:15:1312919. eCollection 2024.

[4] Regulatory T cells in patients with early untreated rheumatoid arthritis: Phenotypic changes in the course of methotrexate treatment

Avdeeva et al., 2020

Biochimie. 2020 Jul:174:9-17.

[5] Increased Circulating Follicular Treg Cells Are Associated With Lower Levels of Autoantibodies in Patients With Rheumatoid Arthritis in Stable Remission

Liu et al., 2018

Arthritis Rheumatol. 2018 May; 70(5):711-721.

[6] Imbalance of circulating Tfr/Tfh ratio in patients with rheumatoid arthritis

Wang et al., 2019

Clin Exp Med. 2019 Feb;19(1):55-64.

[7] An imbalance between blood CD4+CXCR5+Foxp3+ Tfr cells and CD4+CXCR5+Tfh cells may contribute to the immunopathogenesis of rheumatoid arthritis

Cao et al., 2020

Mol Immunol. 2020 Sep:125:1-8.

[8] Insulin Resistance in Early Rheumatoid Arthritis Is Associated with Low Appendicular Lean Mass

Müller et al., 2017

Biomed Res Int. 2017 Aug 28;2017:9584720.

[9] Insulin resistance and adverse lipid profile in untreated very early rheumatoid arthritis patients: A single-center, cross-sectional study in China

Ye et al., 2022

Arch Rheumatol. 2022 Jun 6;37(4):593-602.

[10] Relationship Between Insulin Sensitivity and β-Cell Secretion in Nondiabetic Subjects with Rheumatoid Arthritis

Tejera-Segura et al., 2019

J Rheumatol. 2019 Mar;46(3):229-236.

[11] Glucose tolerance, insulin sensitivity and β-cell function in patients with rheumatoid arthritis treated with or without low-to-medium dose glucocorticoids

Hoes et al., 2011

Ann Rheum Dis. 2011 Nov;70(11):1887-94.

[12] Activation of mTOR (mechanistic target of rapamycin) in rheumatic diseases

Perl, 2016

Nat Rev Rheumatol. 2016 Mar;12(3):169-82.

[13] Mechanistic target of rapamycin (mTOR): a potential new therapeutic target for rheumatoid arthritis

Zhang et al., 2023

Arthritis Res Ther. 2023 Oct 2;25(1):187.

[14] Sirolimus selectively increases circulating Treg cell numbers and restores the Th17/Treg balance in rheumatoid arthritis patients with low disease activity or in DAS28 remission who previously received conventional disease-modifying anti-rheumatic drugs

Niu et al., 2020

Clin Exp Rheumatol. 2020 Jan-Feb;38(1):58-66. Epub 2019 Apr 29.

[15] Expanding human T regulatory cells with the mTOR-inhibitor rapamycin

Battaglia et al., 2012

Methods Mol Biol. 2012:821:279-93.

[16] The mTOR kinase differentially regulates effector and regulatory T cell lineage commitment

Delgoffe et al., 2009

Immunity. 2009 Jun 19;30(6):832-44.

[17] WTD Attenuating Rheumatoid Arthritis via Suppressing Angiogenesis and Modulating the PI3K/AKT/mTOR/HIF-1α Pathway

Ba et al., 2021

Front Pharmacol. 2021 Sep 27:12:696802.

[18] Low-Dose Sirolimus Immunoregulation Therapy in Patients with Active Rheumatoid Arthritis: A 24-Week Follow-Up of the Randomized, Open-Label, Parallel-Controlled Trial

Wen et al. Journal of Immunology Research, 2019

vol. 2019, 2019, article 7684352.

[19] Sustained codelivery of heat shock protein peptide and rapamycin via nano-in-hydrogel induces immune tolerance in rheumatoid arthritis

Cao et al., 2025

J Control Release. 2025 Jul 10:383:113842.

[20] Mesoporous Silica-Based Nanomotors Loaded with Rapamycin for Synergistic Treatment of Rheumatoid Arthritis

Ma et al., 2025

ACS Nano. 2025 Jul 1;19(25):22914-22930.

[21] Modulation of the immune response in rheumatoid arthritis with strategically released rapamycin

Shao et al., 2017

Mol Med Rep. 2017 Oct;16(4):5257-5262.

[22] Iguratimod Restrains Circulating Follicular Helper T Cell Function by Inhibiting Glucose Metabolism via Hif1α-HK2 Axis in Rheumatoid Arthritis

Bai et al., 2022

Front Immunol. 2022 Jun 1:13:757616.

[23] Berberine Ameliorates Collagen-Induced Arthritis in Mice by Restoring Macrophage Polarization via AMPK/mTORC1 Pathway Switching Glycolytic Reprogramming.

Cheng et al. International Immunopharmacology, 2023

vol. 124, part B, 2023, article 111024.

[24] Ermiao San Attenuating Rheumatoid Arthritis via PI3K/AKT/mTOR Signaling Activate HIF-1α Induced Glycolysis.

Zhang et al. Journal of Ethnopharmacology, 2025

vol. 345, 2025, article 119615.

[25] The Glycolysis-HIF-1α Axis Induces IL-1β of Macrophages in Rheumatoid Arthritis.

Jia et al. Arthritis Research & Therapy, 2025

vol. 27, 2025, article 180.

[26] Triptolide Alleviates Rheumatoid Arthritis by Inhibiting Lactate-Mediated Activation of mTORC1/HIF-1α to Restrain Th17 Cell Differentiation.

Zhang et al. International Immunopharmacology, 2026

vol. 180, 2026, article 116676.

[27] Rheumatoid Arthritis Synovial Fibroblasts Promote the Glycolysis of Myeloid-Derived Suppressor Cells via TREM1/mTOR Axis.

Deng et al. International Immunopharmacology, 2026

vol. 184, 2026, article 116961.

[28] Association Between Rheumatoid Arthritis and Serum Vitamin D Levels

Sukharani et al., 2021

Cureus. 2021 Sep 24;13(9):e18255.

[29] Vitamin D level in rheumatoid arthritis and its correlation with the disease activity: a meta-analysis

Lee e Bae, 2016

Clin Exp Rheumatol. 2016 Sep-Oct;34(5):827-833. Epub 2016 Apr 6.

[30] Serum Vitamin D Level and Rheumatoid Arthritis Disease Activity: Review and Meta-Analysis

Lin et al., 2016

PLoS One. 2016 Jan 11;11(1):e0146351.

[31] Vitamin D deficiency in rheumatoid arthritis patients of India - a single-arm meta-analysis

Bose et al., 2023

Afr Health Sci. 2023 Mar;23(1):795-806.

[32] Correlation of Rheumatoid arthritis disease severity with serum vitamin D levels

Tv et al., 2023

Clin Nutr ESPEN. 2023 Oct:57:697-702.

[33] 1,25-Dihydroxyvitamin D3 Ameliorates Collagen-Induced Arthritis via Suppression of Th17 Cells Through miR-124 Mediated Inhibition of IL-6 Signaling

Zhou et al., 2019

Front Immunol. 2019 Feb 7:10:178.

[34] Role of vitamin D supplementation in improving disease activity in rheumatoid arthritis: An exploratory study

Chandrashekara e Patted, 2017

Int J Rheum Dis. 2017 Jul;20(7):825-831.

[35] Vitamin D: does it help Tregs in active rheumatoid arthritis patients

El-Banna e Gado, 2020

Expert Rev Clin Immunol. 2020 Aug;16(8):847-853.

[36] Vitamin D and Muscle Status in Inflammatory and Autoimmune Rheumatic Diseases: An Update

Hysa et al., 2024

Nutrients. 2024 Jul 19;16(14):2329.