
Scientific Book

Lupus y la complejidad de la tolerancia inmunitaria

El lupus eritematoso sistémico es una enfermedad autoinmunitaria compleja, caracterizada por la producción de autoanticuerpos y por procesos inflamatorios que pueden afectar a diversos órganos. La actividad de los linfocitos B, el equilibrio entre las poblaciones Tfh, Tfr y Treg, y la regulación metabólica a través de mTOR son ámbitos importantes de la investigación inmunológica. En el libro «La scelta di Vivere in Salute o in Malattia» (La elección de vivir con salud o con enfermedad), el Dr. A. Colonnese y R. Panzironi profundizan en estos mecanismos y en las perspectivas que ofrece el estudio del inmunometabolismo.

Citar este artículo
Colonnese, A. & Panzironi, R. (2026). Lupus y la complejidad de la tolerancia inmunitaria. La elección de vivir en salud o en enfermedad. https://lifesciencehub.info/es/la-scelta-di-vivere-in-salute-o-in-malattia/lupus-y-la-complejidad-de-la-tolerancia-inmunitaria
La elección de vivir en salud o en enfermedad · ISBN 979-12-82692-05-2

DOI lsh.es.libro.9

  • Publicación 05/11/2026
  • Actualización 05/11/2026
  • LUPUS ERITEMATOSO
  • INMUNOMETABOLISMO
  • MTOR/HIF-1Α
  • LINFOCITOS TH17/TREG
  • HIPERINSULINEMIA
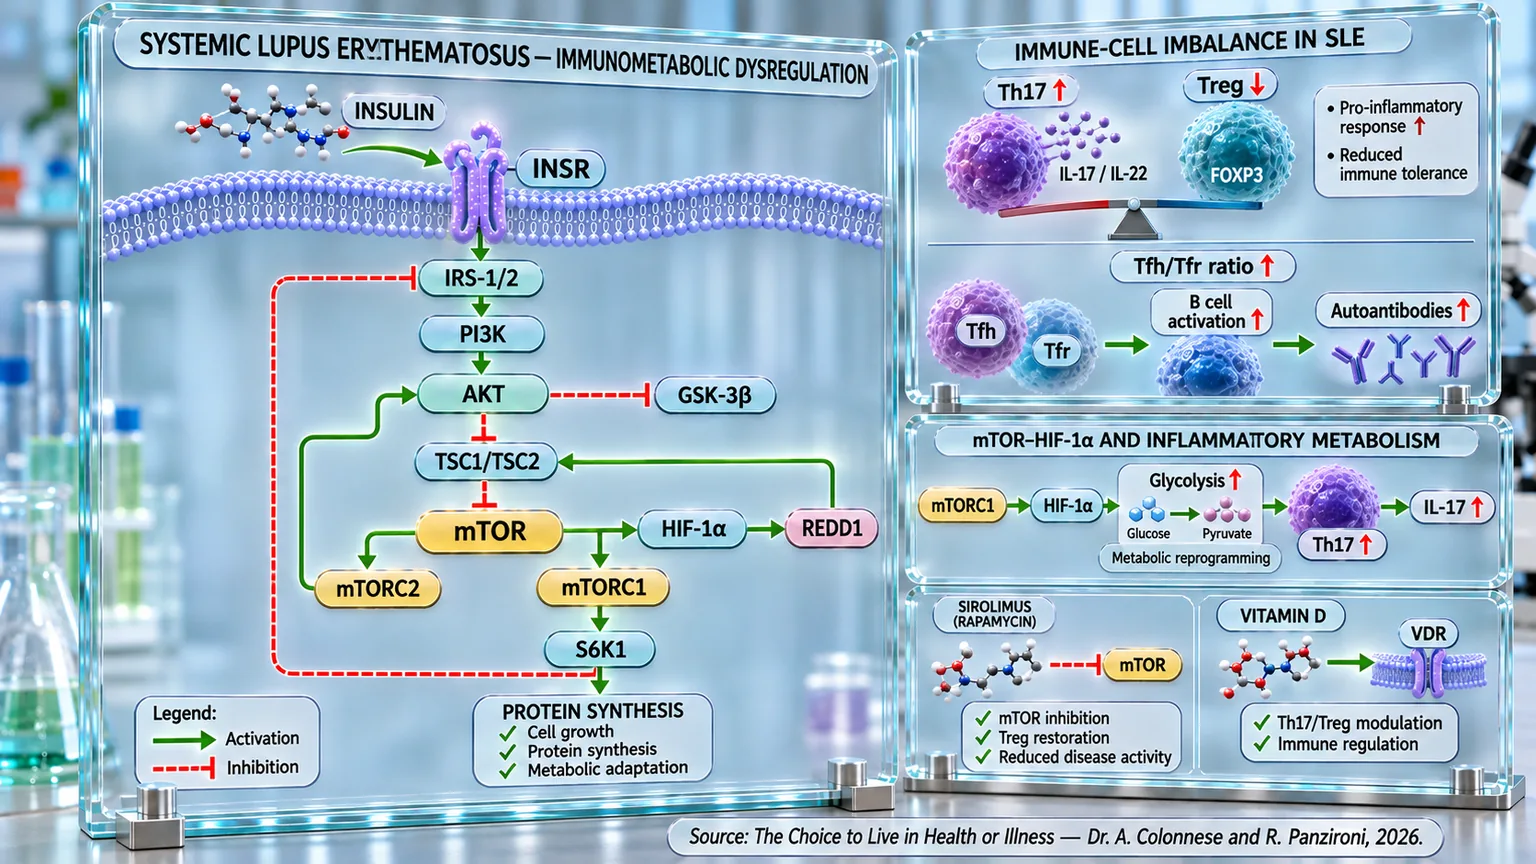
Esquema inmunometabólico con cascada insulínica-mTOR, desequilibrio Th17/Treg y Tfh/Tfr, glucólisis mediada por HIF-1α y producción de autoanticuerpos.
Infografía del lupus eritematoso sistémico: la vía insulínica INSR–IRS-1/2–PI3K–AKT converge en mTOR, mTORC1/2, HIF-1α y síntesis proteica; el aumento de Th17 y de la relación Tfh/Tfr, junto con la reducción de los Treg, acompaña la activación de los linfocitos B, los autoanticuerpos y la pérdida de la tolerancia, mientras que se indican el sirolimus y la vitamina D.

ABSTRACT

El lupus eritematoso sistémico (LES) es una enfermedad autoinmune compleja en la que la disregulación inmunitaria y las alteraciones metabólicas están interconectadas. En el libro "La scelta di Vivere in Salute o in Malattia", el Dr. A. Colonnese y R. Panzironi profundizan en los mecanismos inmunometabólicos implicados en la pérdida de la tolerancia y en la persistencia de la inflamación sistémica.

El desequilibrio entre los linfocitos Tfh y Tfr favorece la activación de los linfocitos B y la producción de autoanticuerpos, mientras que el aumento relativo de las células Th17 respecto a las Treg compromete el control de la respuesta inflamatoria. Las células Th17 producen IL-17 e IL-22; las Treg, asociadas a FOXP3, contribuyen en cambio a la tolerancia inmunitaria. En el plano energético, las poblaciones efectoras utilizan en mayor medida la glucólisis y la glutaminólisis, procesos sostenidos también por la señalización mTOR.

En pacientes con LES se han observado hiperinsulinemia en ayunas y una reducida sensibilidad a la insulina, a veces con glucemia normal, durante la quiescencia clínica y en la edad pediátrica. Estas alteraciones no parecen ser atribuibles exclusivamente a los corticosteroides, sin que estas asociaciones demuestren una causalidad directa. La hiperactivación de mTOR puede favorecer respuestas efectoras, comprometer la regulación inmunitaria y asociarse a una autofagia reducida, disfunción mitocondrial y producción de especies reactivas del oxígeno. A través de HIF-1α, mTORC1 sostiene además la glucólisis y la diferenciación Th17, contribuyendo potencialmente a la amplificación de la inflamación y del daño tisular.

La inhibición de mTOR con sirolimus ha mostrado resultados favorables en modelos experimentales y estudios clínicos, incluyendo cambios en las Treg, en la actividad de la enfermedad y en los autoanticuerpos. Concentraciones inferiores de vitamina D están asociadas a una mayor actividad del LES; algunos estudios de suplementación reportan modificaciones de las poblaciones linfocitarias y de los anticuerpos anti-ADN. En conjunto, estas observaciones indican que el inmunometabolismo es un ámbito relevante para comprender la fisiopatología del LES y profundizar en estrategias terapéuticas dirigidas, distinguiendo mecanismos experimentales, asociaciones clínicas y beneficios efectivamente demostrados. La variabilidad clínica de la enfermedad requiere, sin embargo, particular cautela al extender los resultados obtenidos en poblaciones específicas a todos los pacientes.

Epidemiología del lupus eritematoso

El lupus eritematoso sistémico (LES) es una enfermedad autoinmune crónica de relevancia relativamente rara, pero clínicamente muy significativa, que presenta algunas peculiaridades epidemiológicas que conviene conocer desde el principio. En primer lugar, afecta de forma marcadamente prevalente al sexo femenino: en muchos estudios se señala que aproximadamente el 85 % de los casos diagnosticados corresponden a mujeres. Esta fuerte predilección por el sexo femenino es uno de los rasgos distintivos de la enfermedad.

En cuanto a la edad, el lupus tiende a manifestarse predominantemente en la edad fértil: el inicio más frecuente se produce entre la segunda y la cuarta década de vida. Sin embargo, es importante subrayar que los casos más precoces (en edad pediátrica) o tardíos (incluso más allá de los 50-60 años) no son en absoluto raros.

En términos de prevalencia, las estimaciones son bastante variables según las áreas geográficas, las etnias y los criterios diagnósticos utilizados, pero es posible, no obstante, proporcionar cifras útiles para enmarcar el orden de magnitud: la prevalencia estandarizada (medida de la difusión de una enfermedad) del LES aumentó de aproximadamente 63,5 a 70,6 casos por cada 100.000 habitantes en un estudio de cohortes, mientras que en otro análisis más amplio se destaca que la incidencia en el conjunto de la población se sitúa en torno a 4-5 nuevos casos en aumento por cada 100.000 personas-año, con una proporción mucho más alta en mujeres que en hombres, aproximadamente 7,6 frente a 1,9 por cada 100.000 habitantes.

Este conjunto de datos nos sugiere que, aunque no se trata de una patología «común» en el sentido puramente numérico, el lupus constituye una afección en la que merece la pena centrar la atención por diversos motivos: la elevada predilección por las mujeres, la edad de inicio relativamente joven y la variabilidad de la prevalencia.

Desequilibrio de los linfocitos T

En el lupus eritematoso sistémico, el sistema inmunitario parece perder progresivamente la capacidad de reconocer lo que le pertenece. Es como si las defensas del organismo, normalmente vigilantes pero equilibradas, se desorientaran y comenzaran a atacar sus propios tejidos, desencadenando una inflamación que se extiende a múltiples órganos. Este desequilibrio no surge de la nada: en su base existe un complejo trastorno en las células T (células inmunitarias que ayudan a reconocer y combatir infecciones), verdaderas "centralitas" de control de la inmunidad que normalmente dirigen la respuesta inmunitaria como un director de orquesta. Sin embargo, cuando su coordinación falla, la sinfonía completa del sistema inmunitario se transforma en un ruido caótico y autodestructivo.

Uno de los mecanismos más críticos de este trastorno se refiere al equilibrio entre dos poblaciones fundamentales: las células T helper (efectoras) y las células T reguladoras. En particular, en el lupus, las células T helper foliculares (una clase de células T efectoras), encargadas de ayudar a las células B (linfocitos que contribuyen a la defensa del organismo) en la producción de anticuerpos, resultan hiperactivas, mientras que las células T reguladoras foliculares (Tfr), que normalmente controlan su actividad, están reducidas en número y función. Esto conduce a un aumento de la proporción Tfh/Tfr, fuertemente correlacionado con la actividad de la enfermedad y los niveles de autoanticuerpos como los dirigidos contra el ADN, típicos del LES. Cuando las Tfr disminuyen, la producción de autoanticuerpos crece y, con ella, la inflamación sistémica. Los estudios más recientes han demostrado que los tratamientos eficaces, al restablecer al menos en parte el número de Tfr, son capaces de reducir este desequilibrio, lo que indica que su equilibrio representa un indicador sensible del estado de la enfermedad (Xu et al., 2017) [1].

Junto a este eje Tfh/Tfr, otro equilibrio crucial es el que existe entre las células T helper 17 (Th17) y las células T reguladoras (Treg). Las Th17 pueden considerarse promotoras de la inflamación porque son responsables de la producción de citocinas proinflamatorias como la IL-17 y la IL-22, que amplifican la respuesta inmunitaria. Las Treg, en cambio, actúan como reguladoras de la respuesta inmunitaria, capaces de contener y apagar la inflamación. En el lupus, este equilibrio se altera profundamente: las Th17 prevalecen, mientras que las Treg pierden estabilidad y poder supresor. Tal predominio empuja al organismo a una condición de inflamación crónica que afecta a los riñones, las articulaciones, la piel y el sistema nervioso, creando un círculo vicioso difícil de interrumpir (Shan et al., 2020) [2].

Lo que hace aún más complejo este cuadro es el descubrimiento de que el desequilibrio linfocitario en el lupus no es solo un problema "de comunicación" entre células, sino también de metabolismo: las células T, para funcionar, dependen de vías metabólicas precisas, como un motor que elige el combustible adecuado según las necesidades. Las células Th17 y Tfh, proinflamatorias, prefieren la glucólisis, es decir, la rápida combustión de glucosa, que proporciona energía inmediata pero favorece una actividad intensa y a menudo destructiva. Las células Treg, en cambio, prefieren un metabolismo más "tranquilo", basado en la oxidación de los ácidos grasos, que les permite mantener la calma inmunológica. En el lupus, sin embargo, esta regulación se altera: la glucólisis y la glutaminólisis (proceso metabólico a través del cual el aminoácido glutamina se degrada para producir energía) se vuelven hiperactivas, la vía mTOR se enciende de forma anómala y las células Treg pierden su equilibrio metabólico, incapaces de ejercer el control necesario. El resultado es un sistema inmunitario en estado de "hiperconsumo energético", donde las células inflamatorias se multiplican sin freno (Sharabi y Tsokos, 2020) [3]; (Shan et al., 2020) [2].

Incluso las células T reguladoras clásicas, identificadas por los marcadores CD4+ y CD25+ y por el factor de transcripción FOXP3+, están profundamente involucradas en esta pérdida de tolerancia. Estas células, fundamentales para mantener la paz inmunitaria, actúan mediante diversos mecanismos: liberan moléculas calmantes como la IL-10 y el TGF-β, consumen IL-2 impidiendo que las células inflamatorias crezcan, y modifican el metabolismo de aminoácidos clave como el triptófano para bloquear la proliferación de las células efectoras. Cuando estas Treg se reducen o se vuelven disfuncionales, la autoinmunidad se desborda. En los pacientes con lupus se observa a menudo precisamente esta condición: una disminución numérica y funcional de las Treg, que hace que el sistema inmunitario sea incapaz de distinguir entre células propias y células extrañas (Buckner, 2010) [4].

En resumen, el lupus puede imaginarse como el resultado de una ruptura de los "pesos y contrapesos" que mantienen en equilibrio la respuesta inmunitaria. Las células T helper pisan demasiado el acelerador, mientras que las reguladoras ya no logran frenar. Para complicar todo, el motor metabólico de las células funciona de manera desordenada, alimentando la actividad inflamatoria en lugar de la tolerancia. Entender cómo reequilibrar estas fuerzas, devolviendo a las Tfr y a las Treg al centro de la escena y reduciendo el exceso de energía de las células proinflamatorias, representa hoy una de las fronteras más prometedoras para devolver al sistema inmunitario su armonía natural y, con ella, la posibilidad de contener la enfermedad.

Alteraciones metabólicas: vía de la insulina e insulinorresistencia

En el lupus eritematoso sistémico (LES), la disfunción inmunitaria no se limita al ataque contra los tejidos del organismo: se extiende también al metabolismo, alterando profundamente la forma en que el cuerpo gestiona la energía, los azúcares y las hormonas. Es como si, además del sistema inmunitario, el sistema metabólico también perdiera la capacidad de autorregularse. En los últimos años, diversas investigaciones han puesto de manifiesto que la resistencia a la insulina, una condición en la que las células ya no responden eficazmente a la acción de la insulina, es sorprendentemente frecuente en pacientes con lupus, incluso en ausencia de diabetes manifiesta.

Ya desde los primeros estudios clínicos, se observó que las mujeres afectadas por LES muestran niveles más altos de insulina en ayunas y una menor sensibilidad a la hormona en comparación con los controles sanos, a pesar de mantener una glucemia normal. Esto significa que el páncreas se ve obligado a "esforzarse más", produciendo más insulina para mantener la misma cantidad de azúcar en la sangre. Esta condición, denominada hiperinsulinemia compensatoria, es un signo precoz de resistencia a la insulina y representa un terreno favorable para el desarrollo futuro de síndrome metabólico y enfermedades cardiovasculares. No es casualidad que en muchas pacientes con lupus también se hayan encontrado niveles más elevados de triglicéridos y colesterol LDL oxidado, factores que aumentan aún más el riesgo de aterosclerosis (El Magadmi et al., 2006) [5].

De manera análoga, un estudio realizado en 58 mujeres con lupus confirmó que la resistencia a la insulina y las anomalías en la secreción de insulina no dependen necesariamente de la gravedad de la enfermedad o de la presencia de autoanticuerpos específicos. Incluso en sujetos con una enfermedad clínicamente leve o quiescente, es decir, temporalmente inactiva pero lista para reactivarse, se observan valores elevados de HOMA-IR (índice utilizado para estimar la resistencia a la insulina y la funcionalidad de las células β pancreáticas) y de insulina en ayunas, índices que dan fe de una menor eficiencia del sistema insulina-glucosa. Es interesante notar que esta condición tampoco se explica por el uso de corticosteroides, a menudo acusados de alterar el metabolismo, sino que parece intrínseca a la propia patología (Tso et al., 2004) [6].

Una confirmación aún más sorprendente proviene de los estudios en niños y adolescentes afectados por lupus juvenil. Incluso en esta población, joven y aparentemente "protegida" de los trastornos metabólicos, se ha detectado una marcada resistencia a la insulina en comparación con sus pares sanos. Dicha condición no estaba correlacionada ni con la duración de la enfermedad ni con la terapia, lo que sugiere que la reducida sensibilidad a la insulina puede contribuir a alimentar la inflamación crónica típica del lupus. Es como si la disfunción insulínica generara un constante "ruido de fondo" metabólico que mantiene activos los procesos inflamatorios, impidiendo que el organismo recupere un equilibrio fisiológico (Tarçın et al., 2022) [7].

Comprender este vínculo entre el lupus y el metabolismo insulínico no solo significa explicar una alteración bioquímica, sino captar un aspecto central de la propia enfermedad: el fallo de la regulación, principalmente hormonal y luego inmunitaria. Es en esta doble pérdida de equilibrio, del sistema energético y del de defensa, donde el lupus muestra toda su complejidad y, quizás, también una posible clave para nuevas estrategias terapéuticas capaces de intervenir no solo en la inflamación, sino también en el metabolismo que la sostiene.

mTOR como nodo central

En el complejo panorama del lupus eritematoso sistémico, la vía de señalización mTOR emerge como un nodo decisivo, casi como un “director metabólico” que regula la vida y el destino de las células inmunitarias. La actividad de esta proteína quinasa, que en condiciones fisiológicas actúa como sensor de nutrientes y regulador del crecimiento celular, aparece profundamente alterada en el lupus, donde se observa una hiperactivación constante: es como si el interruptor que controla el crecimiento y el consumo energético de las células permaneciera bloqueado en “encendido”, alimentando así la inflamación a través de los linfocitos efectores y la pérdida de tolerancia inmunológica mediante la reducción de las células T reguladoras.

La vía mTOR, de hecho, actúa como una especie de “centralita bioenergética” que decide si una célula T debe convertirse en un promotor de la inflamación (Th1, Th17) o en un elemento regulador y pacificador (Treg). Cuando mTOR está hiperactivo, las células T efectoras son estimuladas a proliferar y a producir citoquinas inflamatorias, mientras que las células T reguladoras pierden estabilidad y función. Este cambio de roles contribuye a una condición de “anarquía inmunitaria”, en la que las células que deberían frenar la agresión inmunitaria se vuelven demasiado débiles para hacerlo (Delgoffe et al., 2009) [8]; (Zhao et al., 2022) [9].

En el lupus, la desregulación de mTOR no se limita a las células T: afecta a todo el equilibrio metabólico del sistema inmunitario, involucrando a las mitocondrias, las centrales energéticas de la célula, y a los procesos de autofagia, que normalmente eliminan los componentes celulares dañados. Cuando mTOR está hiperactivo, la autofagia se reduce, las mitocondrias se vuelven disfuncionales y comienzan a producir cantidades excesivas de radicales libres (ROS), generando un ambiente proinflamatorio persistente. Esta condición altera el metabolismo celular y favorece la supervivencia de células autorreactivas que continúan reconociendo como “extraños” los tejidos del propio organismo (Robinson et al., 2022) [10]; (Saadh et al., 2023) [11].

La diferenciación de las células T helper y la producción de anticuerpos por parte de las células B también se ven influenciadas por este desequilibrio. La activación excesiva de mTORC1 promueve la proliferación linfocitaria y la secreción de citoquinas inflamatorias, amplificando así la cascada autoinmune. Al mismo tiempo, la reducción de la autofagia impide la correcta eliminación de los fragmentos celulares y nucleares, que se convierten en blancos para la formación de autoanticuerpos. En otras palabras, mTOR, que debería regular con precisión la energía y la diferenciación celular, se transforma en un acelerador de la disfunción inmunitaria (He et al., 2020) [12].

El impacto de esta vía es tan generalizado que algunos autores han propuesto considerar el lupus como una “enfermedad por hiperactividad de mTOR”. Tal definición, aunque simplificada, ayuda a comprender la profunda interconexión entre metabolismo e inmunidad: la inflamación crónica no es solo una respuesta anómala del sistema inmunitario, sino también el reflejo de un metabolismo energético fuera de control, en el que las células consumen excesivamente oxígeno y nutrientes sin lograr volver a un estado de reposo.

Otro elemento crucial es la capacidad de mTOR para integrar las señales provenientes del microambiente: la glucosa, los aminoácidos, los lípidos y los factores de crecimiento actúan como mensajes que orientan la elección de las células T entre un destino proinflamatorio y uno regulador. Cuando estas señales están alteradas, como ocurre en el lupus, mTOR recibe instrucciones erróneas y empuja a las células hacia la proliferación incontrolada. Se crea así un “diálogo distorsionado” entre metabolismo e inmunidad, donde cada error energético se traduce en un error inmunológico (Fernandez y Perl, 2010) [13].

El descubrimiento de estos mecanismos ha tenido también una repercusión terapéutica importante: fármacos como la rapamicina, desarrollada originalmente como inmunosupresor, han demostrado ser capaces de “apagar” selectivamente la vía mTOR, devolviendo el equilibrio al sistema inmunitario. La inhibición de mTORC1 mediante rapamicina favorece, de hecho, la expansión de las células T reguladoras y la reducción de las efectoras, atenuando la actividad inflamatoria y mejorando los parámetros clínicos en pacientes con lupus refractario a las terapias convencionales. Además, los efectos antioxidantes y antifibróticos de la rapamicina contribuyen a proteger los órganos diana, como los riñones y la piel, a menudo dañados por la enfermedad (Zhao et al., 2022) [9]; (Fernandez y Perl, 2010) [13].

Estas evidencias sugieren que mTOR no es solo un actor más, sino una especie de “director molecular” de la patogenia del lupus: regula la actividad de las células T y B, modula el metabolismo energético y gobierna los procesos de supervivencia y diferenciación celular; cuando esta dirección se altera, todo el sistema inmunitario pierde la sincronía, generando la desarmonía que reconocemos como autoinmunidad. Restablecer el equilibrio de mTOR, por tanto, no significa simplemente suprimir la inflamación, sino poner orden en el diálogo interrumpido entre el metabolismo y el sistema inmunitario, devolviendo al cuerpo la capacidad de reconocerse y protegerse sin autodestruirse.

Inhibidores de mTOR

En los últimos años, la inhibición de la vía mTOR ha representado uno de los descubrimientos más prometedores en el manejo de las enfermedades autoinmunes, en particular del lupus eritematoso sistémico. Tras décadas en las que los tratamientos se basaban casi exclusivamente en corticosteroides e inmunosupresores inespecíficos (fármacos que reducen una respuesta inmunitaria excesiva), la rapamicina y su análogo sirolimus han abierto un nuevo capítulo terapéutico: ya no se trata de la simple supresión del sistema inmunitario, sino de su reprogramación hacia el equilibrio.

El principio que sustenta estos fármacos es tan sencillo como elegante: modular la vía de señalización de mTOR, el “controlador metabólico” de las células inmunitarias, para reducir la hiperactividad de las células efectoras y favorecer la recuperación de las células reguladoras. En los pacientes con lupus, de hecho, mTOR es como un acelerador atascado al máximo: las células T inflamatorias proliferan sin freno, mientras que las células T reguladoras (Treg), encargadas de mantener la tolerancia inmunológica, resultan escasas e ineficaces. Al inhibir mTOR, la rapamicina apaga este exceso de energía y restablece el silencio biológico necesario para la tolerancia (Battaglia et al., 2012) [14].

Ya en los años 90, experimentos realizados en modelos murinos (estudios realizados en roedores) habían mostrado resultados sorprendentes: en ratones predispuestos al lupus, el tratamiento con rapamicina no solo prolongaba la supervivencia, sino que también detenía las alteraciones patológicas en riñones, hígado y pulmones, reduciendo drásticamente los niveles de autoanticuerpos y las lesiones inflamatorias difusas (Warner et al., 1994) [15]. En aquellos estudios pioneros, los animales tratados mostraban un retorno casi a la normalidad de los parámetros inmunológicos, como si el sistema hubiera “recordado” su correcto equilibrio.

Años después, los mismos efectos se confirmaron también en seres humanos: en pacientes afectados por lupus refractario, es decir, resistentes a los tratamientos convencionales, la rapamicina determinó una clara mejoría clínica, con una reducción de la actividad de la enfermedad y una disminución significativa de la dosis de corticosteroides necesaria para mantener el control. Aún más interesante, la rapamicina normalizó el flujo de calcio en las células T, un parámetro estrechamente ligado a su hiperactivación, lo que sugiere un efecto profundo en el metabolismo celular y no solo en la inflamación superficial (Fernandez et al., 2006) [16].

Uno de los aspectos más relevantes surgidos de estas investigaciones es la capacidad del sirolimus para expandir las células T reguladoras CD4+ y CD25+, y del factor de transcripción FOXP3+, consideradas el eje de la tolerancia inmunitaria. In vitro, la rapamicina permite multiplicar estas células manteniendo su fenotipo, es decir, el conjunto de las características visibles y funcionales de un individuo, y la función supresora, un resultado que ha abierto la puerta a potenciales aplicaciones en las terapias celulares personalizadas para las enfermedades autoinmunes (Battaglia et al., 2012) [14].

Las evidencias clínicas más sólidas provienen de estudios prospectivos y metaanálisis realizados en pacientes adultos y pediátricos: en diversos ensayos, el sirolimus determinó una reducción significativa del índice de actividad SLEDAI (índice creado para proporcionar una evaluación objetiva y reproducible de la actividad del LES), una mejora de los niveles de complemento C3 y C4 (proteínas plasmáticas del sistema inmunitario que participan en la defensa contra las infecciones y en la regulación de la inflamación) y una disminución de los autoanticuerpos anti-ADN, todos ellos indicadores de un control inmunológico eficaz (Peng et al., 2020) [17]; (Ji et al., 2020) [18]. Paralelamente, los pacientes pudieron reducir de forma consistente el uso de prednisona (fármaco con potente acción antiinflamatoria) en una media de 10-13 mg al día, limitando así los efectos secundarios a largo plazo de los corticosteroides, una de las prioridades terapéuticas en el manejo del lupus.

También en niños con lupus de inicio precoz, el sirolimus demostró ser eficaz y bien tolerado: en un estudio en pacientes pediátricos, el fármaco redujo de forma significativa la actividad de la enfermedad, mejoró los parámetros inmunológicos y permitió un marcado ahorro de esteroides, sin registrar eventos adversos graves (Zhang et al., 2022) [19]. Los pocos casos de infecciones menores reportados se resolvieron espontáneamente, confirmando un perfil de seguridad favorable.

Un ámbito particularmente interesante es el del lupus cutáneo refractario, en el que la rapamicina ha demostrado poder reducir las lesiones inflamatorias y mejorar la calidad de la piel incluso en los casos más resistentes. En un paciente con lupus eritematoso discoide generalizado, una forma grave y escasamente sensible a las terapias convencionales, el tratamiento con sirolimus condujo a una mejoría evidente ya después de pocas semanas, sin efectos secundarios relevantes (Herold et al., 2018) [20]. Estos resultados sugieren que los inhibidores de mTOR no actúan solo sobre las células circulantes del sistema inmunitario, sino también a nivel de los tejidos, donde regulan la actividad inflamatoria local y la respuesta cutánea.

En los casos de nefritis lúpica, una de las complicaciones más graves de la enfermedad, el sirolimus mostró una eficacia comparable a la del micofenolato de mofetilo (fármaco inmunosupresor que inhibe la proliferación de los linfocitos T y B), el estándar terapéutico actual. En un estudio con más de cien pacientes, los dos tratamientos tuvieron efectos similares sobre la enfermedad, pero el sirolimus mostró algunas ventajas y una mayor seguridad, sin efectos adversos graves (Bai et al., 2025) [21].

La combinación de estos resultados experimentales y clínicos confirma que los inhibidores de mTOR no son simplemente fármacos inmunosupresores, sino verdaderos moduladores del equilibrio inmunometabólico. No apagan el sistema inmunitario, sino que lo “reeducan” para reconocer el límite entre la defensa y la autodestrucción. Su eficacia en el lupus, y el creciente interés por su uso en otras patologías autoinmunes, representan el paso de una medicina de contención a una medicina de restauración.

En definitiva, la rapamicina y el sirolimus ofrecen una visión nueva del tratamiento de las enfermedades autoinmunes: una terapia capaz de hablar el lenguaje de las células, de corregir los errores de su metabolismo y de devolver al sistema inmunitario la posibilidad de autorregularse. Y en esta perspectiva, la inhibición de mTOR no aparece solo como una estrategia terapéutica, sino como un intento de devolver el equilibrio al diálogo interrumpido entre la inmunidad y la función biológica.

mTOR, HIF-1α y reprogramación metabólica de las células del sistema inmunitario

En el lupus eritematoso sistémico, la activación persistente de mTOR puede contribuir a la pérdida del equilibrio inmunológico a través de la activación de HIF-1α. De hecho, mTOR representa uno de los principales sensores metabólicos de la célula y, cuando se estimula de forma persistente, favorece un programa anabólico y glucolítico compatible con la activación de los linfocitos efectores. HIF-1α constituye uno de los efectores centrales de este programa: aumenta la expresión de genes glucolíticos y sostiene la diferenciación de las células Th17, mientras que un perfil metabólico menos dependiente de la glucólisis favorece en mayor medida al compartimento regulador. En el LES, esta relación adquiere especial relevancia porque tanto mTOR como HIF-1α resultan alterados en las células T, creando las condiciones para un desequilibrio Th17/Treg y para el mantenimiento de la inflamación autoinmune.

Una de las demostraciones mecanísticas más directas se proporcionó en 2022: algunos investigadores identificaron a SIRT2 (enzima que contribuye a la regulación del metabolismo y de las funciones celulares) como regulador de la diferenciación Th17 en las células T CD4+. SIRT2 favorecía la activación de la secuencia mTORC1–HIF-1α, aumentando así la diferenciación Th17 y la producción de IL-17A. En las células T de los pacientes con LES, SIRT2 resultaba elevada y su inhibición farmacológica reducía la capacidad de generar células Th17. En ratones genéticamente predispuestos a desarrollar la enfermedad similar al lupus, el bloqueo de SIRT2 atenuaba además la enfermedad autoinmune. Por lo tanto, este estudio proporciona una prueba particularmente importante de la presencia funcional del eje mTORC1→HIF-1α→Th17 en el lupus (Hisada et al., 2022) [22].

Ese mismo año, un segundo estudio analizó directamente HIF-1α en los linfocitos T de pacientes con LES: la expresión de este factor de transcripción resultaba significativamente aumentada en las células T CD4+ tanto a nivel del ARNm como de la proteína. Además, HIF-1α era particularmente elevado en las condiciones que favorecían la diferenciación Th17; su sobreexpresión experimental en los linfocitos T murinos aumentaba, de hecho, la generación de células Th17. En los pacientes, la expresión de HIF-1α correlacionaba positivamente con genes involucrados en la glucólisis y con el programa IL-17. Estos resultados sitúan a HIF-1α como un efector metabólico directamente involucrado en la expansión del compartimento Th17 en el lupus (Liao et al., 2022) [23].

Un aporte importante a la comprensión del metabolismo aguas arriba de HIF-1α fue proporcionado por otros investigadores en 2019: en el mismo tipo de ratones vistos anteriormente, la inhibición de la glutaminasa 1 (enzima que permite a la célula utilizar metabólicamente la glutamina) reducía la glucólisis, la expresión de la proteína HIF-1α y la diferenciación Th17, acompañándose de una mejora de la patología autoinmune. El mismo tratamiento aplicado a las células T provenientes de pacientes con LES disminuía la diferenciación Th17. Los experimentos de silenciamiento genético confirmaron, además, que la reducción de HIF-1α representaba un paso a través del cual la inhibición de la glutaminólisis limitaba la glucólisis y la actividad Th17. El estudio demuestra, por tanto, cuánto está estrechamente integrado HIF-1α con el metabolismo patológico de los linfocitos T en el lupus (Kono et al., 2019) [24].

El papel del nodo situado aguas arriba ya había sido puesto de manifiesto años antes por otros investigadores, al analizar directamente linfocitos T de pacientes con LES: la actividad de mTORC1 resultaba aumentada y se asociaba a una expansión de las células Th17 y de las células T CD4+CD8+ (células efectoras), mientras que la población Treg resultaba reducida.

La importancia patológica de HIF-1α fue finalmente confirmada también a nivel tisular en 2023. En un modelo de lupus cutáneo, los linfocitos T CD4+ y CD8+ que infiltraban la piel expresaban niveles elevados de HIF-1α y mostraban un marcado programa citotóxico (conjunto de mecanismos que permiten a las células inmunitarias eliminar células peligrosas). La inhibición de HIF-1α reducía la actividad citotóxica de las células T y atenuaba tanto la enfermedad cutánea como las manifestaciones sistémicas. También en los tejidos de pacientes con lupus cutáneo, los infiltrados linfocitarios mostraban una elevada actividad de HIF-1α. Este factor de transcripción aparece, por tanto, no solo como un regulador metabólico, sino como un efector directamente involucrado en el daño tisular del lupus (Little et al., 2023) [25].

En conjunto, estas evidencias permiten reconstruir una secuencia coherente. En el LES, diversos estímulos metabólicos e inmunológicos favorecen la activación de mTOR, que aguas abajo sostiene a HIF-1α, aumenta la glucólisis y favorece la diferenciación de las células Th17. El aumento de IL-17 y la simultánea reducción relativa del compartimento Treg contribuyen, por tanto, a la pérdida de la tolerancia inmunológica. HIF-1α puede, además, sostener programas citotóxicos en las células T que infiltran los tejidos, contribuyendo directamente al daño orgánico. Se perfila, por tanto, un eje patogenético particularmente relevante: activación de mTOR → aumento de HIF-1α → glucólisis → Th17 → IL-17 → amplificación de la autoinmunidad y del daño tisular en el lupus eritematoso sistémico.

La vitamina D como modulador inmunometabólico

La compleja interacción entre el metabolismo, el sistema inmunitario y la inflamación en el lupus eritematoso sistémico no se limita a la alteración de las principales hormonas metabólicas. Entra en escena otro protagonista, a menudo silencioso pero crucial: la vitamina D; en los últimos años, esta vitamina ha surgido como una de las moléculas más estudiadas en el contexto de las enfermedades autoinmunes, asumiendo un papel que va mucho más allá del metabolismo tradicional del calcio y los huesos. Actúa como una verdadera hormona inmunomoduladora, capaz de influir profundamente en el comportamiento de las células del sistema inmunitario y de mantener el equilibrio entre la inflamación y la tolerancia. En condiciones normales, la vitamina D regula de forma silenciosa pero constante la actividad de las células T y B, promoviendo una respuesta controlada e impidiendo que el sistema de defensa se vuelva contra el propio organismo. Sin embargo, cuando sus niveles disminuyen, este equilibrio se rompe y la autoinmunidad encuentra un terreno fértil para desarrollarse.

Un amplio metaanálisis ha confirmado que los pacientes afectados por lupus eritematoso sistémico presentan niveles significativamente más bajos de 25-hidroxivitamina D, independientemente de la edad, el tratamiento o la estación del año. El déficit de vitamina D resultó no solo ser más común entre los pacientes en comparación con los sujetos sanos, sino también estar estrechamente relacionado con la gravedad de la enfermedad: cuanto más bajos son los valores de 25(OH)D, más elevado resulta el índice de actividad del lupus (SLEDAI) (Guan et al., 2019) [26]. Otro metaanálisis realizado en más de dos mil pacientes confirmó la misma tendencia: la carencia de vitamina D aumenta significativamente el riesgo de desarrollar lupus y agrava la progresión de la enfermedad, mientras que su suficiencia se asocia a una menor actividad inflamatoria y a un curso clínico más estable (Islam et al., 2019) [27].

Los estudios multicéntricos europeos han aportado más confirmaciones: al analizar a casi cuatrocientos pacientes, algunos investigadores demostraron una correlación inversa entre los niveles séricos de vitamina D y la actividad del lupus: cada disminución en la concentración de 25-OH-vitamina D iba acompañada de un aumento en la puntuación de actividad de la enfermedad, lo que sugiere que la vitamina D actúa como una especie de “freno biológico” sobre el sistema inmunitario (Amital et al., 2010) [28]. Las fluctuaciones estacionales también influyen en el curso de la patología: los niveles de vitamina D tienden a disminuir en invierno, periodo en el que los pacientes muestran una menor probabilidad de alcanzar un estado de baja actividad de la enfermedad (LLDAS), mientras que en verano, con una mayor exposición solar, las probabilidades de control clínico mejoran sensiblemente (Kim et al., 2024) [29].

En el plano inmunológico, la vitamina D se comporta como un modulador fino del diálogo entre las células T reguladoras (Treg) y las células Th17, dos poblaciones que representan, respectivamente, el equilibrio y el impulso inflamatorio del sistema inmunitario. En niños con lupus de inicio precoz, se ha observado que los niveles bajos de 25(OH)D se asocian a una prevalencia de células Th17 y a un número reducido de Treg, con una relación Th17/Treg desequilibrada hacia la inflamación. Por el contrario, concentraciones más altas de vitamina D restablecen el equilibrio, aumentando las células reguladoras y reduciendo la producción de citocinas proinflamatorias como IL-17, IL-6 y TNF-α (Jiang et al., 2023) [30]. Este efecto puede interpretarse como un verdadero “reinicio” del sistema inmunitario, que vuelve a distinguir el tejido nativo del cuerpo extraño.

Desde el punto de vista clínico, la suplementación con vitamina D ha demostrado ser capaz de restablecer la homeostasis inmunológica incluso en pacientes con hipovitaminosis documentada. En un estudio prospectivo, tras seis meses de suplementación, los niveles de 25(OH)D aumentaron significativamente, acompañándose de un crecimiento de las células Treg y una reducción de las Th1 y Th17, así como de un descenso en los títulos de anticuerpos anti-ADN, índice de un mejor control de la enfermedad. El tratamiento resultó ser bien tolerado, sin reagudizaciones ni efectos adversos relevantes (Terrier et al., 2012) [31].

En resumen, la vitamina D actúa como un mediador universal del equilibrio inmunitario y metabólico; de hecho, como hemos visto en el capítulo 6 dedicado al sistema inmunitario, a través de la modulación de mTOR, reduce la producción de mediadores inflamatorios, limita la proliferación anómala de los linfocitos T efectores y estimula la producción de linfocitos T reguladores, procesos centrales en la patogenia de la enfermedad. Este efecto regulador favorece un mejor control de la respuesta inmunitaria, previniendo la agresión autoinmunitaria contra los tejidos.

Restablecer niveles adecuados de vitamina D significa, en cierto sentido, devolver al sistema inmunitario su capacidad de discernimiento, reequilibrando la balanza entre defensa y tolerancia. Es como devolver la luz a un organismo que, en ausencia de esta molécula-hormona, opera constantemente en penumbra.

Conclusiones

Las evidencias científicas analizadas en este capítulo definen el lupus eritematoso sistémico (LES) como una patología autoinmune compleja en la que las alteraciones inmunológicas y metabólicas están profundamente interconectadas. La enfermedad afecta predominantemente al sexo femenino, sobre todo durante la edad fértil, y presenta una notable variabilidad epidemiológica y clínica.

El primer elemento central se refiere a la pérdida del equilibrio entre las poblaciones linfocitarias. En el LES, el aumento de la relación Tfh/Tfr favorece la activación de los linfocitos B y la producción de autoanticuerpos, mientras que el desequilibrio Th17/Treg determina el predominio de una respuesta proinflamatoria. Las células Th17 producen mediadores inflamatorios como IL-17 e IL-22, mientras que las Treg, normalmente responsables del mantenimiento de la tolerancia a través de FOXP3 y mediadores reguladores, se encuentran reducidas o funcionalmente comprometidas. Esta alteración posee también un componente metabólico: las poblaciones efectoras utilizan en mayor medida la glucólisis y la glutaminólisis, mientras que la activación anómala de mTOR contribuye al mantenimiento de su fenotipo inflamatorio.

A este cuadro se asocian importantes alteraciones del metabolismo insulínico: las investigaciones documentan en los pacientes con LES niveles más elevados de insulina en ayunas y una reducida sensibilidad insulínica, detectables incluso con glucemia normal, en las formas clínicamente quiescentes e incluso en los pacientes pediátricos. Estas observaciones demuestran que la disfunción insulínica puede estar presente independientemente de la diabetes manifiesta y no parece explicable exclusivamente por el uso de corticosteroides, lo que refuerza la existencia de un importante componente metabólico de la enfermedad.

El principal punto de convergencia entre la regulación metabólica e inmunitaria está representado por mTOR: su hiperactivación favorece a las células T efectoras y compromete el compartimento regulador, reduce la autofagia y se asocia a disfunción mitocondrial y producción de ROS. Coherentemente, la inhibición de mTOR mediante rapamicina/sirolimus ha mostrado resultados significativos en los modelos experimentales y en los estudios clínicos, favoreciendo la expansión de las Treg, reduciendo la actividad de la enfermedad, los autoanticuerpos anti-ADN y la necesidad de corticosteroides. También se han reportado resultados favorables en el lupus pediátrico, cutáneo refractario y en la nefritis lúpica.

Un paso adicional permite conectar mTOR con la reprogramación metabólica a través de HIF-1α: los estudios muestran que el eje mTORC1–HIF-1α sostiene la glucólisis y favorece la diferenciación Th17 y la producción de IL-17. La inhibición de los procesos metabólicos que alimentan a HIF-1α reduce, por el contrario, el fenotipo Th17 y atenúa la enfermedad experimental. Este factor transcripcional participa además en los programas citotóxicos de las células T que infiltran los tejidos. Emerge, por tanto, una secuencia coherente: mTOR → HIF-1α → glucólisis → Th17 → IL-17 → amplificación de la autoinmunidad y del daño tisular.

Finalmente, la vitamina D emerge como un importante modulador inmunometabólico: en los pacientes con LES, concentraciones inferiores de 25(OH) D se asocian a una mayor actividad de la enfermedad y a un desequilibrio Th17/Treg. La suplementación, en los sujetos estudiados, aumentó las Treg, redujo Th1 y Th17 y disminuyó los anticuerpos anti-ADN.

En conjunto, el LES emerge, por tanto, como el resultado de una interacción entre alteración metabólica, disregulación de mTOR y HIF-1α, reprogramación energética de las células inmunitarias y pérdida de la tolerancia, destacando en el inmunometabolismo una clave fundamental para interpretar la patogenia y las nuevas posibilidades terapéuticas de la enfermedad.

Referencias

[1] The ratio of circulating follicular T helper cell to follicular T regulatory cell is correlated with disease activity in systemic lupus erythematosus

Xu et al., 2017

Clin Immunol. 2017 Oct:183:46-53.

[2] T Cell Metabolism: A New Perspective on Th17/Treg Cell Imbalance in Systemic Lupus Erythematosus

Shan et al., 2020

Front Immunol. 2020 May 22:11:1027.

[3] T cell metabolism: new insights in systemic lupus erythematosus pathogenesis and therapy

2020

Sharabi e Tsokos. Nat Rev Rheumatol. 2020 Feb;16(2):100-112.

[4] Mechanisms of impaired regulation by CD4(+) CD25(+)FOXP3(+) regulatory T cells in human autoimmune diseases

Buckner, 2010

Nat Rev Immunol. 2010 Dec;10(12):849-59.

[5] Hyperinsulinemia, insulin resistance, and circulating oxidized low density lipoprotein in women with systemic lupus erythematosus

Magadmi et al., 2006

J Rheumatol. 2006 Jan;33(1):50-6.

[6] Clinical evaluation of insulin resistance and beta-cell function by the homeostasis model assessment in patients with systemic lupus erythematosus

Tso et al., 2004

Clin Rheumatol. 2004 Oct;23(5):416-20.

[7] Insulin resistance in children with juvenile systemic lupus erythematosus and ınvestigation of the possibly responsible factors

Tarçın et al., 2022

Clin Rheumatol. 2022 Mar;41(3):795-801.

[8] The mTOR kinase differentially regulates effector and regulatory T cell lineage commitment

Delgoffe et al., 2009

Immunity. 2009 Jun 19;30(6):832-44.

[9] mTOR signaling: A pivotal player in Treg cell dysfunction in systemic lupus erythematosus

Zhao et al., 2022

Clin Immunol. 2022 Dec:245:109153.

[10] The Role of Immunometabolism in the Pathogenesis of Systemic Lupus Erythematosus

Robinson et al., 2022

Front Immunol. 2022 Jan 26:12:806560.

[11] Role of T cells in the pathogenesis of systemic lupus erythematous: Focus on immunometabolism dysfunctions

Saadh et al., 2023

Int Immunopharmacol. 2023 Jun:119:110246.

[12] Advances in systemic lupus erythematosus pathogenesis via mTOR signaling pathway

He et al., 2020

Semin Arthritis Rheum. 2020 Apr;50(2):314-320.

[13] mTOR signaling: a central pathway to pathogenesis in systemic lupus erythematosus?

Fernandez e Perl, 2010

Discov Med. 2010 Mar;9(46):173-8.

[14] Expanding human T regulatory cells with the mTOR-inhibitor rapamycin

Battaglia et al., 2012

Methods Mol Biol. 2012:821:279-93.

[15] Rapamycin prolongs survival and arrests pathophysiologic changes in murine systemic lupus erythematosus

Warner et al., 1994

Arthritis Rheum. 1994 Feb;37(2):289-97.

[16] Rapamycin reduces disease activity and normalizes T cell activation-induced calcium fluxing in patients with systemic lupus erythematosus

Fernandez et al., 2006

Arthritis Rheum. 2006 Sep;54(9):2983-8.

[17] Clinical efficacy and safety of sirolimus in systemic lupus erythematosus: a real-world study and meta-analysis

Peng et al., 2020

Ther Adv Musculoskelet Dis. 2020 Sep 14:12:1759720X20953336.

[18] Efficacy and safety of sirolimus in patients with systemic lupus erythematosus: A systematic review and meta-analysis

Ji et al., 2020

Semin Arthritis Rheum. 2020 Oct;50(5):1073-1080.

[19] Clinical efficacy and safety of sirolimus in childhood-onset systemic lupus erythematosus in real world

Zhang et al., 2022

Medicine (Baltimore). 2022 Nov 18;101(46):e31551.

[20] Rapamycin for refractory discoid lupus erythematosus

Herold et al., 2018

Dermatol Ther. 2018 Sep;31(5):e12631.

[21] Sirolimus versus mycophenolate mofetil for the treatment of lupus nephritis: Results from a real-world CSTAR cohort study

Bai et al., 2025

Rheumatol Immunol Res. 2025 Jul 1;6(2):80-89.

[22] The Deacetylase SIRT2 Contributes to Autoimmune Disease Pathogenesis by Modulating IL-17A and IL-2 Transcription.

Hisada et al. Cellular & Molecular Immunology, 2022

vol. 19, no. 6, 2022, pp. 738–750.

[23] Increased HIF-1α Expression in T Cells and Associated with Enhanced Th17 Pathway in Systemic Lupus Erythematosus.

Liao et al., 2022

Journal of the Formosan Medical Association, vol. 121, no. 12, 2022, pp. 2446–2456.

[24] Glutaminase 1 Inhibition Reduces Glycolysis and Ameliorates Lupus-like Disease in MRL/lpr Mice and Experimental Autoimmune Encephalomyelitis.

Kono et al. Arthritis & Rheumatology, 2019

vol. 71, no. 11, 2019, pp. 1869–1878.

[25] HIF-1 Regulates Pathogenic Cytotoxic T Cells in Lupus Skin Disease.

Little et al. JCI Insight, 2023

vol. 8, no. 16, 2023, e166076.

[26] Association between circulating 25-hydroxyvitamin D and systemic lupus erythematosus: A systematic review and meta-analysis

Guan et al., 2019

Int J Rheum Dis. 2019 Oct;22(10):1803-1813.

[27] Vitamin D status in patients with systemic lupus erythematosus (SLE): A systematic review and meta-analysis

Islam et al., 2019

Autoimmun Rev. 2019 Nov;18(11):102392.

[28] Serum concentrations of 25-OH vitamin D in patients with systemic lupus erythematosus (SLE) are inversely related to disease activity: is it time to routinely supplement patients with SLE with vitamin D?

Amital et al., 2010

Ann Rheum Dis. 2010 Jun;69(6):1155-7.

[29] Seasonal vitamin D levels and lupus low disease activity state in systemic lupus erythematosus

Kim et al., 2024

Eur J Clin Invest. 2024 Jan;54(1):e14092.

[30] The changes of Treg and Th17 cells relate to serum 25(OH)D in patients with initial-onset childhood systemic lupus erythematosus

Jiang et al., 2023

Front Pediatr. 2023 Aug 23:11:1228112.

[31] Restoration of regulatory and effector T cell balance and B cell homeostasis in systemic lupus erythematosus patients through vitamin D supplementation

Terrier et al., 2012

Arthritis Res Ther. 2012 Oct 17;14(5):R221.