
Scientific Book

De la señal nerviosa a la respuesta hormonal

La respuesta neuroendocrina al estrés implica una compleja comunicación entre el cerebro, la hipófisis y las glándulas suprarrenales. El eje hipotálamo-hipofisario-adrenal, a través de la CRH, la ACTH y el cortisol, coordina adaptaciones que afectan al metabolismo, al sistema inmunitario y a la función cardiovascular. Los circuitos de la orexina también participan en la regulación de la activación y la respuesta a los estímulos. En el libro «La scelta di Vivere in Salute o in Malattia» (La elección de vivir con salud o enfermedad), el Dr. A. Colonnese y R. Panzironi profundizan en estos mecanismos y en las consecuencias de su alteración persistente.

Citar este artículo
Colonnese, A. & Panzironi, R. (2026). De la señal nerviosa a la respuesta hormonal. La elección de vivir en salud o en enfermedad. https://lifesciencehub.info/es/la-scelta-di-vivere-in-salute-o-in-malattia/de-la-senal-nerviosa-a-la-respuesta-hormonal
La elección de vivir en salud o en enfermedad · ISBN 979-12-82692-05-2

DOI lsh.es.libro.23

  • Publicación 05/11/2026
  • Actualización 05/11/2026
  • ESTRÉS NEUROENDOCRINO
  • GLUTAMATO
  • MTORC1/MTORC2
  • OREXINA
  • NORADRENALINA
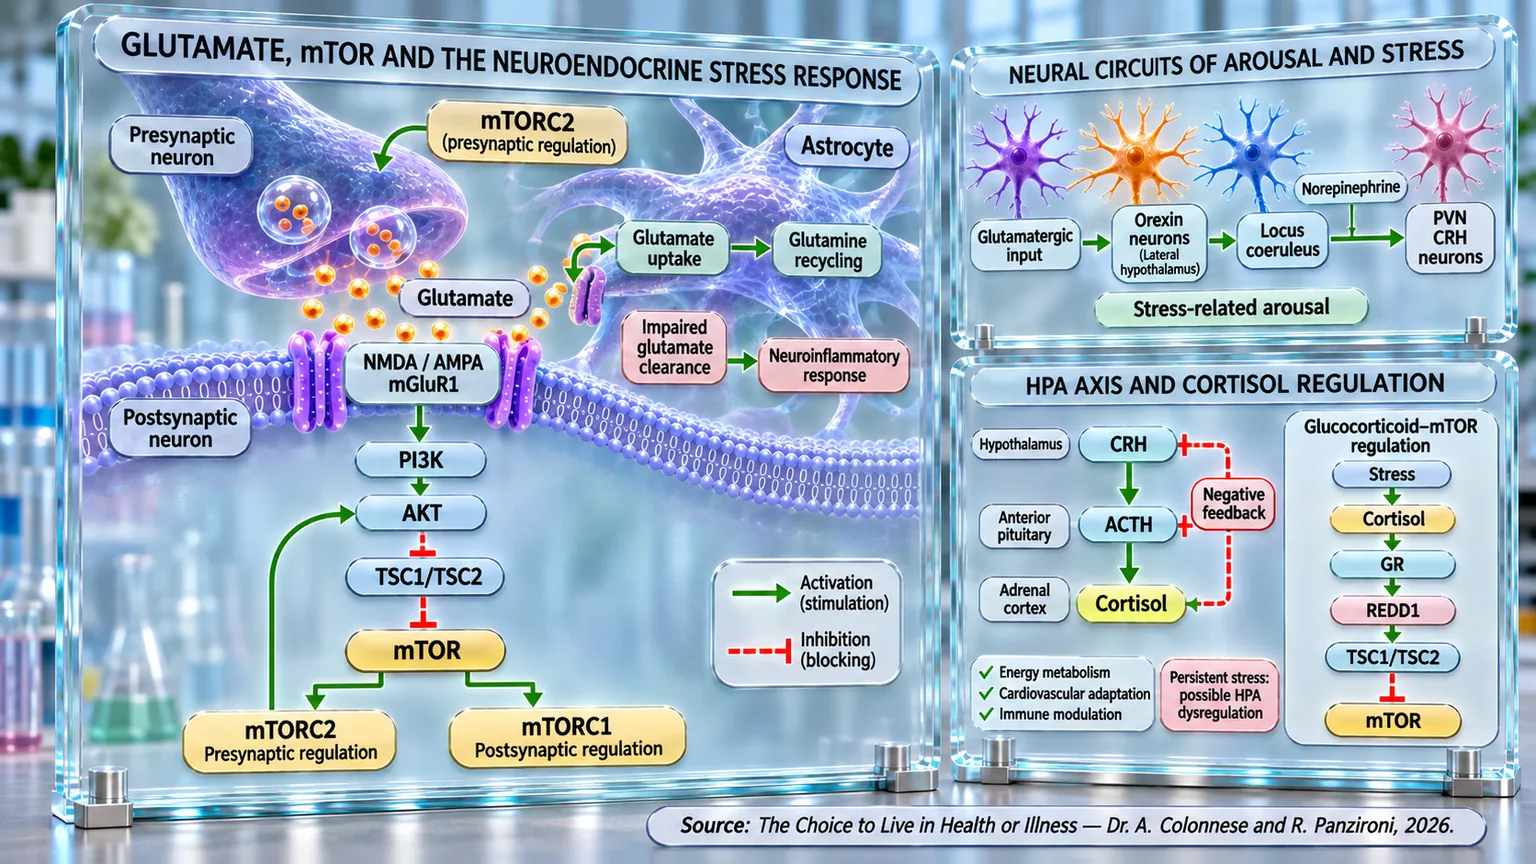
Esquema por paneles de la sinapsis glutamatérgica, los circuitos de orexina-noradrenalina y el eje HPA con flechas verdes activadoras y rojas inhibidoras.
Infografía de la respuesta neuroendocrina al estrés: el glutamato activa los receptores NMDA/AMPA-mGluR1, la vía PI3K-AKT-mTOR y el reciclaje astrocitario; los circuitos de orexina y el locus coeruleus convergen en las neuronas CRH del PVN, mientras que el eje hipotálamo-hipofisario-adrenal coordina la CRH, la ACTH y el cortisol con retroalimentación negativa y regulación glucocorticoide-mTOR.

ABSTRACT

La respuesta al estrés nace de la integración entre la comunicación neuronal y la regulación endocrina, necesaria para adaptarse a amenazas reales o percibidas. En el libro "La scelta di Vivere in Salute o in Malattia", el Dr. A. Colonnese y R. Panzironi analizan los circuitos que conectan la transmisión glutamatérgica, la vigilancia y la liberación de cortisol, destacando cómo la duración de la activación determina consecuencias fisiológicas diferentes, desde la movilización inmediata de los recursos energéticos hasta los cambios que acompañan a las condiciones de estrés persistente.

El glutamato, principal neurotransmisor excitatorio cerebral, sostiene la comunicación sináptica modulada por mTOR: mTORC1 contribuye a las respuestas postsinápticas, mientras que mTORC2 interviene en la liberación presináptica. Los astrocitos eliminan el glutamato extracelular y lo convierten en glutamina, permitiendo su reciclaje. Según las evidencias examinadas, una hiperactivación persistente de mTOR puede comprometer esta función, favoreciendo la acumulación glutamatérgica, la excitabilidad y la neuroinflamación. Las señales glutamatérgicas activan además las neuronas orexinérgicas del hipotálamo lateral, involucradas en el mantenimiento de la vigilia y en la amplificación de los circuitos de alerta, a través de conexiones glutamatérgicas locales.

La orexina llega al locus coeruleus, que recibe también aferencias glutamatérgicas de regiones cerebrales. La consiguiente actividad noradrenérgica sostiene la atención y la preparación conductual. La noradrenalina contribuye además a la activación de las neuronas del núcleo paraventricular que producen CRH. Este último estimula en la adenohipófisis la liberación de ACTH, induciendo la secreción suprarrenal de cortisol. La hormona regula la disponibilidad energética, la función cardiovascular y la actividad inmunitaria; el ritmo circadiano y el feedback negativo contribuyen a limitar su respuesta. Durante el estrés prolongado pueden aparecer adaptaciones noradrenérgicas, hipotalámicas y suprarrenales, con modificaciones de su sensibilidad.

En conjunto, la secuencia glutamato–orexina–noradrenalina–CRH–ACTH–cortisol describe una integración funcional entre sinapsis, redes cerebrales y el eje hipotálamo-hipófisis-suprarrenal, sin agotar la complejidad de la respuesta al estrés. Cuando la activación es transitoria, favorece la adaptación; cuando persiste, puede asociarse a alteraciones de la ritmicidad hormonal, de la sensibilidad a los glucocorticoides y de la regulación inmunometabólica. Comprender estos vínculos permite distinguir los mecanismos protectores de las posibles consecuencias de su disregulación crónica.

mTOR y glutamato

En el capítulo anterior descubrimos cómo el estrés crónico, a través del cortisol, puede alterar la sensibilidad a la insulina y el metabolismo celular. Seguimos este proceso hasta los mecanismos que involucran a REDD1, mTOR, AKT y GLUT4, comprendiendo cómo una respuesta inicialmente protectora puede comprometer el equilibrio energético. Pero, ¿qué sucede en el cerebro antes de que se libere el cortisol? ¿Qué señales transforman una amenaza percibida en una respuesta hormonal? Para responder, debemos explorar los circuitos nerviosos que regulan el estrés, partiendo del papel de AMPK y mTOR en la transmisión del glutamato, hasta la activación de la orexina, la noradrenalina y el eje hipotálamo-hipófisis-suprarrenal.

Para comprender esta secuencia, debemos remontarnos al origen de la respuesta al estrés. Antes de que el cortisol llegue a la sangre e influya en el metabolismo, el cerebro debe reconocer el estímulo y activar los circuitos nerviosos involucrados. Esta comunicación depende de una red de neuronas que intercambian señales químicas, regulando la intensidad y la duración de la respuesta. Precisamente en esta fase surge un vínculo fundamental entre el metabolismo y la actividad cerebral: las vías AMPK y mTOR pueden influir en el funcionamiento de las sinapsis. Para entender cómo ocurre esta comunicación, es necesario partir del principal mensajero excitatorio del cerebro: el glutamato.

Si la noradrenalina aumenta el estado de vigilancia y dirige la atención hacia los estímulos potencialmente relevantes, es, de hecho, el glutamato el que permite que esta activación se propague dentro de las redes neuronales, transformando una señal de alerta en una respuesta coordinada de todo el cerebro. En la base de este proceso se encuentra una vez más mTOR, que regula directamente el funcionamiento de las sinapsis glutamatérgicas, modulando la liberación del neurotransmisor, la sensibilidad de las neuronas postsinápticas y la plasticidad de las conexiones neuronales. De este modo, el estado metabólico de la célula se traduce en modificaciones de la eficiencia de la comunicación sináptica, permitiendo que el cerebro adapte su actividad a las necesidades energéticas y ambientales (McCabe et al., 2020) [1].

Las investigaciones más recientes han demostrado que los dos complejos a través de los cuales actúa mTOR, mTORC1 y mTORC2, desempeñan funciones diferentes pero complementarias en la regulación de la transmisión glutamatérgica. mTORC1 ejerce predominantemente un control postsináptico (la parte de la neurona que recibe las señales químicas transmitidas por otra neurona a través de la sinapsis, punto de comunicación entre células nerviosas), manteniendo el número de sinapsis excitatorias y modulando la expresión de los receptores AMPA responsables de la respuesta al glutamato. Cuando este complejo se inactiva, disminuyen el número de sinapsis y la amplitud de las corrientes postsinápticas excitatorias, lo que indica una reducida capacidad de la neurona para responder al estímulo glutamatérgico. Por el contrario, mTORC2 actúa principalmente a nivel presináptico (la parte de la neurona que envía señales a otras células, liberando sustancias químicas llamadas neurotransmisores), regulando la probabilidad de liberación de las vesículas que contienen glutamato y la sensibilidad de todo el proceso a las señales del calcio intracelular. La pérdida de mTORC2 reduce, de hecho, la liberación evocada del neurotransmisor y compromete la eficiencia de la comunicación sináptica. Los dos complejos, por lo tanto, operan como los dos lados de la misma conversación: uno garantiza que el mensaje se reciba correctamente, el otro asegura que se transmita con la intensidad adecuada y en el momento oportuno (McCabe et al., 2020) [1].

Además de las neuronas, los astrocitos (células del sistema nervioso que nutren, protegen y sostienen a las neuronas) también participan de manera determinante en el control de la neurotransmisión glutamatérgica. Durante muchos años, estas células fueron consideradas simples elementos de soporte estructural; hoy, en cambio, se sabe que constituyen un componente esencial de la llamada sinapsis tripartita, en la cual la neurona presináptica, la neurona postsináptica y el astrocito colaboran continuamente para mantener el equilibrio de la transmisión nerviosa. Una de las funciones más importantes de los astrocitos consiste en la rápida eliminación del glutamato de la hendidura sináptica mediante transportadores específicos, responsables de la casi totalidad de la captación del glutamato extracelular. Una vez internalizado, el glutamato es convertido en glutamina por la glutamina sintetasa (una enzima que transforma el glutamato y el amoníaco en glutamina) y devuelto a las neuronas, que podrán transformarlo nuevamente en glutamato y utilizarlo para una nueva transmisión sináptica. Este reciclaje continuo impide la acumulación del neurotransmisor en el espacio extracelular y protege a las neuronas del fenómeno de la excitotoxicidad, es decir, de la estimulación excesiva de los receptores glutamatérgicos que puede culminar en daño celular (Peterson y Binder, 2020) [2].

La función de los astrocitos está, a su vez, estrictamente regulada por mTOR. En condiciones fisiológicas, esta vía de señalización coordina el metabolismo energético astrocitario, controla la utilización de la glucosa, la producción de NADPH (una molécula que proporciona a las células el poder reductor necesario para contrarrestar el estrés oxidativo), el metabolismo mitocondrial, el ciclo glutamato-glutamina y el mantenimiento de la homeostasis iónica (capacidad de las células para mantener en equilibrio la concentración de iones). Sin embargo, cuando mTOR se vuelve crónicamente hiperactivo, como ocurre en diversas patologías neurológicas, los astrocitos pierden progresivamente la capacidad de mantener estable el entorno extracelular. La expresión de los transportadores específicos del glutamato disminuye, la glutamina sintetasa se reduce, el glutamato tiende a acumularse en el espacio sináptico y aumenta la susceptibilidad a la hiperexcitabilidad neuronal. Paralelamente, también resultan comprometidos el tamponamiento del potasio extracelular y la función mitocondrial, con alteraciones que amplifican aún más la excitabilidad de las redes neuronales. De este modo, mTOR no solo controla el metabolismo de la célula individual, sino que se convierte en un regulador de todo el equilibrio funcional de la red cerebral, determinando si el glutamato será eliminado rápidamente o si continuará estimulando a las neuronas de manera persistente (Hochmuth y Hirrlinger, 2025) [3].

Continuando a lo largo de esta cascada fisiológica, se observa cómo la regulación del glutamato no depende solo de la actividad de los transportadores astrocitarios, sino también del estado inflamatorio del tejido nervioso. En condiciones de estrés crónico, dolor persistente o daño neuronal, la hiperactivación de mTOR en los astrocitos favorece, de hecho, su transformación hacia el fenotipo reactivo A1, caracterizado por la producción de mediadores proinflamatorios y por la pérdida progresiva de las funciones normales de soporte metabólico. La consecuencia es una marcada neuroinflamación acompañada de una reducción de la expresión de GLT-1 (proteína transportadora del glutamato) y de la glutamina sintetasa, con la consiguiente disminución de la capacidad de los astrocitos para eliminar el glutamato extracelular.

La acumulación del neurotransmisor determina así una persistente hiperexcitabilidad neuronal, favorece la sensibilización central y mantiene activos los circuitos responsables de la respuesta al estrés. La observación de que la inhibición farmacológica de mTOR mediante rapamicina restablece la expresión de los principales sistemas de eliminación del glutamato y atenúa simultáneamente la neuroinflamación y la actividad neuronal demuestra cómo esta vía representa uno de los principales puntos de convergencia entre el metabolismo celular, la inflamación y la excitabilidad cerebral (Dong et al., 2025) [4].

Otro estudio sugiere que el glutamato no representa simplemente un neurotransmisor excitatorio, sino que constituye también una señal metabólica a través de la cual la célula informa a mTOR sobre la disponibilidad de nutrientes y adapta, en consecuencia, la síntesis proteica, la producción energética y la actividad sináptica. En otras palabras, el cerebro utiliza el glutamato como un verdadero lenguaje común entre el metabolismo y la neurotransmisión: la cantidad de glutamato disponible refleja simultáneamente el estado energético de la célula y su capacidad para sostener una elevada actividad neuronal (Tripathi et al., 2022) [5].

Las evidencias analizadas muestran cómo mTOR representa un vínculo fundamental entre el metabolismo energético y la comunicación neuronal. Al regular la liberación del glutamato, la sensibilidad de los receptores y la capacidad de los astrocitos para eliminarlo, esta vía contribuye al equilibrio de las redes cerebrales. Cuando dicha regulación se altera, la acumulación de glutamato puede favorecer la neuroinflamación y la hiperexcitabilidad, modificando la respuesta a los estímulos. Pero, ¿cómo se transforma esta actividad excitatoria en un estado de vigilancia y alerta? Para comprenderlo, debemos seguir al glutamato hacia las neuronas de la orexina, que conectan las señales metabólicas con la activación del locus coeruleus (una pequeña área del tronco encefálico que produce gran parte de la noradrenalina cerebral) y del sistema noradrenérgico durante el estrés.

Glutamato, orexina y locus coeruleus

Para comprender cómo el glutamato transforma la actividad de las redes neuronales en una respuesta de vigilancia y alerta, debemos seguir su efecto en las neuronas de orexina. Estas células, situadas en el hipotálamo lateral, representan un vínculo importante entre el metabolismo energético, la actividad cerebral y la respuesta al estrés. De hecho, reciben numerosas señales glutamatérgicas que regulan constantemente su excitabilidad. Las variaciones en la transmisión del glutamato pueden, por tanto, modificar rápidamente la actividad de las neuronas orexinérgicas, adaptando el estado de vigilancia a las necesidades metabólicas y ambientales. En este proceso, el glutamato transmite la señal excitatoria, mientras que la orexina (un neuropéptido, mensajero químico, producido en el hipotálamo, una región del cerebro) contribuye a amplificarla y distribuirla hacia otras regiones cerebrales, incluido el locus coeruleus. Se perfila así un paso fundamental: las señales metabólicas que influyen en la comunicación neuronal pueden contribuir a la activación de los circuitos responsables de la vigilancia y de la respuesta al estrés.

Las evidencias electrofisiológicas han demostrado que las neuronas de orexina poseen una actividad tónica espontánea pero, sobre todo, son capaces de amplificar rápidamente su propia activación a través de un sofisticado circuito local de retroalimentación positiva. Contrariamente a lo que se hipotetizó inicialmente, la orexina no ejerce de hecho una marcada autoexcitación directa sobre las neuronas que la producen. Su efecto principal consiste más bien en activar neuronas glutamatérgicas locales, las cuales aumentan la liberación de glutamato sobre las células orexinérgicas, sincronizando su descarga eléctrica. Este circuito determina una robusta despolarización de las neuronas de orexina, acompañada de un incremento de la frecuencia de los potenciales de acción (breves impulsos eléctricos que permiten a las neuronas transmitir rápidamente información a través del sistema nervioso) que puede superar en más de tres veces los valores basales. Gracias a este mecanismo, una población relativamente pequeña de neuronas logra reclutar rápidamente a toda la red orexinérgica, coordinando la activación simultánea de las numerosas regiones cerebrales responsables de la vigilia, la atención, el comportamiento alimentario y la respuesta al estrés. El glutamato no representa, por tanto, solo un estímulo excitatorio inicial, sino que se convierte en el principal amplificador de la transmisión orexinérgica, permitiendo al sistema mantener un estado de activación suficientemente intenso y prolongado (Li et al., 2002) [6].

La organización de este circuito destaca además cómo el cerebro utiliza simultáneamente mecanismos de amplificación y de control. Mientras el glutamato sincroniza y refuerza la actividad de las neuronas orexinérgicas, otros sistemas neuromoduladores ejercen una acción opuesta para impedir una activación excesiva. Entre estos revisten particular importancia la noradrenalina y la serotonina, que inducen una hiperpolarización de las neuronas de orexina y reducen significativamente su frecuencia de descarga. Se realiza así un sistema de autorregulación extremadamente refinado: el glutamato actúa como acelerador de la actividad orexinérgica, mientras que los sistemas monoaminérgicos contribuyen a limitar su intensidad, evitando que la activación de los circuitos de la vigilia se vuelva excesiva o persistente (Li et al., 2002) [6].

Más confirmaciones del papel central del glutamato provienen de los estudios farmacológicos sobre los receptores ionótropos no-NMDA (proteínas presentes en la superficie de las neuronas que, activadas por el glutamato, abren canales iónicos). La estimulación experimental de estos receptores mediante ácido kaínico determina de hecho un marcado aumento de la activación de las neuronas de orexina, documentado por el incremento de la expresión de la proteína c-Fos, uno de los principales marcadores de actividad neuronal. Por el contrario, la administración preventiva del antagonista selectivo CNQX reduce significativamente dicha respuesta, demostrando que una parte sustancial de la actividad orexinérgica depende precisamente de la transmisión glutamatérgica mediada por los receptores no-NMDA. El papel predominante de la transmisión glutamatérgica emerge con extrema claridad: sin un adecuado aporte de glutamato, la actividad de las neuronas orexinérgicas se reduce sensiblemente, limitando la capacidad del cerebro para mantener un estado de vigilancia y de preparación conductual (Eyigor et al., 2010) [7].

La importancia fisiológica de este circuito emerge con particular evidencia en las condiciones en las que la transmisión glutamatérgica se ve comprometida. Un ejemplo es el traumatismo craneoencefálico, en el cual numerosos pacientes desarrollan somnolencia diurna, reducción del estado de vigilancia y fragmentación del ciclo sueño-vigilia. Análisis ultraestructurales han demostrado que tales alteraciones no dependen de una pérdida generalizada de las neuronas de orexina, sino de una marcada reducción del glutamato contenido en las terminaciones presinápticas que establecen contactos excitatorios con estas neuronas. En otras palabras, el sistema orexinérgico permanece estructuralmente presente, pero recibe un número insuficiente de señales excitatorias para mantener el nivel normal de actividad. Es como si el motor funcionara perfectamente, pero recibiera una cantidad insuficiente de combustible para desarrollar toda su potencia. La consecuencia es una reducción de la activación de las neuronas de orexina y, por reflejo, de todo el sistema de arousal (estado de activación del cerebro y del organismo que aumenta la vigilancia, la atención y la capacidad de reaccionar a los estímulos) que de ellas depende (Elliott et al., 2018) [8].

Particularmente interesante es la observación de que esta alteración pueda ser al menos en parte reversible. La suplementación con aminoácidos de cadena ramificada (BCAA), iniciada después del trauma, resultó de hecho capaz de restaurar selectivamente el contenido de glutamato en las terminaciones nerviosas que inervan las neuronas orexinérgicas del hipotálamo lateral. Este resultado sugiere que el principal déficit funcional consecuente al trauma no está representado por un exceso de inhibición, sino por una pérdida del aporte glutamatérgico excitatorio. Dado que la leucina, la isoleucina y la valina constituyen importantes precursores metabólicos para la síntesis del glutamato, su disponibilidad permite reconstituir progresivamente los depósitos presinápticos del neurotransmisor, restableciendo la normal excitación de las neuronas de orexina. El efecto aparece además altamente selectivo, ya que el restablecimiento del glutamato se observó sobre todo en las sinapsis dirigidas a las neuronas orexinérgicas, mientras que en las áreas corticales más dañadas por la lesión el contenido del neurotransmisor permanece sustancialmente reducido. Esto destaca cómo el sistema de la orexina representa uno de los blancos más sensibles de las modificaciones metabólicas que afectan al glutamato y confirma el papel central de este neurotransmisor en el mantenimiento del estado de vigilancia (Elliott et al., 2018) [8].

En su conjunto, estas evidencias delinean un circuito extremadamente coherente. El glutamato no desempeña simplemente la función de neurotransmisor excitatorio, sino que constituye el principal regulador de la actividad de las neuronas orexinérgicas. A través de la activación de los receptores no-NMDA (principalmente los receptores AMPA) y el reclutamiento de circuitos glutamatérgicos locales, sincroniza y amplifica la descarga de la población orexinérgica, permitiendo a un número relativamente limitado de neuronas coordinar la actividad de vastas redes cerebrales. Cuando, por el contrario, el aporte glutamatérgico se reduce, como ocurre después de un traumatismo craneoencefálico, todo el sistema de la orexina pierde eficiencia, con una consecuente disminución del estado de vigilancia. Al contrario, cuando la disponibilidad de glutamato aumenta, la activación de las neuronas orexinérgicas se vuelve más intensa y se propaga rápidamente hacia las principales estructuras diana del sistema de arousal.

La activación de las neuronas orexinérgicas representa solo una parte de la respuesta cerebral al estrés. El locus coeruleus, principal centro de producción de noradrenalina en el cerebro, recibe de hecho también señales glutamatérgicas directas de otras regiones nerviosas. Esto significa que el glutamato puede aumentar el estado de vigilancia a través de dos vías complementarias: estimulando las neuronas de orexina y activando directamente las noradrenérgicas. Pero ¿de qué regiones provienen estas señales? Y ¿cómo se integran para transformar una amenaza en una respuesta coordinada de alerta? Para comprenderlo, debemos examinar las conexiones glutamatérgicas que convergen en el locus coeruleus.

Glutamato y locus coeruleus

El sistema de la orexina, sin embargo, no representa la única fuente de activación del locus coeruleus. Para que este núcleo pueda modular rápidamente el estado de vigilancia y preparar al organismo para afrontar una amenaza, recibe una amplia red de aferencias glutamatérgicas provenientes de diversas regiones del sistema nervioso central. El glutamato constituye, de hecho, el principal neurotransmisor excitatorio capaz de determinar la rápida despolarización de las neuronas noradrenérgicas del locus coeruleus, aumentando su frecuencia de descarga y promoviendo una liberación difusa de noradrenalina en numerosas áreas cerebrales. De este modo, la activación del locus coeruleus no depende de un único circuito, sino que representa el resultado de la integración de múltiples informaciones relativas al estado energético, cardiovascular, metabólico y emocional del organismo. Cuando tales señales convergen simultáneamente, el glutamato actúa como un verdadero interruptor capaz de transformar estímulos locales en una respuesta global de alerta.

Un estudio de 2013 demuestra que las neuronas C1, situadas en el bulbo raquídeo, contribuyen a activar el sistema noradrenérgico durante el estrés. Estas células responden a estímulos como el dolor, la hipoglucemia, la hipoxia y las amenazas psicológicas. A través de la liberación de glutamato, estimulan directamente las neuronas del locus coeruleus y de otros núcleos noradrenérgicos cerebrales, aumentando potencialmente la producción de noradrenalina. Paralelamente, pueden activar el sistema nervioso simpático, favoreciendo la liberación periférica de catecolaminas (sustancias producidas por el sistema nervioso y las glándulas suprarrenales, como adrenalina, noradrenalina y dopamina). Los experimentos realizados en ratones evidencian, por tanto, un vínculo entre las señales de peligro, la transmisión glutamatérgica y la activación coordinada de las respuestas nerviosas centrales y periféricas al estrés (Holloway et al., 2013) [9].

Esta organización destaca cómo el glutamato representa el principal lenguaje a través del cual diferentes sistemas sensoriales y autonómicos convergen en el locus coeruleus. Las neuronas noradrenérgicas no se limitan, de hecho, a recibir pasivamente tales señales, sino que poseen una peculiar dotación receptorial que determina su sensibilidad a los estímulos excitatorios. Análisis de microdisección láser realizados en neuronas noradrenérgicas humanas han mostrado una elevada expresión de los receptores del glutamato, confirmando que este constituye el principal regulador fisiológico de su actividad. Aún más interesante es la observación de que, en los sujetos afectados por trastorno depresivo mayor, la expresión de receptores mGluR específicos del glutamato resulta significativamente aumentada precisamente en las neuronas del locus coeruleus, mientras que no se observan modificaciones análogas en la corteza prefrontal.

Este dato sugiere que, en las condiciones de estrés crónico y depresión, no aumenta simplemente la cantidad de glutamato disponible, sino que cambia la propia sensibilidad de las neuronas noradrenérgicas a la señal excitatoria. En otras palabras, el locus coeruleus se vuelve progresivamente más reactivo a los estímulos glutamatérgicos, favoreciendo una respuesta de alerta más intensa y prolongada. Tal mecanismo podría contribuir tanto a la hiperactivación del sistema noradrenérgico observada en la depresión como a la rapidez con la que fármacos de acción glutamatérgica, como la ketamina, logran modificar profundamente la sintomatología depresiva y la ideación suicida (Chandley et al., 2014) [10].

La regulación de la transmisión glutamatérgica en el locus coeruleus involucra además un sofisticado diálogo entre neuronas y astrocitos. Tradicionalmente, los transportadores gliales del glutamato, en particular GLT-1 y GLAST, han sido considerados simples sistemas de eliminación del neurotransmisor de la hendidura sináptica, con la función de limitar la excitabilidad neuronal y prevenir la excitotoxicidad. Sin embargo, en el locus coeruleus este paradigma resulta sorprendentemente diferente. Se ha demostrado, de hecho, que la activación farmacológica de los transportadores del glutamato mediante riluzol (un fármaco utilizado principalmente para ralentizar la progresión de la ELA) determina un aumento, en lugar de una reducción, de la actividad de las neuronas noradrenérgicas. El mecanismo involucra a los astrocitos: la entrada de glutamato a través de los transportadores aumenta la concentración intracelular de sodio, favorece la activación del intercambiador sodio-calcio, incrementa el calcio citoplasmático e induce una mayor liberación de glutamato por parte de las células gliales (células del sistema nervioso que protegen, nutren y sostienen a las neuronas). Se genera así un circuito de amplificación positiva que aumenta la activación de los receptores AMPA presentes en las neuronas del locus coeruleus. Paralelamente, la propagación de la señal a través de las uniones en hendidura (gap junctions, pequeños canales que conectan directamente células vecinas) sincroniza la actividad de la red neuroglial, haciendo más eficiente la activación de todo el sistema noradrenérgico. En condiciones fisiológicas, este mecanismo contribuye a aumentar la vigilancia y a activar las vías descendentes noradrenérgicas involucradas en el control del dolor; en condiciones de estrés persistente, sin embargo, podría contribuir a mantener elevado el tono del locus coeruleus y a prolongar el estado de hiperalerta (Hayashida et al., 2010) [11].

Prosiguiendo a lo largo de esta red de aferencias, emerge cómo el locus coeruleus no representa un simple núcleo que recibe señales excitatorias indistintas, sino un verdadero centro de integración capaz de atribuir un significado funcional diferente a cada entrada glutamatérgica. Un estudio en ratones demostró que el glutamato activa las neuronas noradrenérgicas del locus coeruleus, involucradas en la vigilancia y en la respuesta al estrés. Las señales excitatorias provienen principalmente de tres regiones cerebrales: corteza prefrontal, hipotálamo lateral y sustancia gris periacueductal (una región del tronco encefálico que rodea un pequeño canal del cerebro, contribuyendo a regular el dolor, las respuestas al miedo y al estrés). El hipotálamo lateral presenta las conexiones más fuertes, mientras que las otras regiones muestran características diferentes. Estos resultados evidencian cómo circuitos glutamatérgicos distintos regulan la actividad noradrenérgica, contribuyendo a modular las respuestas conductuales a los estímulos ambientales (Barcomb et al., 2022) [12].

Entre todas las vías glutamatérgicas dirigidas al locus coeruleus, una de las más relevantes en la respuesta al estrés está representada por la proyección proveniente de la sustancia gris periacueductal ventrolateral. Esta región, ya conocida por su papel en la modulación del dolor y de los comportamientos defensivos, envía una robusta proyección excitatoria a las neuronas noradrenérgicas del locus coeruleus, cuya actividad aumenta rápidamente durante la exposición a estímulos amenazantes. A través de registros de calcio, técnicas optogenéticas y electrofisiológicas, se ha demostrado que la intensidad de la activación de esta vía refleja fielmente el grado de amenaza percibida por el organismo. La estimulación glutamatérgica induce, de hecho, corrientes excitatorias directas en las neuronas noradrenérgicas, determinando un incremento de la liberación de noradrenalina y una progresiva modulación del estado de alerta (arousal). La inhibición experimental de la misma vía reduce, en cambio, la dilatación pupilar, atenúa los comportamientos ansiosos y disminuye el nivel general de alerta. Estas observaciones demuestran cómo el glutamato no se limita a activar el locus coeruleus, sino que modula finamente su grado de activación, permitiendo el paso gradual de un estado de vigilancia normal a condiciones de ansiedad, hasta niveles extremos de hiperalerta típicos de las respuestas de pánico (Wang et al., 2026) [13].

En su conjunto, estas evidencias delinean una organización jerárquica extremadamente refinada. El glutamato recoge información proveniente de sistemas metabólicos, autonómicos, cognitivos y defensivos, y la canaliza hacia el locus coeruleus a través de aferencias especializadas, cada una dotada de propiedades sinápticas y mecanismos de regulación propios. El locus coeruleus integra estas señales transformándolas en una activación coordinada del sistema noradrenérgico central, del cual dependen la vigilancia, la atención, la memoria emocional y la preparación conductual. Cuando esta activación supera un determinado umbral, la noradrenalina liberada en las estructuras hipotalámicas contribuye a estimular las neuronas secretoras de CRH (hormona liberadora de corticotropina), realizando la conexión funcional entre los circuitos neuronales de la alerta y la posterior activación endocrina del eje hipotálamo-hipófisis-suprarrenal, responsable de la liberación de cortisol.

Noradrenalina y CRH

La intensa activación del locus coeruleus representa el momento en el que la respuesta al estrés, hasta este punto predominantemente neuronal, comienza a transformarse en una respuesta neuroendocrina. La noradrenalina liberada por las neuronas noradrenérgicas no permanece confinada a las redes de vigilancia y atención, sino que llega al núcleo paraventricular del hipotálamo (PVN), el principal centro de control del eje hipotálamo-hipófisis-suprarrenal. Es en esta pequeña región del hipotálamo donde la información proveniente de los sistemas metabólicos, autonómicos y emocionales se integra y se convierte en la liberación de la hormona liberadora de corticotropina (CRH), la señal que inicia la respuesta endocrina al estrés. En este sentido, el PVN representa una verdadera central de mando: hasta este momento, el cerebro ha procesado y amplificado la señal de peligro a través de glutamato, orexina y noradrenalina; a partir de aquí, dicha información se transformará en una respuesta hormonal capaz de involucrar a todo el organismo.

Que la noradrenalina constituye uno de los principales activadores del PVN fue demostrado ya desde los primeros estudios de microdiálisis in vivo. Durante un estrés agudo por inmovilización, se observa de hecho un rápido y marcado incremento de la concentración extracelular de noradrenalina dentro del núcleo paraventricular, acompañado por un aumento de los principales metabolitos catecolaminérgicos, índice de una intensa liberación, recaptación y recambio del neurotransmisor. Es interesante observar que, tras exposiciones repetidas al mismo estresor, el pico de liberación evocado permanece sustancialmente conservado, mientras que cambian profundamente las condiciones basales: la disponibilidad extracelular de noradrenalina disminuye, aumenta el metabolismo intraneuronal y se reduce la relación entre noradrenalina y dihidroxifenilglicol (DHPG, una sustancia producida por la degradación de la noradrenalina). Estos resultados indican que el estrés crónico no apaga la respuesta noradrenérgica, sino que induce una remodelación funcional del sistema catecolaminérgico orientada a modificar continuamente su nivel de actividad. En otras palabras, el cerebro no pierde la capacidad de responder al estrés, sino que redefine su propio punto de equilibrio, preparándose para reaccionar más rápidamente a los estímulos sucesivos (Pacak et al., 1992) [14].

Para que la noradrenalina pueda transformar esta señal en una respuesta endocrina, es necesario, sin embargo, que las neuronas del PVN sean capaces de reconocerla e interpretarla. Los análisis anatómicos y autorradiográficos han demostrado que los receptores adrenérgicos α1 y α2 no están distribuidos uniformemente dentro del núcleo paraventricular, sino que resultan particularmente concentrados en la región parvocelular medial, sede de la mayor parte de las neuronas que sintetizan la CRH. Esta organización sugiere que las catecolaminas están estructuralmente predispuestas a ejercer un control preferencial precisamente sobre las células responsables de la activación del eje hipotálamo-hipófisis-suprarrenal, orientado a evitar una excesiva estimulación catecolaminérgica de las neuronas CRH durante condiciones de activación prolongada del eje HPA, destacando cómo también el sistema receptor participa activamente en los procesos de adaptación al estrés crónico (Cummings y Seybold, 1988) [15].

La activación del circuito neuronal-glial representa, no obstante, solo uno de los mecanismos a través de los cuales la noradrenalina promueve la liberación de CRH. El estudio demuestra que la noradrenalina puede activar directamente las neuronas que producen CRH, involucradas en la respuesta hormonal al estrés. A través de los receptores α1-adrenérgicos, favorece la apertura de los canales de calcio, aumentando la excitabilidad neuronal. Este proceso ocurre incluso sin la intervención de los circuitos del glutamato y del GABA, lo que indica un mecanismo independiente de activación. En los modelos experimentales, la exposición prolongada a la corticosterona (una hormona producida por las glándulas suprarrenales) reduce esta respuesta, evidenciando un sistema de control que limita la excesiva activación de las neuronas CRH. Los resultados sugieren, por tanto, que la noradrenalina regula directamente la actividad de los circuitos hipotalámicos responsables de la respuesta endocrina al estrés (Gouws et al., 2022) [16].

La transmisión noradrenérgica directa al núcleo paraventricular adquiere una importancia aún mayor cuando se analiza la organización de todo el eje del estrés. Las principales aferencias catecolaminérgicas que llegan al PVN se originan, de hecho, en el locus coeruleus y en el núcleo del tracto solitario, formando una red integrada de neuronas noradrenérgicas que canaliza hacia el hipotálamo información relativa al estado metabólico, cardiovascular, inmunitario y conductual del organismo. Experimentos de denervación selectiva de estas proyecciones han demostrado que su eliminación reduce significativamente la secreción de ACTH y de corticosterona en respuesta a un estrés agudo, confirmando que las aferencias catecolaminérgicas representan uno de los principales sistemas excitadores de las neuronas CRH. Aún más interesante es lo observado durante el estrés crónico variable. En esta condición, la eliminación de las aferencias noradrenérgicas continúa atenuando la liberación de ACTH, pero no impide el mantenimiento de la secreción de corticosterona, ya que la corteza suprarrenal desarrolla una mayor sensibilidad a la hormona hipofisaria. Esto demuestra que el organismo no se limita a modificar la actividad de los circuitos nerviosos centrales, sino que pone en marcha adaptaciones también a nivel periférico, haciendo que las glándulas suprarrenales sean capaces de producir cantidades adecuadas de glucocorticoides incluso en presencia de una reducida estimulación central. El estrés crónico, por tanto, no depende exclusivamente de una hiperactivación del cerebro, sino de una profunda reorganización de todo el eje hipotálamo-hipófisis-suprarrenal, en la cual la plasticidad neuronal y las adaptaciones endocrinas cooperan para mantener la respuesta al estrés (Flak et al., 2014) [17].

Las evidencias analizadas muestran cómo la noradrenalina representa un vínculo fundamental entre la activación de los circuitos cerebrales y la respuesta endocrina al estrés. Al llegar al núcleo paraventricular del hipotálamo, este neurotransmisor estimula las neuronas que producen CRH, tanto directamente como a través de circuitos neuronales locales. Cuando el estrés persiste, sin embargo, el organismo modifica progresivamente su propia respuesta. Cambian la actividad noradrenérgica, la sensibilidad de las neuronas hipotalámicas y la capacidad de las glándulas suprarrenales para responder a los estímulos. Estas adaptaciones demuestran que el estrés crónico involucra a todo el sistema neuroendocrino, no solo al cerebro. Pero, ¿qué ocurre cuando las neuronas hipotalámicas liberan CRH? ¿A través de qué pasos esta señal llega a las glándulas suprarrenales y determina la producción de cortisol? Para comprenderlo, debemos seguir la activación del eje hipotálamo-hipófisis-suprarrenal, en el cual la CRH estimula la liberación de ACTH (hormona producida por la hipófisis que estimula a las glándulas suprarrenales para liberar cortisol) e inicia una respuesta hormonal capaz de modificar el metabolismo, la actividad inmunitaria y el equilibrio de todo el organismo durante el estrés.

CRH y cortisol

La liberación de CRH por parte de las neuronas del núcleo paraventricular representa el punto de transición a través del cual una respuesta, hasta ese momento confinada al sistema nervioso central, se transforma en una adaptación endocrina de todo el organismo. Una vez vertida en el sistema porta hipotálamo-hipofisario, la CRH llega a la adenohipófisis (la parte anterior de la hipófisis, una pequeña glándula situada en la base del cerebro), donde estimula a las células corticotropas para sintetizar y liberar la hormona adrenocorticotropa (ACTH). Esta última entra en la circulación sistémica y llega a la corteza suprarrenal, induciendo la síntesis y secreción de cortisol, el principal glucocorticoide humano. A través de la sangre, el cortisol llega prácticamente a todos los órganos y tejidos, modulando el metabolismo energético, la función cardiovascular, la respuesta inmunitaria y la actividad cerebral. Por lo tanto, la respuesta al estrés no permanece confinada a los circuitos neuronales del hipotálamo y del tronco encefálico, sino que se transforma en una señal endocrina capaz de coordinar la actividad de todo el organismo.

Contrariamente a lo que se podría imaginar, la secreción de ACTH no depende exclusivamente de la cantidad de CRH disponible, sino que está organizada según un preciso ritmo circadiano generado por mecanismos centrales. Estudios realizados mediante infusión continua de CRH humana durante veinticuatro horas han demostrado que, incluso en presencia de una estimulación constante y máxima, la secreción de ACTH continúa siguiendo su característico patrón diario, con valores mínimos durante la noche y un incremento progresivo en las primeras horas de la mañana. Cuando el feedback negativo del cortisol se elimina farmacológicamente mediante metirapona (un fármaco que reduce la producción de cortisol por parte de las glándulas suprarrenales), la concentración de ACTH aumenta significativamente durante todo el día, pero la ritmicidad circadiana permanece sorprendentemente conservada. Esto demuestra que el ritmo del eje hipotálamo-hipófisis-suprarrenal no es generado por el cortisol mismo, sino por circuitos centrales, probablemente conectados a una pequeña área del hipotálamo que actúa como reloj biológico principal, mientras que el cortisol desempeña principalmente la función de limitar su intensidad a través del feedback negativo. En otras palabras, la CRH representa el acelerador del eje HPA, mientras que el cortisol actúa como el sistema de frenado que impide una respuesta excesiva y prolongada (Ur et al., 1995) [18].

La importancia del feedback glucocorticoideo emerge con aún mayor evidencia en las condiciones de estrés prolongado. Durante las fases iniciales de una enfermedad crítica, por ejemplo, la respuesta de la ACTH a la administración de CRH permanece sustancialmente superponible a la observada en sujetos sanos, lo que indica que el hipotálamo y la hipófisis conservan una capacidad de respuesta normal. Sin embargo, a medida que el estrés se prolonga, la situación cambia progresivamente. En las fases subagudas y prolongadas de la enfermedad crítica, la respuesta de la ACTH a la CRH se reduce en más de la mitad, a pesar del mantenimiento de concentraciones elevadas de cortisol libre circulante. Este patrón temporal sugiere que el problema no reside en un daño estructural de las células hipotalámicas o hipofisarias, sino en una supresión funcional ejercida por el persistente feedback negativo del cortisol. La exposición crónica a los glucocorticoides reduce, de hecho, progresivamente la sensibilidad de la hipófisis al estímulo de la CRH y limita la secreción de ACTH, configurando una forma de adaptación central reversible. Este mecanismo parece análogo a lo observado en pacientes tratados durante largos periodos con glucocorticoides exógenos o tras la remisión del síndrome de Cushing, condiciones en las cuales el eje hipotálamo-hipófisis-suprarrenal necesita tiempo para recuperar la normal capacidad de respuesta a los estímulos fisiológicos (Peeters et al., 2018) [19].

Prosiguiendo a lo largo de esta cascada, emerge sin embargo un aspecto fundamental: el cortisol no representa simplemente el producto final del eje hipotálamo-hipófisis-suprarrenal, sino también el principal regulador de su propia actividad. En condiciones fisiológicas, de hecho, el aumento de las concentraciones plasmáticas de cortisol activa un eficaz mecanismo de feedback negativo a nivel del hipotálamo y de la adenohipófisis, reduciendo progresivamente la secreción de CRH y ACTH y devolviendo al organismo hacia la homeostasis una vez terminado el estímulo estresante. Este sistema de autorregulación impide que la respuesta endocrina permanezca activa más tiempo del necesario, limitando la exposición de los tejidos a los glucocorticoides.

Cuando el estrés se vuelve persistente, el continuo reclutamiento del eje HPA altera progresivamente este equilibrio. En las fases iniciales prevalece generalmente un estado de hipercortisolismo, sostenido por la activación crónica del circuito CRH-ACTH-cortisol; con el tiempo, sin embargo, la persistente exposición a los glucocorticoides modifica la sensibilidad de los receptores glucocorticoides, altera la eficacia del feedback negativo y determina una pérdida progresiva de la fisiológica ritmicidad circadiana del cortisol. Paralelamente, se instauran modificaciones estructurales y funcionales del hipocampo y de la corteza prefrontal, regiones fundamentales para el control inhibitorio del eje HPA. En algunos sujetos, esta persistente estimulación puede evolucionar hacia una condición paradójica de reducida respuesta glucocorticoidea, en la cual el cortisol, aun estando presente en cantidades elevadas o normales, pierde progresivamente la capacidad de ejercer sus efectos reguladores sobre los tejidos diana. El estrés crónico transforma así un sistema nacido para proteger al organismo en un mecanismo capaz de perpetuar la disfunción neuroendocrina y la inflamación sistémica (Núñez et al., 2025) [20].

Las consecuencias de esta desregulación se extienden mucho más allá del sistema endocrino. El cortisol representa, de hecho, uno de los principales moduladores de la respuesta inmunitaria y, en condiciones fisiológicas, limita la producción de citoquinas proinflamatorias, reduce la proliferación de los linfocitos, favorece el mantenimiento de las células T reguladoras y contribuye a la conservación de la tolerancia inmunológica. Sin embargo, cuando la sensibilidad a los glucocorticoides disminuye, estas funciones se ven progresivamente comprometidas. De ello resulta un aumento de la producción de mediadores inflamatorios como IL-6, TNF-α e IL-17, una reducción de las citoquinas antiinflamatorias como la IL-10, una menor actividad de las células Natural Killer y una pérdida progresiva de la regulación inmunitaria. Este estado de inflamación crónica favorece la aparición o la progresión de numerosas patologías autoinmunes, entre ellas la artritis reumatoide, el lupus eritematoso sistémico, la esclerosis múltiple, las tiroiditis autoinmunes y las enfermedades inflamatorias crónicas intestinales. Paralelamente, la persistente exposición a los glucocorticoides contribuye al desarrollo de alteraciones metabólicas, cardiovasculares, gastrointestinales, musculoesqueléticas y neuropsiquiátricas, confirmando cómo la respuesta al estrés involucra simultáneamente a prácticamente todos los aparatos del organismo (Núñez et al., 2025) [20].

Los conocimientos adquiridos en los últimos años han encontrado importantes aplicaciones también en la práctica clínica. La prueba de estimulación con CRH representa hoy uno de los instrumentos más utilizados para evaluar la integridad funcional del eje hipotálamo-hipófisis-suprarrenal en pacientes con sospecha de déficit de ACTH. Gracias al uso de los modernos inmunodiagnósticos basados en anticuerpos monoclonales, se ha demostrado recientemente que un valor de cortisol sérico de 12,6 μg/dL, medido 30 minutos después de la administración de CRH, identifica con elevada precisión a los pacientes que necesitan terapia sustitutiva con hidrocortisona, resultando más preciso que el tradicional punto de corte de 18 μg/dL utilizado en el pasado. Este resultado destaca cómo un conocimiento cada vez más profundo de la fisiología del eje HPA no solo produce avances teóricos, sino que permite también mejorar el diagnóstico y la gestión clínica de las patologías endocrinas relacionadas con el estrés (Izuchi et al., 2026) [21].

El recorrido abordado en este párrafo nos ha permitido comprender cómo el estrés involucra a todo el organismo. Todo tiene su origen en el cerebro, donde las señales nerviosas activan una respuesta que involucra progresivamente al glutamato, la orexina, la noradrenalina y el eje hipotálamo-hipófisis-suprarrenal. A través de la liberación de CRH y ACTH, esta actividad se traduce en la producción de cortisol, preparando al organismo para afrontar las situaciones de peligro. Sin embargo, cuando el estrés persiste, los mismos mecanismos protectores pueden transformarse en factores de desequilibrio. Las alteraciones del ritmo circadiano y del feedback negativo modifican la regulación hormonal, metabólica e inmunitaria, favoreciendo procesos inflamatorios y disfunciones celulares. Emerge así un principio fundamental: la salud depende no solo de la capacidad de activar una respuesta al estrés, sino también de la de interrumpirla cuando ya no es necesaria. Es este equilibrio entre activación y recuperación lo que permite al organismo conservar su estabilidad fisiológica a lo largo del tiempo.

Conclusiones

El recorrido abordado en este capítulo nos ha permitido comprender cómo el cerebro transforma una amenaza en una respuesta hormonal. Antes de que el cortisol llegue a la sangre, numerosos circuitos nerviosos deben reconocer, transmitir y coordinar las señales de peligro. En la base de esta comunicación encontramos el glutamato, el principal neurotransmisor excitatorio del sistema nervioso central. Su actividad también está regulada por mTOR, una vía metabólica que influye en la eficiencia de las sinapsis. En particular, mTORC1 contribuye a la respuesta postsináptica, mientras que mTORC2 participa en el control de la liberación presináptica del glutamato.

Esta regulación también involucra a los astrocitos, células fundamentales para mantener estable el entorno cerebral. A través de transportadores específicos, eliminan el exceso de glutamato y lo transforman en glutamina, haciendo posible su reutilización. Cuando mTOR se vuelve crónicamente hiperactivo, este equilibrio puede deteriorarse. Los astrocitos reducen su capacidad para eliminar el glutamato y pueden adquirir características proinflamatorias. El neurotransmisor tiende así a acumularse, aumentando la excitabilidad neuronal y favoreciendo la neuroinflamación. Se comprende entonces cómo una alteración metabólica puede modificar directamente el funcionamiento de las redes nerviosas.

Pero, ¿cómo se transforma esta mayor excitabilidad en un estado de vigilancia? El paso siguiente involucra a las neuronas de orexina, situadas en el hipotálamo lateral. Estas células reciben señales glutamatérgicas que aumentan su actividad y favorecen el mantenimiento de la vigilia. La orexina puede, además, estimular circuitos glutamatérgicos locales, creando un mecanismo de amplificación de la respuesta. Las investigaciones muestran que una reducción de estas señales, observada también tras traumatismos craneoencefálicos, compromete la activación orexinérgica. El glutamato representa, por tanto, un vínculo esencial entre la disponibilidad energética, la comunicación neuronal y la vigilancia.

La actividad de las neuronas orexinérgicas llega a numerosas regiones cerebrales, incluido el locus coeruleus. Este núcleo recibe también señales glutamatérgicas directas de la corteza prefrontal, del hipotálamo lateral y de la sustancia gris periacueductal. Su convergencia aumenta la actividad de las neuronas noradrenérgicas, favoreciendo la liberación de noradrenalina. El organismo pasa así de la simple percepción del estímulo a un estado coordinado de atención, alerta y preparación conductual.

Sin embargo, la respuesta al estrés no puede detenerse en la vigilancia. La noradrenalina contribuye, de hecho, a activar el núcleo paraventricular del hipotálamo, donde se encuentran las neuronas productoras de CRH. A través de receptores adrenérgicos específicos, este neurotransmisor aumenta la excitabilidad de las células involucradas en la respuesta endocrina. Cuando el estrés persiste, también cambian la disponibilidad de la noradrenalina y la sensibilidad de los circuitos hipotalámicos. Las investigaciones muestran además adaptaciones de las glándulas suprarrenales, lo que indica que la respuesta crónica involucra simultáneamente estructuras nerviosas y periféricas.

La liberación de CRH marca el paso definitivo de la respuesta neuronal a la hormonal. Al llegar a la adenohipófisis, estimula la secreción de ACTH, que induce la producción suprarrenal de cortisol. Este último modifica el metabolismo energético, la función cardiovascular y la actividad inmunitaria. Su secreción sigue un ritmo circadiano y está regulada por un sistema de retroalimentación negativa. Cuando el estrés termina, este control contribuye a interrumpir la respuesta y restablecer el equilibrio fisiológico.

Si, por el contrario, el estrés se vuelve persistente, pueden alterarse la ritmicidad hormonal, la sensibilidad a los glucocorticoides y la regulación inmunitaria. De ello se derivan posibles consecuencias metabólicas, inflamatorias y neuroendocrinas. Emerge así el principio central del capítulo: la respuesta al estrés protege al organismo cuando es proporcionada y temporal, pero puede comprometer su equilibrio cuando se vuelve persistente. La salud depende, por tanto, de la capacidad de activar estos circuitos y, sobre todo, de devolverlos a la normalidad.

Referencias

[1] Genetic Inactivation of mTORC1 or mTORC2 in Neurons Reveals Distinct Functions in Glutamatergic Synaptic Transmission

McCabe et al., 2020

eLife. 2020;9:e51440.

[2] Astrocyte Glutamate Uptake and Signaling as Novel Targets for Antiepileptogenic Therapy

Peterson e Binder, 2020

Frontiers in Neurology. 2020;11:1006.

[3] Physiological and Pathological Role of mTOR Signaling in Astrocytes

Hochmuth e Hirrlinger, 2025

Neurochemical Research. 2025;50:53.

[4] mTOR Promotes Astrocyte Activation and Participates in Neuropathic Pain Through an Upregulation of RIP3

Dong et al., 2025

Neurochemical Research. 2025;50(2):93.

[5] SLC38A10 Regulate Glutamate Homeostasis and Modulate the AKT/TSC2/mTOR Pathway in Mouse Primary Cortex Cells

Tripathi et al., 2022

Frontiers in Cell and Developmental Biology. 2022;10:854397.

[6] Hypocretin/Orexin Excites Hypocretin Neurons via a Local Glutamate Neuron: A Potential Mechanism for Orchestrating the Hypothalamic Arousal System

Li et al., 2002

Neuron. 2002;36(6):1169-1181.

[7] Activation of orexin neurons through Non-NMDA Glutamate Receptors Evidenced by c-Fos Immunohistochemistry

Eyigor et al., 2010

Endocrine. 2010;37(1):167-172.

[8] Dietary Therapy Restores Glutamatergic Input to Orexin/Hypocretin Neurons After Traumatic Brain Injury in Mice

Elliott et al., 2018

Sleep. 2018;41(3):zsx212.

[9] Monosynaptic Glutamatergic Activation of Locus Coeruleus and Other Lower Brainstem Noradrenergic Neurons by the C1 Cells in Mice

Holloway et al., 2013

Journal of Neuroscience. 2013;33(48):18792-18805.

[10] Elevated Gene Expression of Glutamate Receptors in Noradrenergic Neurons of the Locus Coeruleus in Major Depression

Chandley et al., 2014

International Journal of Neuropsychopharmacology. 2014;17(10):1569-1578.

[11] Activation of Glutamate Transporters in the Locus Coeruleus Paradoxically Activates Descending Inhibition in Rats

Hayashida et al., 2010

Brain Research. 2010;1317:80-86.

[12] Properties and Modulation of Excitatory Inputs to the Locus Coeruleus

Barcomb et al., 2022

The Journal of Physiology. 2022;600(22):4897-4916.

[13] Glutamatergic Periaqueductal Gray Projections to the Locus Coeruleus Orchestrate Adaptive Arousal States in Threatening Contexts

Wang et al., 2026

Neuroscience Bulletin. 2026;42:255-269.

[14] Noradrenergic activation in the paraventricular nucleus during acute and chronic immobilization stress in rats: an in vivo microdialysis study

Pacak et al., 1992

Brain Research. 1992;589(1):91-96.

[15] Relationship of Alpha-1 and Alpha-2 Adrenergic Binding Sites to Regions of the Paraventricular Nucleus of the Hypothalamus Containing Corticotropin-Releasing Factor and Vasopressin Neurons

Cummings e Seybold, 1988

Neuroendocrinology. 1988;47(6):523-532.

[16] Regulation of corticotropin-releasing hormone neuronal network activity by noradrenergic stress signals

Gouws et al., 2022

The Journal of Physiology. 2022;600(19):4347-4359.

[17] Role of paraventricular nucleus-projecting norepinephrine/epinephrine neurons in acute and chronic stress

Flak et al., 2014

European Journal of Neuroscience. 2014;39(11):1903-1911.

[18] Continuous Administration of Human Corticotropin-Releasing Hormone in the Absence of Glucocorticoid Feedback in Man

Ur et al., 1995

Neuroendocrinology. 1995;61(2):191-197.

[19] ACTH and Cortisol Responses to CRH in Acute, Subacute and Prolonged Critical Illness: A Randomized Double-Blind Placebo-Controlled Crossover Cohort Study

Peeters et al., 2018

Intensive Care Medicine. 2018;44(12):2048-2058.

[20] Chronic Stress and Autoimmunity: The Role of HPA Axis and Cortisol Dysregulation

Núñez et al., 2025

International Journal of Molecular Sciences. 2025;26(20):9994.

[21] Defining a serum cortisol cutoff level post-CRH stimulation for diagnosing ACTH deficiency: A retrospective study validated by a nationwide registry

Izuchi et al., 2026

Frontiers in Endocrinology. 2026;17:1741709.